Sabemos bien que la bipedación no apareció de una vez en la evolución ni implicó el abandono inmediato de los árboles. Sin ir más lejos, hace poco conocimos que, en el sur de África, la bipedación terrestre sería más constante en Australopithecus, mientras que Paranthropus robustus (posteriores a los australopitecos) muestran una flexión frecuente de las articulaciones del tobillo, la rodilla y la cadera, normalmente asociada a la trepa, y tendrían un repertorio de locomoción más diverso (Cazenave et al., 2026).
Aunque, en general, las evidencias poscraneales de Australopithecus apuntan a que la bipedación terrestre constituía una parte fundamental de su repertorio locomotor, entrando en detalles, es mucho más discutible hasta qué punto esa bipedación coexistía con una utilización habitual de los árboles y, por otra parte, si todos los australopitecos combinaron ambas formas de locomoción de la misma manera. Así, es usual debatir sobre cuánto tiempo seguían pasando estos homininos en los árboles, a partir del estudio de rasgos anatómicos de los australopitecos como los brazos relativamente largos, las falanges curvas o el hombro.
El esqueleto juvenil de Dikika, por ejemplo, combina evidencias claras de bipedación con una escápula y unas falanges compatibles con una importante actividad arbórea (Alemseged et al., 2006; Green y Alemseged, 2012; DeSilva et al., 2018). Una reciente reevaluación de la paleobiología de Australopithecus concluye que eran bípedos habituales aunque conservaban un componente significativo de arborealidad (Alemseged, 2023).
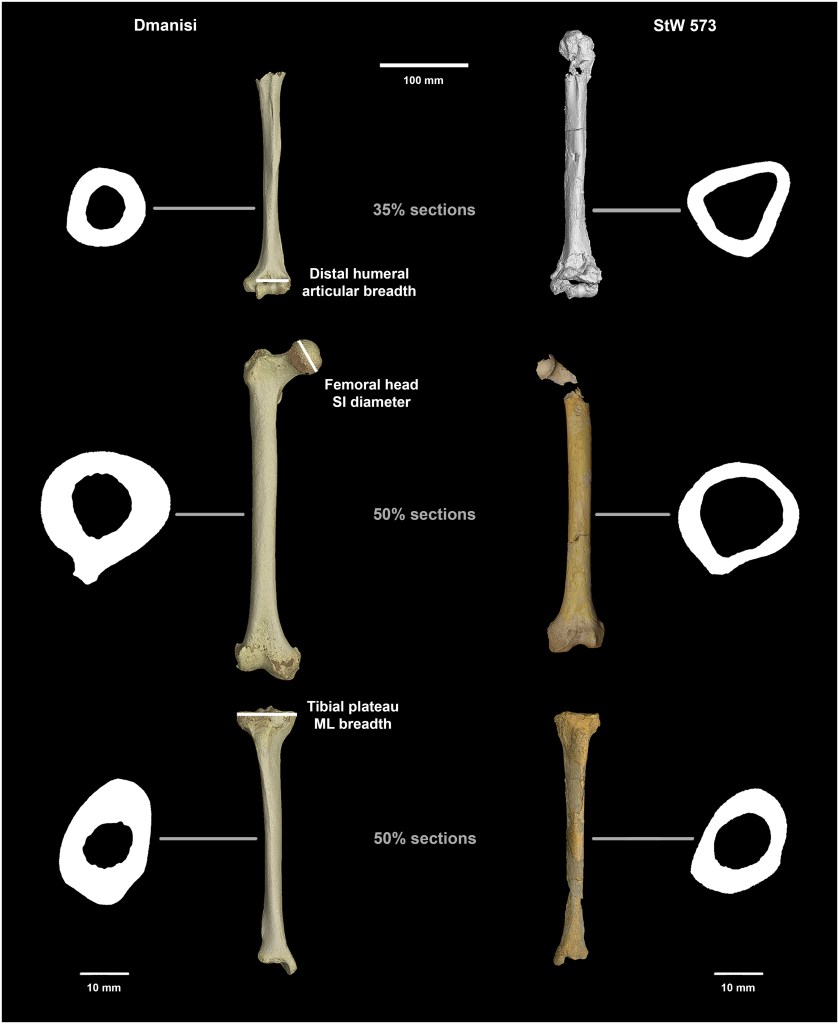
Un nuevo estudio de Carlson et al. (2026) aborda el problema desde una perspectiva interesante: además de su morfología, analiza cómo de resistentes eran los huesos de brazos y piernas en relación unos con otros. La geometría interna de la diáfisis de los huesos largos tiene más plasticidad durante el desarrollo y, en cierta medida, responde a las cargas mecánicas que soporta un individuo a lo largo de su vida. Por tanto, un húmero relativamente robusto no sería simplemente una característica heredada de antepasados arborícolas, sino potencialmente una señal del uso efectivo del brazo para soportar peso, que es lo que sucede al trepar. Si en un hominino se identifica una resistencia relativamente mayor del húmero respecto a los huesos del miembro inferior, esto indica que los brazos estuvieron sometidos durante el desarrollo a cargas mecánicas mayores. En los grandes simios actuales esas proporciones se correlacionan con una mayor utilización arbórea, por lo que proporcionan un indicador indirecto de la arborealidad.
El estudio aporta nuevos datos de dos individuos: el australopiteco Little Foot (StW 573) de Sterkfontein, de unos 3,67 millones de años (Ma), y un Homo temprano de Dmanisi (D3901/D4167/D4507), de 1,8 Ma. Estos datos se integran con los disponibles para los australopitecos Lucy (A.L. 288-1) y Kadanuumuu (KSD-VP-1/1), el Homo habilis OH 62, dos Homo erectus, KNM-ER 1808 y KNM-WT 15000, y muestras de chimpancés, gorilas, orangutanes y una muestra amplia de humanos modernos (hasta 1279 individuos, según la variable analizada). Para determinados análisis articulares se incorporaron además KNM-ER 1472 (Homo rudolfensis) y KNM-ER 1481a (H. erectus).