El Niño de Taung, la Señora Ples y los problemas taxonómicos de Australopithecus africanus

El Niño de Taung, la Señora Ples y los problemas taxonómicos de Australopithecus africanus

Suelo decir que, si el Niño de Taung hubiera vivido veinte años, se habría parecido a la Señora Ples. Es el momento de revisar si puedo mantener esta afirmación.

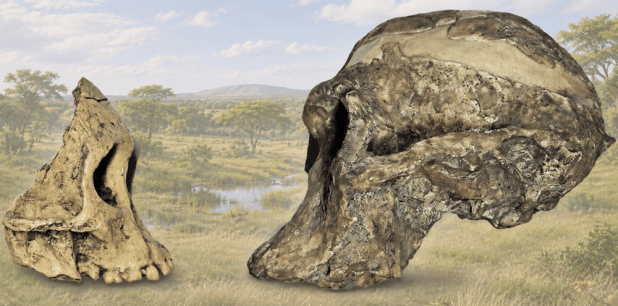
Gabriele Macho y colaboradores han revisado la diversidad de los homininos del sur de África durante el Plio-Pleistoceno a partir del reestudio del Niño de Taung (Taung-1), holotipo de la especie Australopithecus africanus, definida por Raymond Dart en 1925 a partir de este fósil. Quienes siguen este blog conocen la enorme y sorprendente variabilidad morfológica que muestran los especímenes de Au. africanus. Si ya es complicado encontrar caracteres derivados inequívocos en el taxón Au. africanus, todavía es más compleja la atribución de especímenes a este taxón porque su holotipo, Taung-1, es un individuo inmaduro, lo que obliga a distinguir entre diferencias debidas a la ontogenia y auténtica diferenciación taxonómica. Los fósiles que se han ido incorporando posteriormente a esta especie presentan una alta heterogeneidad anatómica, normalmente interpretada como variación intraespecífica. Pero son fósiles de distintos yacimientos del sur de África, algunos separados por centenares de miles de años, de modo que el conjunto agrupa variación espacial y, sobre todo, temporal.

En realidad, puede que esta variabilidad esté reflejando la existencia de más de una especie, como se ha propuesto ya anteriormente. De hecho, los fósiles de Sterkfontein fueron inicialmente atribuidos a Plesianthropus transvaalensis y los de Makapansgat a Australopithecus prometheus, antes de ser agrupados bajo Au. africanus en la década de 1950. Posteriormente, se recuperó el taxón Au. prometheus, sobre todo para StW 573 (Little Foot, 3,67 Ma).

En esta ocasión, el problema taxonómico se aborda combinando análisis de cronología, desarrollo dental, crecimiento endocraneal, morfología de la unión dentina-esmalte y reconstrucciones paleoambientales. Pues bien, este trabajo concluye que no pueden identificarse agrupaciones morfológicas consistentes y propone un modelo ecológico y evolutivo en que los ciclos climáticos modificaron repetidamente la distribución de los hábitats, favoreciendo expansiones y contracciones poblacionales, aislamiento, deriva genética, contacto secundario e hibridaciones.Veamos en detalle:

  • Datación. En 2022 se revisaron las dataciones de Sterkfontein, situando en 3,5 Ma algunos depósitos del Miembro 4, donde apareció Sts 5 (Señora Ples). Las estimaciones anteriores eran imprecisas y daban fechas de hasta un millón de años más recientes. Taung, por su parte, se había situado tradicionalmente en torno a 2,5-3 Ma. Ahora se acota su antigüedad entre 2,96 y 3,03 Ma. El límite inferior procede de la datación isotópica ²⁰⁷Pb/²³⁵U de una formación situada estratigráficamente sobre el depósito fosilífero, mientras que el límite superior está fijado por los datos paleomagnéticos. Esta nueva cronología sitúa a Taung en el Plioceno y hace reconsiderar sus relaciones temporales con los fósiles de Sterkfontein.
  • Desarrollo dental. Taung muestra una mineralización relativamente retrasada del segundo molar respecto al primero, que podría indicar cierta ralentización del desarrollo después de la erupción del M1. Esto sería compatible con una prolongación de la etapa juvenil respecto al patrón típico de los grandes simios, pero también con una fase incipiente de infancia posterior a la dependencia nutricional de la lactancia. Todavía no podemos determinar si el «niño» de Taung en realidad había alcanzado una etapa de infancia comparable a la humana o si se encontraba en una fase juvenil más semejante a la de los grandes simios.
  • Crecimiento endocraneal. El volumen endocraneal de Taung (402-410 ml) es comparable al de algunos especímenes adultos atribuidos a Au. africanus, como Sts 60 (391 ml) y Sts 71 (412 ml), pero representaría apenas el 71 % del volumen de StW 505. En comparación, chimpancés y gorilas en una fase de desarrollo dental comparable a Taung ya han alcanzado respectivamente el 92 % y el 87 % de su volumen cerebral adulto medio. Sin embargo, el volumen no lo explica todo: la trayectoria de cambio de la forma endocraneal se aproxima a la de Sts 5 (Señora Ples) y Sts 60, pero no a la de otros especímenes como Sts 71, MLD 37/38 o StW 505. Esto refuerza la sospecha de que el conjunto tradicionalmente atribuido a Au. africanus incluye más de una entidad taxonómica, aunque las interpretaciones dependen de los modelos ontogenéticos empleados.
Sigue leyendo →
Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Cuando en publicaciones de trabajos genómicos se habla de grupos humanos superarcaicos, el pensamiento siempre se me va a Homo erectus, esperando (y deseando) que las evidencias moleculares de este grupo humano permitan acotar qué es esta especie y, en particular, si es posible caracterizar su longevidad, éxito evolutivo y distribución geográfica en África y Asia. Desde su aparición en África hace unos 2 Ma (millones de años), poblaciones erectinas se extendieron por toda Eurasia, desde su extremo occidental, dejando su rastro en humanos con rasgos afines a H. erectus en la Sima del Elefante (Atapuerca, España) hace 1,4 Ma, hasta su extremo oriental, llegando a persistir en Indonesia hasta hace solo unos 100 ka (miles de años).

Sin embargo, a pesar de su importancia en nuestra historia evolutiva, conocemos muy poco sobre su diversidad genética, debido a que precisamente la antigüedad de sus fósiles y las condiciones de conservación han dificultado la recuperación de ADN antiguo. En ausencia de este, la investigación en esa cronología tiene un gran potencial con la paleoproteómica. En concreto, el esmalte dental constituye un material especialmente favorable en esta técnica, por su elevada mineralización y capacidad de preservar restos proteicos. Hasta ahora, de H. erectus se habían podido analizar algunos péptidos de un diente de Dmanisi (Georgia, 1,77 Ma), pero sin resultados concluyentes sobre variantes distintivas.

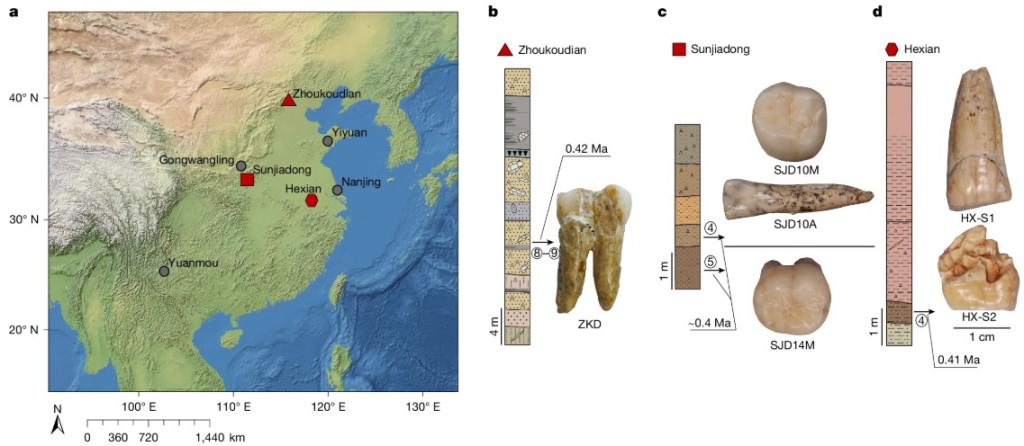
Qiaomei Fu y colaboradores han conseguido un gran avance en este ámbito, mediante el análisis de proteínas del esmalte dental de seis individuos de H. erectus de tres yacimientos chinos contemporáneos de hace unos 400 ka, que abarcan una gran región de norte a sur: Zhoukoudian (el icónico Hombre de Pekín), Hexian y Sunjiadong, junto con una muestra de Harbin, denisovano, utilizado como comparación. Mediante espectrometría de masas, se han recuperado entre 650 y 3457 péptidos endógenos por espécimen, correspondientes a entre 6 y 11 proteínas del esmalte. Los principales resultados son los siguientes.

  • Para empezar, se ha identificado el sexo de todos los individuos a partir de la proporción de péptidos específicos de AMELY frente a los de AMELX. El de Zhoukoudian, dos de Sunjiadong, dos de Hexian y el individuo de Harbin resultaron masculinos, mientras que otro de Sunjiadong es femenino.
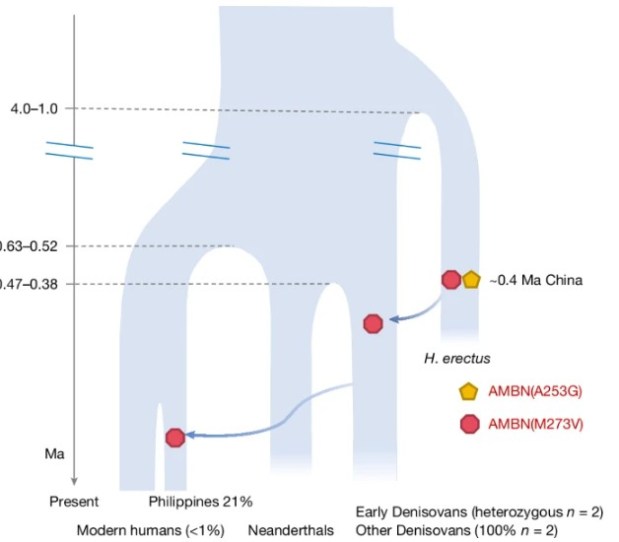
  • El resultado más relevante fue la identificación de dos variantes de aminoácidos en la ameloblastina (AMBN), proteína implicada en la formación del esmalte dental. La primera, denominada A253G, no se había identificado anteriormente en ningún otro linaje humano ni en otros primates analizados. Al aparecer en los seis individuos de forma compartida y no identificada en los grupos comparativos disponibles, en principio podemos tener una característica distintiva de los H. erectus del Pleistoceno medio asiático. Eso sí, prudencia… La representatividad de seis muestras no permite aún generalizarla a toda la especie.
  • Esta variante AMBN(A253G) también permite afirmar que los individuos de Hexian están molecularmente vinculados a los ejemplares de Zhoukoudian y Sunjiadong y son de H. erectus. Esta cuestión generaba dudas hasta ahora, ya que su morfología presenta algunas semejanzas con los fósiles de Java, pero se había llegado a proponer su atribución a los denisovanos.
  • La segunda variante identificada, AMBN(M273V) también está presente en los seis individuos, pero ya se había identificado previamente: el alelo derivado correspondiente, rs564905233, aparece en denisovanos y en algunas poblaciones humanas actuales, con frecuencias del 21% en Filipinas, 1,17% en India y 0,71% en Papúa Nueva Guinea, y está ausente en la mayoría de las demás poblaciones. Por ello, los autores proponen que esta variante pudo llegar a los denisovanos mediante el flujo genético procedente de una población humana antigua relacionada con H. erectus.
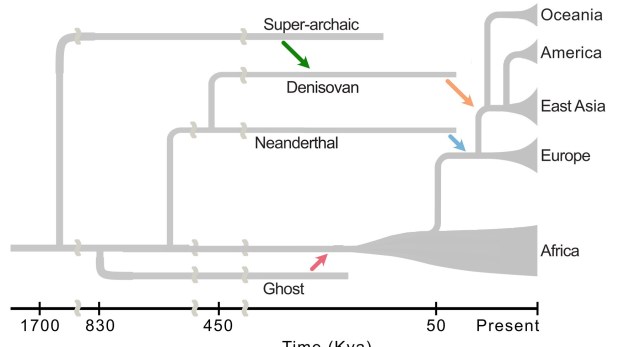
  • Hemos de conectar esta hipótesis con las evidencias genómicas de introgresión de ADN de linajes superarcaicos en los denisovanos que hemos conocido recientemente. Son poblaciones cuyo origen se remontaría a una divergencia anterior a 1 Ma respecto al antepasado común de denisovanos, neandertales y humanos modernos.
  • Precisamente, hace muy poco Zhang et al. (2026) encontraron que entre un 3% y un 5% de la ascendencia genética denisovana reconstruida podría proceder de un linaje humano superarcaico, cuya separación respecto al que conduce a los humanos modernos sucedería hace 1,8 Ma. Hace apenas unos meses sugería no precipitarnos en identificar a ese grupo como H. erectus, ya que el resultado procedía de una reconstrucción estadística de la historia de los genomas, no de ADN recuperado de aquella población desaparecida. Hoy ya podemos comprar más papeletas para apostar por esa hipótesis.
  • En una etapa posterior, parte de la ascendencia denisovana pasó posteriormente a los humanos modernos, mediante distintos eventos de introgresión de poblaciones próximas a los denisovanos hacia ancestros modernos del sudeste asiático y Oceanía. Se han identificado al menos tres episodios de este tipo, algunos posiblemente ocurridos hace tan solo 20 ka (Gokcumen, 2019).
Sigue leyendo →
La coevolución entre la biología de los homininos y su cultura material

La coevolución entre la biología de los homininos y su cultura material

La evolución humana suele explicarse mediante la interacción entre cambios biológicos, como el aumento del cerebro o las modificaciones anatómicas de la mano, y avances culturales, como la fabricación de herramientas o el desarrollo de estrategias de subsistencia. Hasta qué punto influyeron unos en otros es objeto de frecuentes discusiones. En un nuevo trabajo, Alastair Key examina la coevolución entre la biología de los homininos y su cultura material desde los primeros indicios de tecnología lítica hasta antes de la aparición de la agricultura.

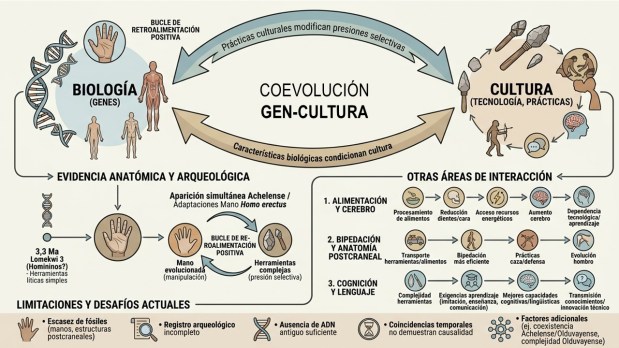
El trabajo pivota sobre la hipótesis denominada «coevolución gen-cultura», que conecta perspectivas de diversas disciplinas para interpretar las evidencias de relaciones recíprocas entre cultura y evolución biológica. El objetivo es explorar cómo determinadas prácticas culturales modifican las presiones selectivas que actúan sobre las poblaciones y, a su vez, cómo las características biológicas de estas condicionan el desarrollo y la transmisión de dichas prácticas. La evolución biológica no precede a otra cultural, sino que son procesos entrelazados que se retroalimentan durante generaciones.

Las primeras evidencias de herramientas líticas conocidas proceden de Lomekwi 3, en Kenia, de 3,3 Ma (millones de años). Se trata de artefactos toscos y simples que los homininos emplearían a modo de yunque y martillo. Aunque su datación a veces se cuestiona, no debe sorprendernos teniendo en cuenta que algunos primates actuales emplean piedras de manera similar. De hecho, Key plantea que el uso de herramientas pudo comenzar antes, mediante piedras naturalmente afiladas, fragmentos de hueso u otros objetos modificados. Cada vez está menos claro que fueran humanos los primeros fabricantes de herramientas.

La mano constituye uno de los ejemplos más claros de esta interacción gen-cultura. La proporción entre el pulgar y los dedos, la musculatura implicada en su flexión y la estabilidad de determinadas articulaciones son innovaciones morfológicas en la evolución hacia los primeros humanos, que favorecerían la talla y/o la manipulación de herramientas. A su vez, las exigencias mecánicas de fabricar y utilizar estos útiles habrían generado presiones selectivas favorables a determinadas características anatómicas. En particular, la aparición prácticamente simultánea de herramientas achelenses (los famosos bifaces de gran tamaño) y las adaptaciones de la mano de Homo erectus no parece una casualidad. Resulta difícil establecer qué cambio precedió al otro, lo cual, en mi opinión, viene a indicar una coevolución muy rápida por el beneficio adaptativo que suponía para la especie.

Nadie duda que la tecnología también transformó la alimentación. El procesamiento con herramientas de alimentos animales y vegetales reduce el esfuerzo necesario para masticar, lo que facilitó la continua reducción del tamaño de los dientes y de la robustez facial. El acceso a recursos de mayor calidad energética, facilitado por nuevas técnicas y estrategias de obtención de alimentos, favorecería el aumento del cerebro. Este, a su vez, habría permitido desarrollar comportamientos de subsistencia más complejos, reforzando la dependencia de la tecnología y del aprendizaje social.

Además, el transporte de herramientas, alimentos y otros objetos pudo contribuir a las presiones selectivas relacionadas con la bipedación, que en los primeros humanos era más eficiente que en homininos anteriores, según vamos conociendo a partir de estudios recientes sobre nuevos restos poscraneales. Algunas prácticas de caza, defensa y lanzamiento de artefactos pudieron intervenir en la evolución de la anatomía del hombro, aunque el registro fósil aún no permite verificar esta hipótesis.

Sigue leyendo →
Paleoantropología: novedades 3er trimestre 2026

Paleoantropología: novedades 3er trimestre 2026

Cerramos el tercer trimestre del año con la reseña de 34 nuevos trabajos que siguen completando, y en algunos casos cuestionando, nuestra visión de la evolución humana.

  • A partir de moldes cerebrales virtuales de primates actuales y fósiles del Eoceno al Mioceno, Kay y colaboradores (2026) reconstruyen la evolución de la neocorteza y cuestionan que su expansión estuviera impulsada principalmente por un crecimiento desproporcionado del lóbulo frontal. El tamaño de la neocorteza aumentó en paralelo en distintos linajes de primates, con incrementos rápidos en tarsios y antropoides, pero el lóbulo frontal evolucionó gradualmente siguiendo un patrón común de escalamiento con el tamaño cerebral. En cambio, las regiones no frontales de la neocorteza aumentaron rápidamente en relación con el tamaño del cerebro en los haplorrinos. Esta expansión coincidió con un incremento del área del foramen óptico, indicador del flujo de información transportada por el nervio óptico, lo que vincula la intensificación del procesamiento visual con la evolución modular y la expansión de la neocorteza de los primates.
  • Una revisión de Brand-Miller y colaboradores propone que los azúcares de frutas y otros alimentos dulces aportaron glucosa a los primeros homininos, antes de que el procesamiento y la cocción facilitaran el aprovechamiento del almidón. Su modelo destaca la demanda de glucosa de un cerebro cada vez mayor y de los tejidos reproductivos, especialmente durante el embarazo y la lactancia. La hipótesis amplía el papel atribuido a los carbohidratos junto al de los alimentos animales.
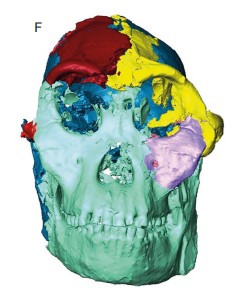
  • La reconstrucción virtual del esqueleto facial de StW 573, apodado Little Foot (Beaudet et al., 2026) en comparación con Sts 5 y A.L. 444-2 (Australopithecus) y con grandes simios modernos, sitúa el tamaño de la cara entre el de un gorila y el de un orangután, mientras que la forma se parecía más a la de los orangutanes y los bonobos. El tamaño, forma y dimensiones de las cuencas de sus ojos son más similares a los Australopithecus de África oriental.
  • Se han publicado 18 fósiles de homininos de Drimolen no descritos previamente (Martin et al., 2026), de los que uno se asigna a Homo erectus, 14 a Paranthropus robustus y tres sin asignación específica. El estudio refuerza la idea de que la población de P. robustus de Drimolen es morfológicamente distinta y proporciona evidencia adicional de la presencia de H. erectus en Sudáfrica hace 2,04-1,95 Ma.
  • El examen del hueso alveolar en 71 mandíbulas de distintas especies de homininos entre 5,3 Ma y 2,6 Ma (Ripamonti et al., 2026) pone de manifiesto una frecuencia mucho mayor de destrucción ósea por periodontitis en el género Homo. Los autores relacionan esta diferencia con la progresiva reducción de la mandíbula y del aparato masticador, que habría liberado espacio en la región craneal. En paralelo, mutaciones genéticas habrían conducido a reducir el tamaño de las coronas dentales en los primeros Homo. La periodontitis sería así una consecuencia indirecta de un conjunto más amplio de transformaciones anatómicas, genéticas y funcionales en las primeras especies humanas.
  • Comparando la resistencia ósea del fémur con la del húmero en distintos especímenes fósiles y restos de humanos actuales, Carlsson y colaboradores muestran una fase prolongada en Australopithecus en la que la bipedación terrestre convivió con una utilización todavía habitual de los árboles, seguida por una especialización mucho mayor hacia la vida terrestre en Homo.
  • Hubbe y Harvati (2026) cuestionan que el aumento progresivo del cerebro y la reducción de la robustez facial en el género Homo fueran impulsados principalmente por una selección natural direccional y gradual. A partir del análisis morfométrico 3D de 63 cráneos fósiles y 24 de H. sapiens recientes, agrupados en ocho conjuntos desde los primeros Homo hasta neandertales y humanos modernos, compararon la evolución del neurocráneo y la cara con las predicciones de seis modelos evolutivos. Los resultados se ajustan mejor a procesos de evolución neutral y, especialmente, de estasis y selección estabilizadora, que a una selección continuada hacia cerebros mayores y caras más reducidas. Los autores proponen así que las restricciones evolutivas, las condiciones ambientales y posiblemente comportamientos culturales que amortiguaron determinadas presiones selectivas tuvieron un papel más importante de lo asumido en la evolución de la morfología craneal de Homo.
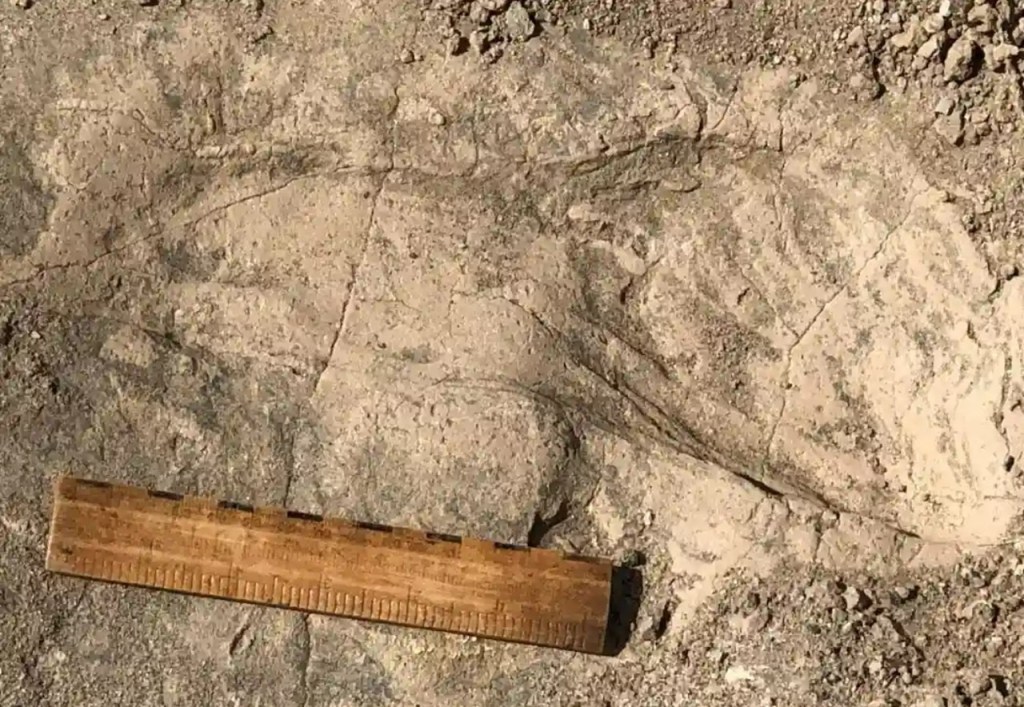
  • En GaJi10, en la orilla oriental del lago Turkana (Kenia), se han documentado 21 huellas de homininos dejadas sobre una misma superficie fangosa hace aproximadamente 1,43 Ma y atribuidas a ocho individuos (Hatala et al., 2026). Su morfología coincide con la de otras huellas atribuidas a Paranthropus boisei y refleja un pie y una locomoción diferentes de los de Homo, más próximos en algunos aspectos a los de Australopithecus. Suponiendo proporciones corporales semejantes a las de este último género, los individuos medibles alcanzarían entre 130,6 y 180,9 cm de estatura y entre 39,8 y 74,6 kg de masa corporal. Cuatro superarían la mayor estatura estimada hasta ahora a partir del esqueleto de P. boisei y dos, la mayor masa conocida para esta especie. Will et al. (2017) estimaban para P. boisei un promedio de 131,1 cm y un máximo conocido hasta entonces de 161,3 cm. Las huellas parecen corresponder mayoritariamente a machos adultos que se desplazaban juntos, sin indicios de hembras ni individuos infantiles, una composición que los autores relacionan con posibles formas complejas de organización social. La misma superficie conserva además 146 huellas de otros animales: 67 de hipopótamo, 64 de bóvido, 13 de ave y 2 de équido..
Sigue leyendo →
Los denisovanos se multiplican: nuevos fósiles y una historia evolutiva más compleja

Los denisovanos se multiplican: nuevos fósiles y una historia evolutiva más compleja

Durante años, los denisovanos han estado representados por un puñado de fósiles y una historia genética inesperada en el árbol filogenético humano. Hoy sabemos que su distribución geográfica fue muy amplia: desde la cueva de Denisova, en Siberia, hasta el Tíbet, China, Taiwán y Laos. Varios resultados publicados casi simultáneamente en las últimas semanas contribuyen ahora a conocer un poco mejor su complejo encaje evolutivo. Dos de ellos presentan nuevos hallazgos procedentes de la cueva de Bianfu (suroeste de China) y del Canal de Penghu (frente a Taiwán). Los restos de Bianfu proporcionan datos sobre la anatomía y la forma de vida de estos humanos, mientras que los fósiles recuperados en Penghu son un gran avance para conocer el esqueleto poscraneal denisovano, aunque este último trabajo todavía está en revisión por pares. Juntos, estos hallazgos no solo ensanchan el mapa de los denisovanos, sino que empiezan a revelar la diversidad de formas, ambientes y estrategias de subsistencia que pudo existir dentro de este enigmático grupo humano. El último estudio reseñado aporta una reconstrucción genómica de la historia de sus intercambios con otras poblaciones humanas. En conjunto, observando los distintos fósiles denisovanos, separados por miles de kilómetros y por más de 100.000 años, estos trabajos nos hacen reflexionar sobre su enorme diversidad anatómica, ecológica y tal vez hasta biológica.

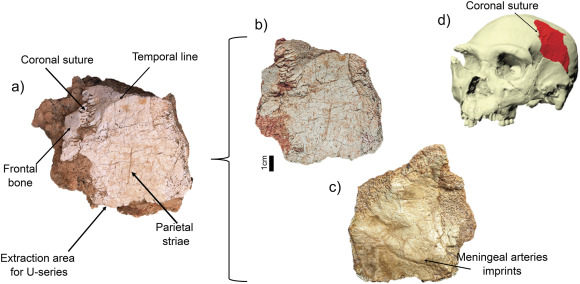
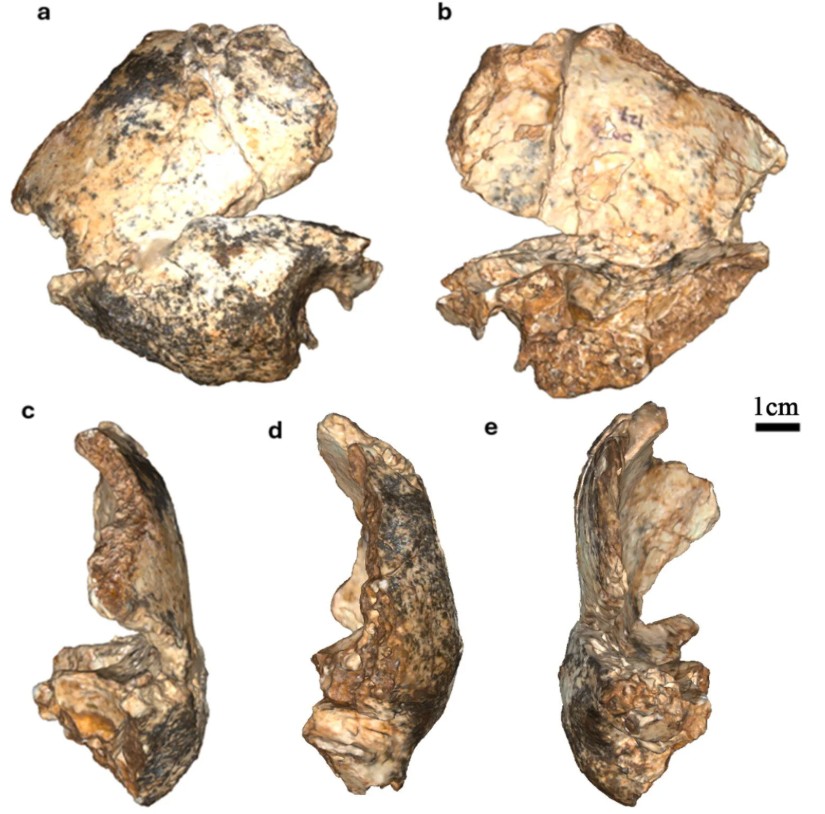
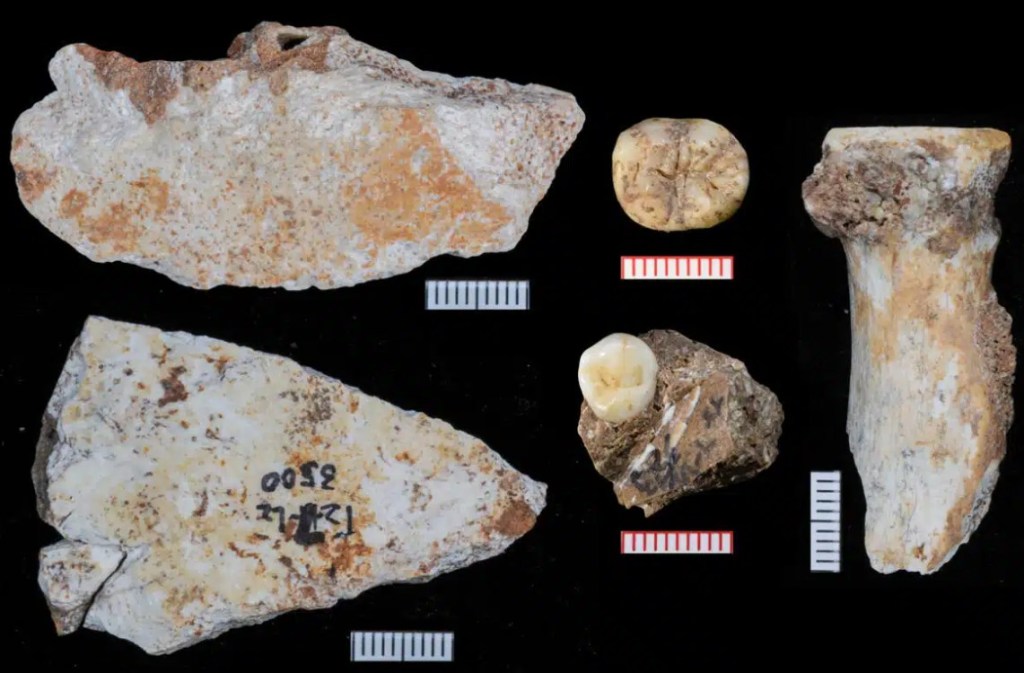
Comencemos por Rao, Xing, Ruan et al. (2026), que examinaron más de 60.000 fragmentos óseos de mamíferos para localizar restos que pudieran pertenecer a homininos. De los 22 candidatos seleccionados, el análisis mediante ZooMS (técnica que identifica especies a partir de fragmentos de colágeno) señaló tres como pertenecientes al género Homo: dos fragmentos de hueso parietal, bastante gruesos, y la porción proximal de un radio. No pudo recuperarse ADN antiguo, pero sí se pudo hacer análisis proteómico, que identificó la variante del colágeno COL1A2 R996K, compartida con Denisova 3 (falange del dedo meñique de la niña denisovana que reveló la existencia de esta especie) y otros restos denisovanos. Por ello, los tres huesos, junto con dos dientes previamente excavados, fueron atribuidos a este grupo humano. El análisis proteómico de los dientes también detectó péptidos de amelogenina Y, una proteína codificada por un gen localizado en el cromosoma Y, lo que indica que procedían de individuos masculinos.

Los restos humanos proceden de niveles datados aproximadamente entre 167 y 134 ka (MIS 6). El hallazgo más novedoso es el fragmento de radio, de unos 4,5 cm, por el exiguo registro poscraneal denisovano. Probablemente perteneció a un adulto. La cabeza radial (que participa en la articulación del codo) es grande y la orientación medial de la tuberosidad (prominencia en la que se inserta el tendón distal del bíceps braquial) recuerdan a rasgos neandertales, mientras que la forma general y determinadas características de su sección transversal se aproximan más a Homo sapiens. Aunque todavía es imposible reconstruir las actividades que realizaba el individuo, la morfología de su codo apunta a que le habría permitido levantar objetos pesados, como en los neandertales, pero también realizar movimientos ágiles y precisos, como en los humanos modernos. Esta combinación iría esbozando un modelo biomecánico específico de los denisovanos, pero debe contrastarse cuando aparezcan más restos poscraneales. Por ahora no podemos saber si la morfología del radio es la habitual de los denisovanos o puede ser una variación individual.

Sigue leyendo →