Paleoantropología: novedades 3er trimestre 2026

Paleoantropología: novedades 3er trimestre 2026

Cerramos el tercer trimestre del año con la reseña de 34 nuevos trabajos que siguen completando, y en algunos casos cuestionando, nuestra visión de la evolución humana.

  • A partir de moldes cerebrales virtuales de primates actuales y fósiles del Eoceno al Mioceno, Kay y colaboradores (2026) reconstruyen la evolución de la neocorteza y cuestionan que su expansión estuviera impulsada principalmente por un crecimiento desproporcionado del lóbulo frontal. El tamaño de la neocorteza aumentó en paralelo en distintos linajes de primates, con incrementos rápidos en tarsios y antropoides, pero el lóbulo frontal evolucionó gradualmente siguiendo un patrón común de escalamiento con el tamaño cerebral. En cambio, las regiones no frontales de la neocorteza aumentaron rápidamente en relación con el tamaño del cerebro en los haplorrinos. Esta expansión coincidió con un incremento del área del foramen óptico, indicador del flujo de información transportada por el nervio óptico, lo que vincula la intensificación del procesamiento visual con la evolución modular y la expansión de la neocorteza de los primates.
  • Una revisión de Brand-Miller y colaboradores propone que los azúcares de frutas y otros alimentos dulces aportaron glucosa a los primeros homininos, antes de que el procesamiento y la cocción facilitaran el aprovechamiento del almidón. Su modelo destaca la demanda de glucosa de un cerebro cada vez mayor y de los tejidos reproductivos, especialmente durante el embarazo y la lactancia. La hipótesis amplía el papel atribuido a los carbohidratos junto al de los alimentos animales.
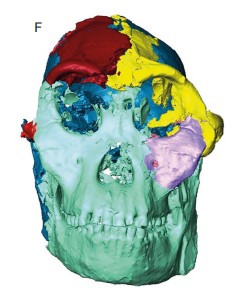
  • La reconstrucción virtual del esqueleto facial de StW 573, apodado Little Foot (Beaudet et al., 2026) en comparación con Sts 5 y A.L. 444-2 (Australopithecus) y con grandes simios modernos, sitúa el tamaño de la cara entre el de un gorila y el de un orangután, mientras que la forma se parecía más a la de los orangutanes y los bonobos. El tamaño, forma y dimensiones de las cuencas de sus ojos son más similares a los Australopithecus de África oriental.
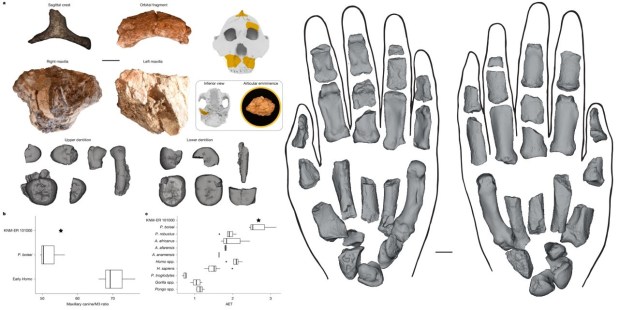
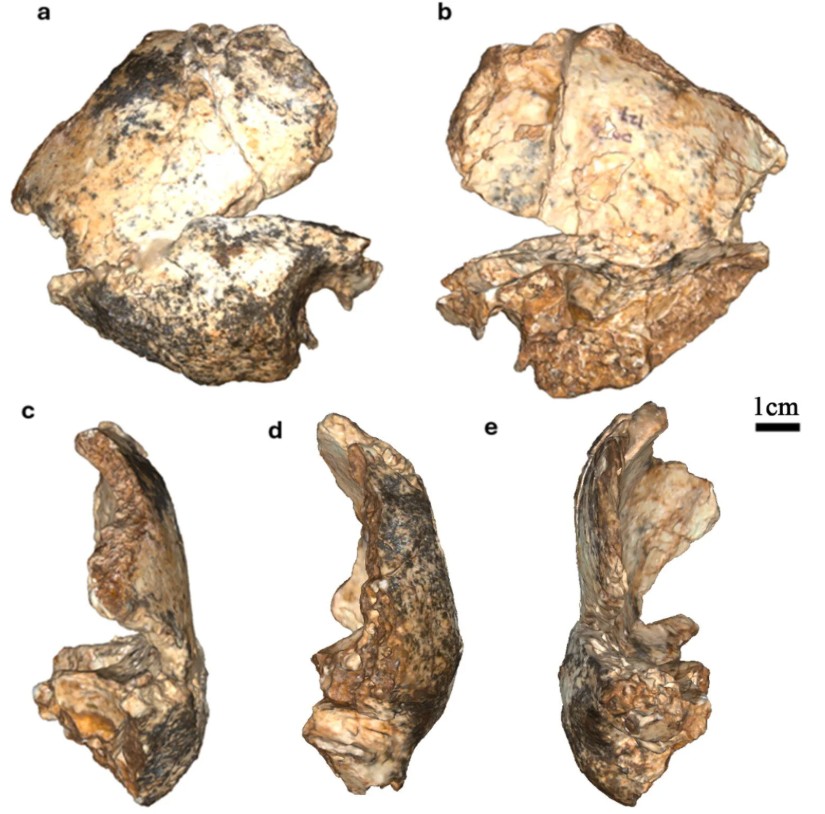
  • Se han publicado 18 fósiles de homininos de Drimolen no descritos previamente (Martin et al., 2026), de los que uno se asigna a Homo erectus, 14 a Paranthropus robustus y tres sin asignación específica. El estudio refuerza la idea de que la población de P. robustus de Drimolen es morfológicamente distinta y proporciona evidencia adicional de la presencia de H. erectus en Sudáfrica hace 2,04-1,95 Ma.
  • El examen del hueso alveolar en 71 mandíbulas de distintas especies de homininos entre 5,3 Ma y 2,6 Ma (Ripamonti et al., 2026) pone de manifiesto una frecuencia mucho mayor de destrucción ósea por periodontitis en el género Homo. Los autores relacionan esta diferencia con la progresiva reducción de la mandíbula y del aparato masticador, que habría liberado espacio en la región craneal. En paralelo, mutaciones genéticas habrían conducido a reducir el tamaño de las coronas dentales en los primeros Homo. La periodontitis sería así una consecuencia indirecta de un conjunto más amplio de transformaciones anatómicas, genéticas y funcionales en las primeras especies humanas.
  • Comparando la resistencia ósea del fémur con la del húmero en distintos especímenes fósiles y restos de humanos actuales, Carlsson y colaboradores muestran una fase prolongada en Australopithecus en la que la bipedación terrestre convivió con una utilización todavía habitual de los árboles, seguida por una especialización mucho mayor hacia la vida terrestre en Homo.
  • Hubbe y Harvati (2026) cuestionan que el aumento progresivo del cerebro y la reducción de la robustez facial en el género Homo fueran impulsados principalmente por una selección natural direccional y gradual. A partir del análisis morfométrico 3D de 63 cráneos fósiles y 24 de H. sapiens recientes, agrupados en ocho conjuntos desde los primeros Homo hasta neandertales y humanos modernos, compararon la evolución del neurocráneo y la cara con las predicciones de seis modelos evolutivos. Los resultados se ajustan mejor a procesos de evolución neutral y, especialmente, de estasis y selección estabilizadora, que a una selección continuada hacia cerebros mayores y caras más reducidas. Los autores proponen así que las restricciones evolutivas, las condiciones ambientales y posiblemente comportamientos culturales que amortiguaron determinadas presiones selectivas tuvieron un papel más importante de lo asumido en la evolución de la morfología craneal de Homo.
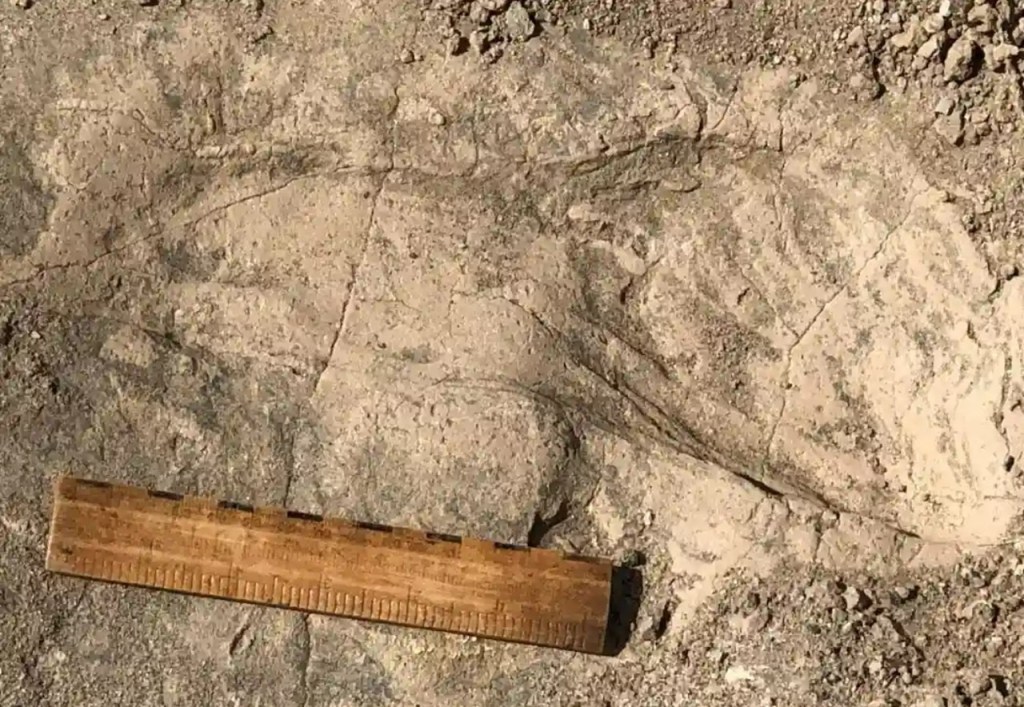
  • En GaJi10, en la orilla oriental del lago Turkana (Kenia), se han documentado 21 huellas de homininos dejadas sobre una misma superficie fangosa hace aproximadamente 1,43 Ma y atribuidas a ocho individuos (Hatala et al., 2026). Su morfología coincide con la de otras huellas atribuidas a Paranthropus boisei y refleja un pie y una locomoción diferentes de los de Homo, más próximos en algunos aspectos a los de Australopithecus. Suponiendo proporciones corporales semejantes a las de este último género, los individuos medibles alcanzarían entre 130,6 y 180,9 cm de estatura y entre 39,8 y 74,6 kg de masa corporal. Cuatro superarían la mayor estatura estimada hasta ahora a partir del esqueleto de P. boisei y dos, la mayor masa conocida para esta especie. Will et al. (2017) estimaban para P. boisei un promedio de 131,1 cm y un máximo conocido hasta entonces de 161,3 cm. Las huellas parecen corresponder mayoritariamente a machos adultos que se desplazaban juntos, sin indicios de hembras ni individuos infantiles, una composición que los autores relacionan con posibles formas complejas de organización social. La misma superficie conserva además 146 huellas de otros animales: 67 de hipopótamo, 64 de bóvido, 13 de ave y 2 de équido..
Sigue leyendo →
¿Cuánto tiempo pasaban nuestros ancestros en los árboles?

¿Cuánto tiempo pasaban nuestros ancestros en los árboles?

Sabemos bien que la bipedación no apareció de una vez en la evolución ni implicó el abandono inmediato de los árboles. Sin ir más lejos, hace poco conocimos que, en el sur de África, la bipedación terrestre sería más constante en Australopithecus, mientras que Paranthropus robustus (posteriores a los australopitecos) muestran una flexión frecuente de las articulaciones del tobillo, la rodilla y la cadera, normalmente asociada a la trepa, y tendrían un repertorio de locomoción más diverso (Cazenave et al., 2026).

Aunque, en general, las evidencias poscraneales de Australopithecus apuntan a que la bipedación terrestre constituía una parte fundamental de su repertorio locomotor, entrando en detalles, es mucho más discutible hasta qué punto esa bipedación coexistía con una utilización habitual de los árboles y, por otra parte, si todos los australopitecos combinaron ambas formas de locomoción de la misma manera. Así, es usual debatir sobre cuánto tiempo seguían pasando estos homininos en los árboles, a partir del estudio de rasgos anatómicos de los australopitecos como los brazos relativamente largos, las falanges curvas o el hombro.

El esqueleto juvenil de Dikika, por ejemplo, combina evidencias claras de bipedación con una escápula y unas falanges compatibles con una importante actividad arbórea (Alemseged et al., 2006; Green y Alemseged, 2012; DeSilva et al., 2018). Una reciente reevaluación de la paleobiología de Australopithecus concluye que eran bípedos habituales aunque conservaban un componente significativo de arborealidad (Alemseged, 2023).

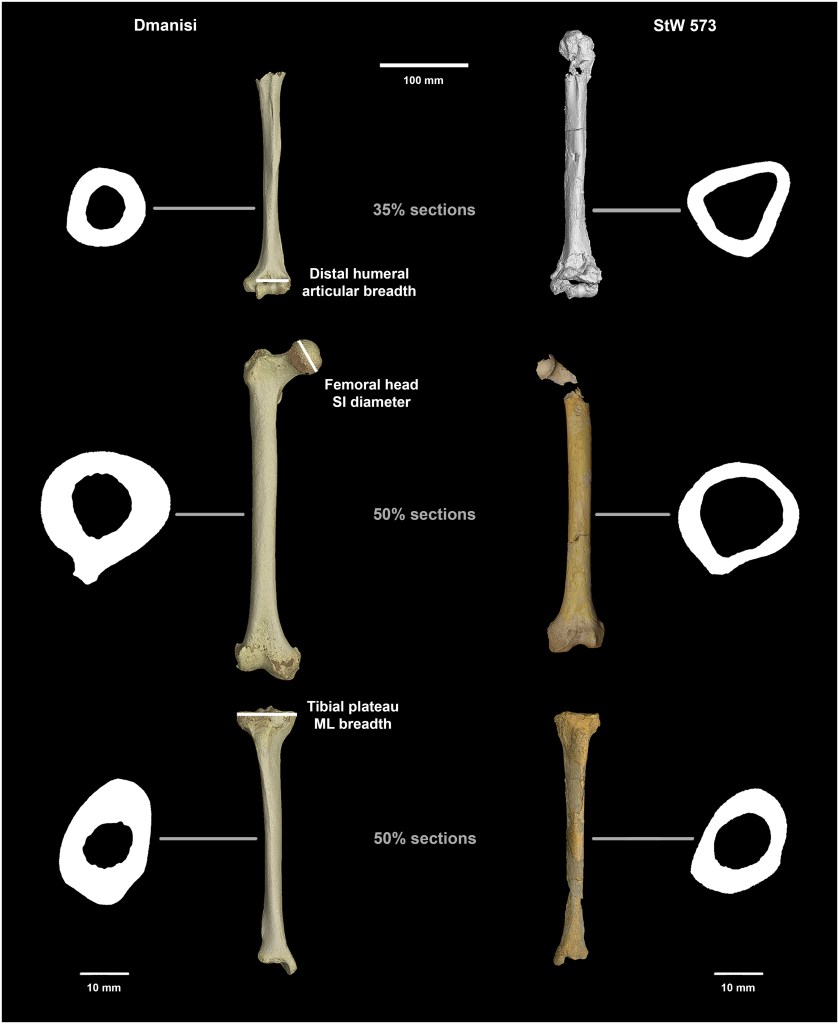
Un nuevo estudio de Carlson et al. (2026) aborda el problema desde una perspectiva interesante: además de su morfología, analiza cómo de resistentes eran los huesos de brazos y piernas en relación unos con otros. La geometría interna de la diáfisis de los huesos largos tiene más plasticidad durante el desarrollo y, en cierta medida, responde a las cargas mecánicas que soporta un individuo a lo largo de su vida. Por tanto, un húmero relativamente robusto no sería simplemente una característica heredada de antepasados arborícolas, sino potencialmente una señal del uso efectivo del brazo para soportar peso, que es lo que sucede al trepar. Si en un hominino se identifica una resistencia relativamente mayor del húmero respecto a los huesos del miembro inferior, esto indica que los brazos estuvieron sometidos durante el desarrollo a cargas mecánicas mayores. En los grandes simios actuales esas proporciones se correlacionan con una mayor utilización arbórea, por lo que proporcionan un indicador indirecto de la arborealidad.

El estudio aporta nuevos datos de dos individuos: el australopiteco Little Foot (StW 573) de Sterkfontein, de unos 3,67 millones de años (Ma), y un Homo temprano de Dmanisi (D3901/D4167/D4507), de 1,8 Ma. Estos datos se integran con los disponibles para los australopitecos Lucy (A.L. 288-1) y Kadanuumuu  (KSD-VP-1/1), el Homo habilis OH 62, dos Homo erectus, KNM-ER 1808 y KNM-WT 15000, y muestras de chimpancés, gorilas, orangutanes y una muestra amplia de humanos modernos (hasta 1279 individuos, según la variable analizada). Para determinados análisis articulares se incorporaron además KNM-ER 1472 (Homo rudolfensis) y KNM-ER 1481a (H. erectus).

Sigue leyendo →
Paleoantropología: novedades 2º trimestre 2026

Paleoantropología: novedades 2º trimestre 2026

Como cada trimestre, aquí llega el resumen de las principales novedades publicadas en el ámbito de la paleoantropología, ordenadas cronológicamente según la antigüedad de los hallazgos estudiados.

  • Una nueva estimación para la divergencia de los linajes chimpancé y humano la sitúa en 8,69-7,28 Ma, anterior a los c. 7 Ma que se venía asumiendo, basada en datos genéticos y evidencias fósiles (d’Oliveira Coelho et al., 2026).
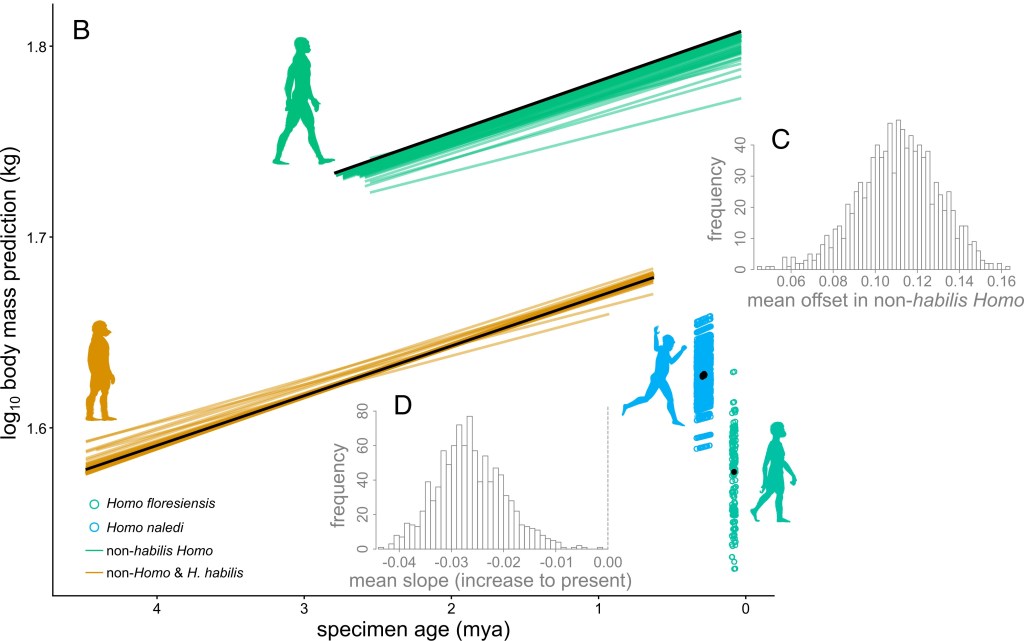
  • A partir de un análisis de 386 especímenes de 21 taxones, Gardner et al. (2026) publican evidencias de un fuerte aumento de la masa corporal para todas las especies tardías de Homo, excepto Homo habilis, no como tendencia continua, sino como un aumento progresivo en los homininos más antiguos, seguido de un cambio concentrado dentro del género Homo, acompañado de ramas paralelas que siguieron caminos distintos.
  • Hunter y colaboradores han estudiado la variación en la morfología carpiana de los homininos, un rasgo relevante desde el punto de vista biomecánico, encontrando una retención de rasgos potencialmente ancestrales que persistieron hasta Homo naledi. Con ello, sugieren que el carpo de los homininos habría evolucionado a partir de una muñeca similar a la de los simios africanos, y que su reorganización relacionada con la manipulación de herramientas de piedra habría ocurrido ya avanzado el Pleistoceno medio. Además, proponen que el último ancestro común chimpancé-humanos caminaría con nudilleo (knuckle-walking).
  • A partir de evidencias de útiles líticos asociadas con la desaparición de especies de Australopithecus, Paranthropus y Homo temprano en el registro africano oriental entre 0,8 y 3,5 Ma, Shea (2026) sugiere que la transición evolutiva entre los primeros Homo y Homo ergaster/erectus parece estar correlacionada con un cambio en la talla de ocasional a habitual, pero las últimas apariciones de Australopithecus y Paranthropus no parecen estar correlacionadas con cambios importantes en el registro.
  • Los nuevos hallazgos de restos fósiles de las extremidades inferiores de parántropos y australopitecos han permitido comparar su estructura ósea interna, concretamente entre especímenes de Paranthropus robustus de Swartkrans (parte de la pelvis, un fémur casi completo y una tibia completa del individuo SWT1/HR-2 del Miembro 1 de Swartkrans) y de especímenes de Australopithecus del Miembro 4 de Sterkfontein (Cazenave et al., 2026). La estructura ósea en los parántropos se acerca más a la de los grandes simios africanos que a la de los australopitecos. Esto sugiere una flexión más frecuente en P. robustus de las articulaciones del tobillo, la rodilla y la cadera, normalmente asociada a la trepa. Los autores interpretan una bipedación terrestre más constante en Australopithecus, y un repertorio de locomoción más diverso en los posteriores P. robustus. Como conclusiones derivadas, ambos taxones explotarían nichos ecológicos diferentes (los parántropos, un territorio más extenso). Nuevamente, se observa una evolución nada lineal de la bipedación en los homininos, y surge la necesidad de comparar este comportamiento locomotor con el de Paranthropus boisei en África oriental, para buscar similitudes que podrían haber caracterizado al género en cuanto a la frecuencia de posturas muy flexionadas de la cadera, la rodilla y el tobillo.
Sigue leyendo →
Paleoantropología: novedades 4º trimestre 2025

Paleoantropología: novedades 4º trimestre 2025

Cerramos un gran año en hallazgos paleoantropológicos. En el último trimestre recopilé 46 publicaciones que ilustran la riqueza acumulada: los cuatro resúmenes trimestrales de 2025 suman 198 novedades. ¡Feliz 2026!

  • Combinando modelos tridimensionales de cráneos y métodos comparativos filogenéticos, Gómez-Robles y colaboradores han analizado la velocidad a la que distintas regiones del rostro y del neurocráneo cambiaron a lo largo del tiempo en distintos linajes de primates. El linaje humano duplicó la tasa esperada de cambio morfológico, y esto sucedió en la mayoría de los rasgos craneofaciales, separándose claramente de otros grandes simios y mostrando una selección direccional.
  • Al contrario que el desarrollo prolongado en el neurocráneo de Homo sapiens y Homo erectus, en Australopithecus afarensis y Paranthropus robustus los patrones de desarrollo son variables (Braga, Alemseged y Gilissen, 2025). De hecho, Au. afarensis exhibe un crecimiento endocraneal prolongado en comparación con P. robustus, un contraste incluso mayor que el de Pan paniscus y Pan troglodytes, lo que sugiere que el desarrollo endocraneal en Au. afarensis se asemeja más al de H. sapiens que al de P. robustus.
  • El análisis 3D morfométrico de las inserciones ligamentarias radiocarpianas (Casado et al., 2025) en 110 radios de homininos fósiles aporta información sobre sus patrones locomotores: Au. afarensis, Au. anamensis y Au. sediba combinaban locomoción bípeda y arbórea similar a chimpancés y orangutanes; P. robustus tenía una locomoción terrestre más similar a la de los gorilas; neandertales y H. sapiens basales muestran una anatomía similar a la de los humanos actuales, pero algo más de robustez orientada a cargas manuales (caza/herramientas).
  • El astrágalo ARA-VP-6/500-023 de Ardipithecus ramidus presenta similitudes con los astrágalos de chimpancés y gorilas, adaptados a la escalada vertical y al cuadrupedismo plantígrado terrestre. Además, el fósil tiene rasgos derivados consistentes con un mecanismo de impulso mejorado en el pie de Ar. ramidus. Prang y colaboradores proponen que el último ancestro común de humanos y chimpancés no sería un simio arborícola generalizado, sino un ancestro africano similar a un simio con un repertorio postural que incluía el cuadrupedismo plantígrado terrestre y la escalada vertical, del cual Ar. ramidus representaría un estadio intermedio, con modificaciones incipientes hacia una mayor eficiencia en bipedación. Por otro lado, la bipedación de Ardi sería distinta a la que emplean los grandes simios: su lateral del pie funcionaba mejor para el impulso lateral, dándole un empuje más eficiente al caminar.
Sigue leyendo →
Sacamos del cajón a Australopithecus deyiremeda: dos australopitecos en el mismo paisaje

Sacamos del cajón a Australopithecus deyiremeda: dos australopitecos en el mismo paisaje

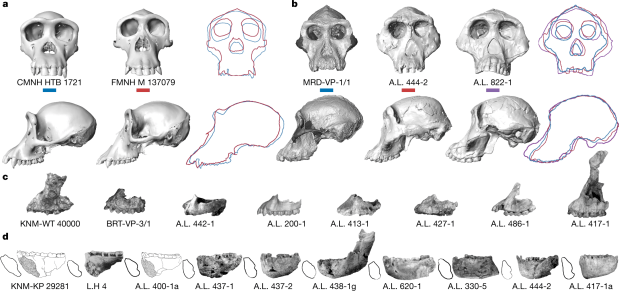
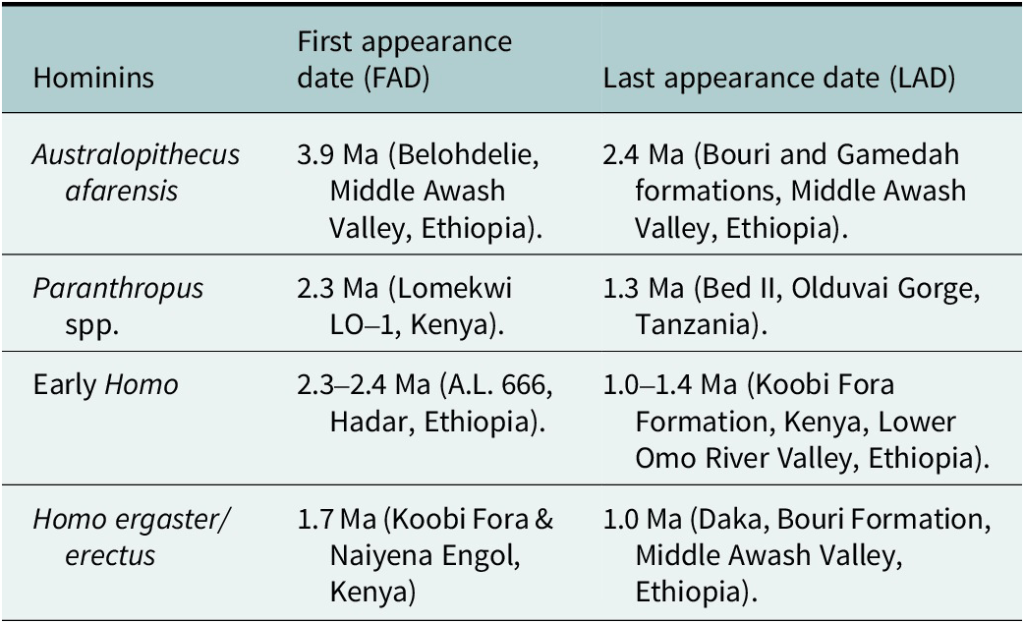
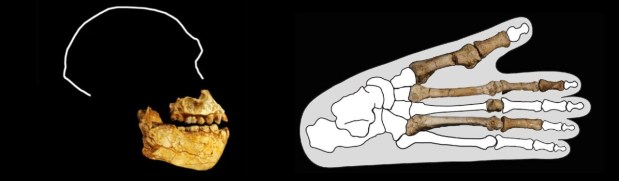
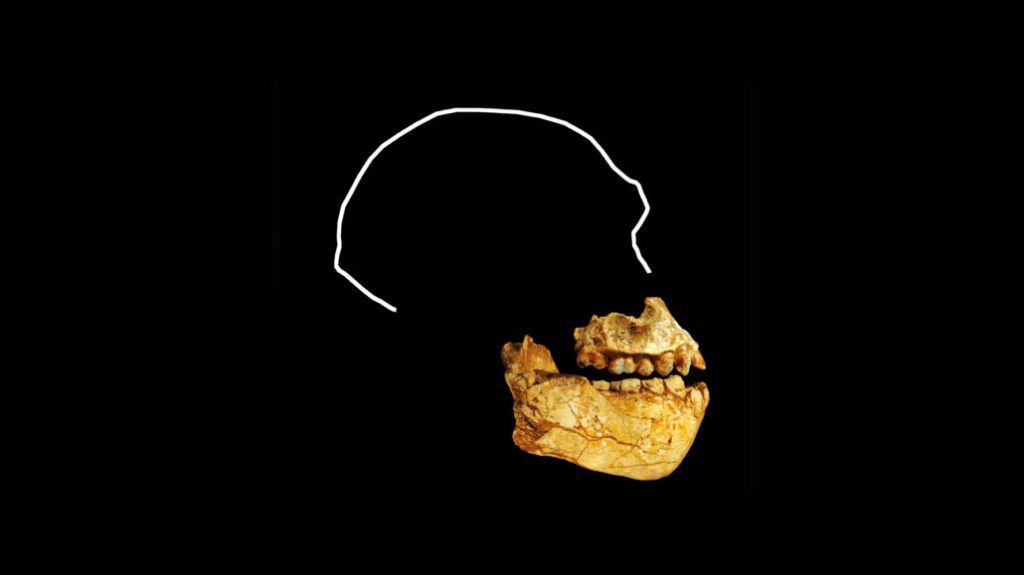
Australopithecus deyiremeda es un taxón estrechamente relacionado con Australopithecus afarensis, la especie de Lucy, con la que coexistió en África oriental entre hace 3,59 y 3,33 Ma. Se definió a partir de un maxilar con dientes (holotipo), y dos mandíbulas y un fragmento de maxilar (paratipos) hallados en el sistema de yacimientos de Burtele, en el área de investigación de Woranso-Mille, Etiopía (Haile-Selassie, Gibert, Melillo et al., 2015). Deyiremeda (day-ihreme-dah) significa «pariente cercano» en la lengua del pueblo Afar.

Lo que distingue fundamentalmente a Au. deyiremeda de Au. afarensis es el mayor grosor mandibular en relación con su corta longitud, la estructura y esmalte grueso de la dentición, y el origen más anterior de los pómulos. También se distingue de Au. garhi (especie que aparece 1 Ma después en la misma región) por tener una cara menos sobresaliente que esta última. Para completar la complejidad, a estos taxones se une Kenyanthropus platyops, también datado en torno a 3,5 Ma, distinguible de los australopitecos sobre todo por su cara más plana, su mandíbula más grácil y una dentición relativamente más pequeña y estrecha.

Sigue leyendo →