El Niño de Taung, la Señora Ples y los problemas taxonómicos de Australopithecus africanus

El Niño de Taung, la Señora Ples y los problemas taxonómicos de Australopithecus africanus

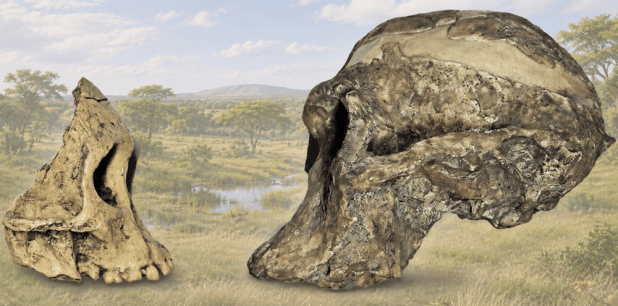
Suelo decir que, si el Niño de Taung hubiera vivido veinte años, se habría parecido a la Señora Ples. Es el momento de revisar si puedo mantener esta afirmación.

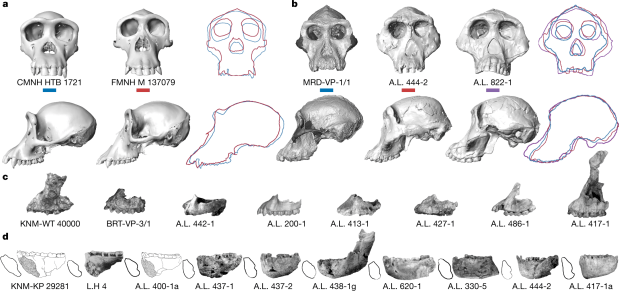
Gabriele Macho y colaboradores han revisado la diversidad de los homininos del sur de África durante el Plio-Pleistoceno a partir del reestudio del Niño de Taung (Taung-1), holotipo de la especie Australopithecus africanus, definida por Raymond Dart en 1925 a partir de este fósil. Quienes siguen este blog conocen la enorme y sorprendente variabilidad morfológica que muestran los especímenes de Au. africanus. Si ya es complicado encontrar caracteres derivados inequívocos en el taxón Au. africanus, todavía es más compleja la atribución de especímenes a este taxón porque su holotipo, Taung-1, es un individuo inmaduro, lo que obliga a distinguir entre diferencias debidas a la ontogenia y auténtica diferenciación taxonómica. Los fósiles que se han ido incorporando posteriormente a esta especie presentan una alta heterogeneidad anatómica, normalmente interpretada como variación intraespecífica. Pero son fósiles de distintos yacimientos del sur de África, algunos separados por centenares de miles de años, de modo que el conjunto agrupa variación espacial y, sobre todo, temporal.

En realidad, puede que esta variabilidad esté reflejando la existencia de más de una especie, como se ha propuesto ya anteriormente. De hecho, los fósiles de Sterkfontein fueron inicialmente atribuidos a Plesianthropus transvaalensis y los de Makapansgat a Australopithecus prometheus, antes de ser agrupados bajo Au. africanus en la década de 1950. Posteriormente, se recuperó el taxón Au. prometheus, sobre todo para StW 573 (Little Foot, 3,67 Ma).

En esta ocasión, el problema taxonómico se aborda combinando análisis de cronología, desarrollo dental, crecimiento endocraneal, morfología de la unión dentina-esmalte y reconstrucciones paleoambientales. Pues bien, este trabajo concluye que no pueden identificarse agrupaciones morfológicas consistentes y propone un modelo ecológico y evolutivo en que los ciclos climáticos modificaron repetidamente la distribución de los hábitats, favoreciendo expansiones y contracciones poblacionales, aislamiento, deriva genética, contacto secundario e hibridaciones.Veamos en detalle:

  • Datación. En 2022 se revisaron las dataciones de Sterkfontein, situando en 3,5 Ma algunos depósitos del Miembro 4, donde apareció Sts 5 (Señora Ples). Las estimaciones anteriores eran imprecisas y daban fechas de hasta un millón de años más recientes. Taung, por su parte, se había situado tradicionalmente en torno a 2,5-3 Ma. Ahora se acota su antigüedad entre 2,96 y 3,03 Ma. El límite inferior procede de la datación isotópica ²⁰⁷Pb/²³⁵U de una formación situada estratigráficamente sobre el depósito fosilífero, mientras que el límite superior está fijado por los datos paleomagnéticos. Esta nueva cronología sitúa a Taung en el Plioceno y hace reconsiderar sus relaciones temporales con los fósiles de Sterkfontein.
  • Desarrollo dental. Taung muestra una mineralización relativamente retrasada del segundo molar respecto al primero, que podría indicar cierta ralentización del desarrollo después de la erupción del M1. Esto sería compatible con una prolongación de la etapa juvenil respecto al patrón típico de los grandes simios, pero también con una fase incipiente de infancia posterior a la dependencia nutricional de la lactancia. Todavía no podemos determinar si el «niño» de Taung en realidad había alcanzado una etapa de infancia comparable a la humana o si se encontraba en una fase juvenil más semejante a la de los grandes simios.
  • Crecimiento endocraneal. El volumen endocraneal de Taung (402-410 ml) es comparable al de algunos especímenes adultos atribuidos a Au. africanus, como Sts 60 (391 ml) y Sts 71 (412 ml), pero representaría apenas el 71 % del volumen de StW 505. En comparación, chimpancés y gorilas en una fase de desarrollo dental comparable a Taung ya han alcanzado respectivamente el 92 % y el 87 % de su volumen cerebral adulto medio. Sin embargo, el volumen no lo explica todo: la trayectoria de cambio de la forma endocraneal se aproxima a la de Sts 5 (Señora Ples) y Sts 60, pero no a la de otros especímenes como Sts 71, MLD 37/38 o StW 505. Esto refuerza la sospecha de que el conjunto tradicionalmente atribuido a Au. africanus incluye más de una entidad taxonómica, aunque las interpretaciones dependen de los modelos ontogenéticos empleados.
Sigue leyendo →
Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Cuando en publicaciones de trabajos genómicos se habla de grupos humanos superarcaicos, el pensamiento siempre se me va a Homo erectus, esperando (y deseando) que las evidencias moleculares de este grupo humano permitan acotar qué es esta especie y, en particular, si es posible caracterizar su longevidad, éxito evolutivo y distribución geográfica en África y Asia. Desde su aparición en África hace unos 2 Ma (millones de años), poblaciones erectinas se extendieron por toda Eurasia, desde su extremo occidental, dejando su rastro en humanos con rasgos afines a H. erectus en la Sima del Elefante (Atapuerca, España) hace 1,4 Ma, hasta su extremo oriental, llegando a persistir en Indonesia hasta hace solo unos 100 ka (miles de años).

Sin embargo, a pesar de su importancia en nuestra historia evolutiva, conocemos muy poco sobre su diversidad genética, debido a que precisamente la antigüedad de sus fósiles y las condiciones de conservación han dificultado la recuperación de ADN antiguo. En ausencia de este, la investigación en esa cronología tiene un gran potencial con la paleoproteómica. En concreto, el esmalte dental constituye un material especialmente favorable en esta técnica, por su elevada mineralización y capacidad de preservar restos proteicos. Hasta ahora, de H. erectus se habían podido analizar algunos péptidos de un diente de Dmanisi (Georgia, 1,77 Ma), pero sin resultados concluyentes sobre variantes distintivas.

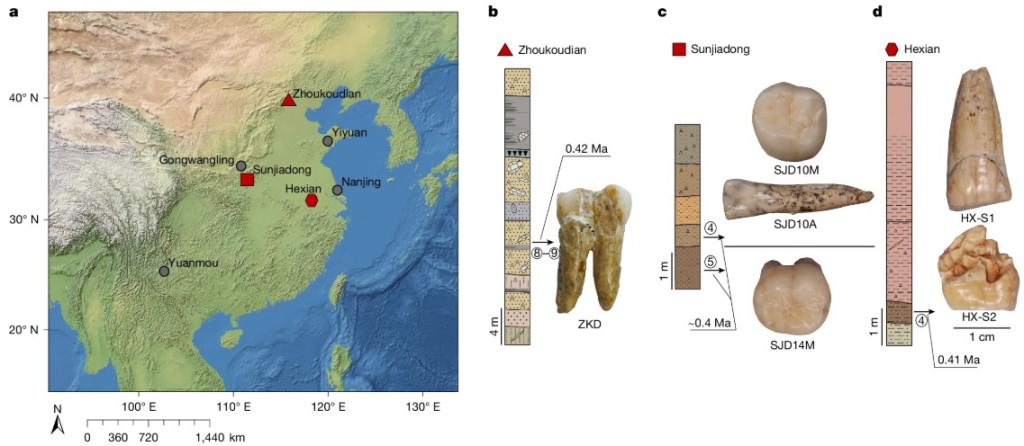
Qiaomei Fu y colaboradores han conseguido un gran avance en este ámbito, mediante el análisis de proteínas del esmalte dental de seis individuos de H. erectus de tres yacimientos chinos contemporáneos de hace unos 400 ka, que abarcan una gran región de norte a sur: Zhoukoudian (el icónico Hombre de Pekín), Hexian y Sunjiadong, junto con una muestra de Harbin, denisovano, utilizado como comparación. Mediante espectrometría de masas, se han recuperado entre 650 y 3457 péptidos endógenos por espécimen, correspondientes a entre 6 y 11 proteínas del esmalte. Los principales resultados son los siguientes.

  • Para empezar, se ha identificado el sexo de todos los individuos a partir de la proporción de péptidos específicos de AMELY frente a los de AMELX. El de Zhoukoudian, dos de Sunjiadong, dos de Hexian y el individuo de Harbin resultaron masculinos, mientras que otro de Sunjiadong es femenino.
  • El resultado más relevante fue la identificación de dos variantes de aminoácidos en la ameloblastina (AMBN), proteína implicada en la formación del esmalte dental. La primera, denominada A253G, no se había identificado anteriormente en ningún otro linaje humano ni en otros primates analizados. Al aparecer en los seis individuos de forma compartida y no identificada en los grupos comparativos disponibles, en principio podemos tener una característica distintiva de los H. erectus del Pleistoceno medio asiático. Eso sí, prudencia… La representatividad de seis muestras no permite aún generalizarla a toda la especie.
  • Esta variante AMBN(A253G) también permite afirmar que los individuos de Hexian están molecularmente vinculados a los ejemplares de Zhoukoudian y Sunjiadong y son de H. erectus. Esta cuestión generaba dudas hasta ahora, ya que su morfología presenta algunas semejanzas con los fósiles de Java, pero se había llegado a proponer su atribución a los denisovanos.
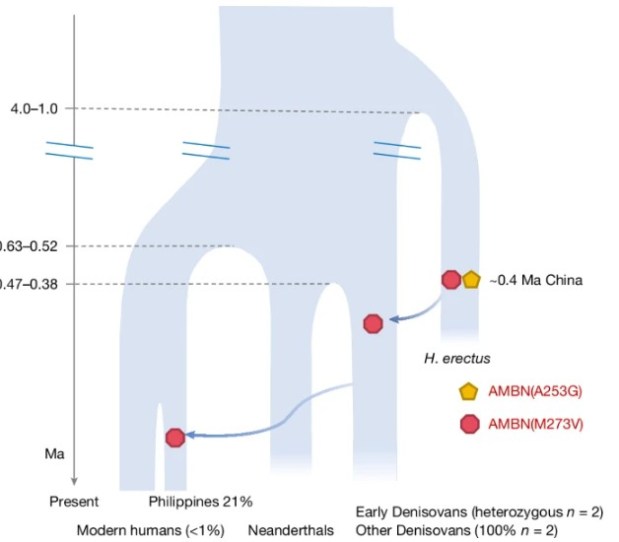
  • La segunda variante identificada, AMBN(M273V) también está presente en los seis individuos, pero ya se había identificado previamente: el alelo derivado correspondiente, rs564905233, aparece en denisovanos y en algunas poblaciones humanas actuales, con frecuencias del 21% en Filipinas, 1,17% en India y 0,71% en Papúa Nueva Guinea, y está ausente en la mayoría de las demás poblaciones. Por ello, los autores proponen que esta variante pudo llegar a los denisovanos mediante el flujo genético procedente de una población humana antigua relacionada con H. erectus.
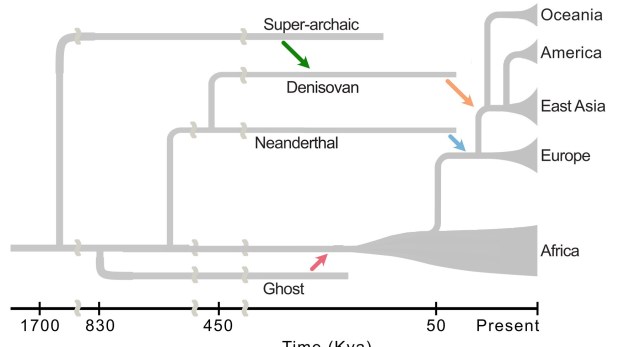
  • Hemos de conectar esta hipótesis con las evidencias genómicas de introgresión de ADN de linajes superarcaicos en los denisovanos que hemos conocido recientemente. Son poblaciones cuyo origen se remontaría a una divergencia anterior a 1 Ma respecto al antepasado común de denisovanos, neandertales y humanos modernos.
  • Precisamente, hace muy poco Zhang et al. (2026) encontraron que entre un 3% y un 5% de la ascendencia genética denisovana reconstruida podría proceder de un linaje humano superarcaico, cuya separación respecto al que conduce a los humanos modernos sucedería hace 1,8 Ma. Hace apenas unos meses sugería no precipitarnos en identificar a ese grupo como H. erectus, ya que el resultado procedía de una reconstrucción estadística de la historia de los genomas, no de ADN recuperado de aquella población desaparecida. Hoy ya podemos comprar más papeletas para apostar por esa hipótesis.
  • En una etapa posterior, parte de la ascendencia denisovana pasó posteriormente a los humanos modernos, mediante distintos eventos de introgresión de poblaciones próximas a los denisovanos hacia ancestros modernos del sudeste asiático y Oceanía. Se han identificado al menos tres episodios de este tipo, algunos posiblemente ocurridos hace tan solo 20 ka (Gokcumen, 2019).
Sigue leyendo →
Los denisovanos se multiplican: nuevos fósiles y una historia evolutiva más compleja

Los denisovanos se multiplican: nuevos fósiles y una historia evolutiva más compleja

Durante años, los denisovanos han estado representados por un puñado de fósiles y una historia genética inesperada en el árbol filogenético humano. Hoy sabemos que su distribución geográfica fue muy amplia: desde la cueva de Denisova, en Siberia, hasta el Tíbet, China, Taiwán y Laos. Varios resultados publicados casi simultáneamente en las últimas semanas contribuyen ahora a conocer un poco mejor su complejo encaje evolutivo. Dos de ellos presentan nuevos hallazgos procedentes de la cueva de Bianfu (suroeste de China) y del Canal de Penghu (frente a Taiwán). Los restos de Bianfu proporcionan datos sobre la anatomía y la forma de vida de estos humanos, mientras que los fósiles recuperados en Penghu son un gran avance para conocer el esqueleto poscraneal denisovano, aunque este último trabajo todavía está en revisión por pares. Juntos, estos hallazgos no solo ensanchan el mapa de los denisovanos, sino que empiezan a revelar la diversidad de formas, ambientes y estrategias de subsistencia que pudo existir dentro de este enigmático grupo humano. El último estudio reseñado aporta una reconstrucción genómica de la historia de sus intercambios con otras poblaciones humanas. En conjunto, observando los distintos fósiles denisovanos, separados por miles de kilómetros y por más de 100.000 años, estos trabajos nos hacen reflexionar sobre su enorme diversidad anatómica, ecológica y tal vez hasta biológica.

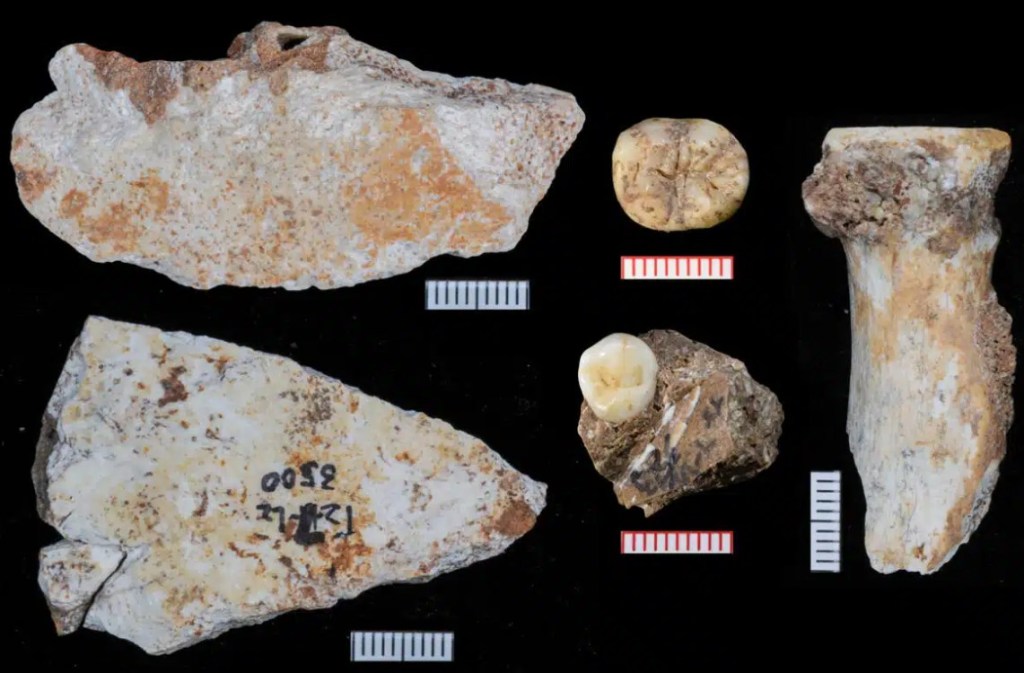
Comencemos por Rao, Xing, Ruan et al. (2026), que examinaron más de 60.000 fragmentos óseos de mamíferos para localizar restos que pudieran pertenecer a homininos. De los 22 candidatos seleccionados, el análisis mediante ZooMS (técnica que identifica especies a partir de fragmentos de colágeno) señaló tres como pertenecientes al género Homo: dos fragmentos de hueso parietal, bastante gruesos, y la porción proximal de un radio. No pudo recuperarse ADN antiguo, pero sí se pudo hacer análisis proteómico, que identificó la variante del colágeno COL1A2 R996K, compartida con Denisova 3 (falange del dedo meñique de la niña denisovana que reveló la existencia de esta especie) y otros restos denisovanos. Por ello, los tres huesos, junto con dos dientes previamente excavados, fueron atribuidos a este grupo humano. El análisis proteómico de los dientes también detectó péptidos de amelogenina Y, una proteína codificada por un gen localizado en el cromosoma Y, lo que indica que procedían de individuos masculinos.

Los restos humanos proceden de niveles datados aproximadamente entre 167 y 134 ka (MIS 6). El hallazgo más novedoso es el fragmento de radio, de unos 4,5 cm, por el exiguo registro poscraneal denisovano. Probablemente perteneció a un adulto. La cabeza radial (que participa en la articulación del codo) es grande y la orientación medial de la tuberosidad (prominencia en la que se inserta el tendón distal del bíceps braquial) recuerdan a rasgos neandertales, mientras que la forma general y determinadas características de su sección transversal se aproximan más a Homo sapiens. Aunque todavía es imposible reconstruir las actividades que realizaba el individuo, la morfología de su codo apunta a que le habría permitido levantar objetos pesados, como en los neandertales, pero también realizar movimientos ágiles y precisos, como en los humanos modernos. Esta combinación iría esbozando un modelo biomecánico específico de los denisovanos, pero debe contrastarse cuando aparezcan más restos poscraneales. Por ahora no podemos saber si la morfología del radio es la habitual de los denisovanos o puede ser una variación individual.

Sigue leyendo →
¿Cuánto tiempo pasaban nuestros ancestros en los árboles?

¿Cuánto tiempo pasaban nuestros ancestros en los árboles?

Sabemos bien que la bipedación no apareció de una vez en la evolución ni implicó el abandono inmediato de los árboles. Sin ir más lejos, hace poco conocimos que, en el sur de África, la bipedación terrestre sería más constante en Australopithecus, mientras que Paranthropus robustus (posteriores a los australopitecos) muestran una flexión frecuente de las articulaciones del tobillo, la rodilla y la cadera, normalmente asociada a la trepa, y tendrían un repertorio de locomoción más diverso (Cazenave et al., 2026).

Aunque, en general, las evidencias poscraneales de Australopithecus apuntan a que la bipedación terrestre constituía una parte fundamental de su repertorio locomotor, entrando en detalles, es mucho más discutible hasta qué punto esa bipedación coexistía con una utilización habitual de los árboles y, por otra parte, si todos los australopitecos combinaron ambas formas de locomoción de la misma manera. Así, es usual debatir sobre cuánto tiempo seguían pasando estos homininos en los árboles, a partir del estudio de rasgos anatómicos de los australopitecos como los brazos relativamente largos, las falanges curvas o el hombro.

El esqueleto juvenil de Dikika, por ejemplo, combina evidencias claras de bipedación con una escápula y unas falanges compatibles con una importante actividad arbórea (Alemseged et al., 2006; Green y Alemseged, 2012; DeSilva et al., 2018). Una reciente reevaluación de la paleobiología de Australopithecus concluye que eran bípedos habituales aunque conservaban un componente significativo de arborealidad (Alemseged, 2023).

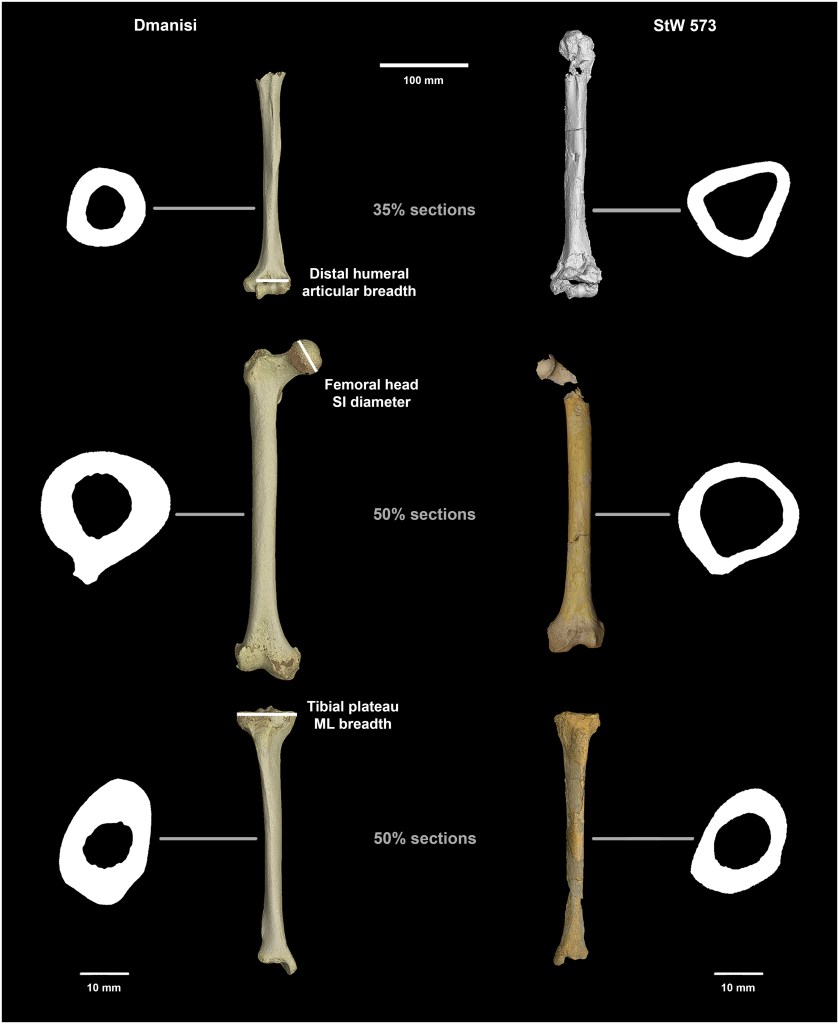
Un nuevo estudio de Carlson et al. (2026) aborda el problema desde una perspectiva interesante: además de su morfología, analiza cómo de resistentes eran los huesos de brazos y piernas en relación unos con otros. La geometría interna de la diáfisis de los huesos largos tiene más plasticidad durante el desarrollo y, en cierta medida, responde a las cargas mecánicas que soporta un individuo a lo largo de su vida. Por tanto, un húmero relativamente robusto no sería simplemente una característica heredada de antepasados arborícolas, sino potencialmente una señal del uso efectivo del brazo para soportar peso, que es lo que sucede al trepar. Si en un hominino se identifica una resistencia relativamente mayor del húmero respecto a los huesos del miembro inferior, esto indica que los brazos estuvieron sometidos durante el desarrollo a cargas mecánicas mayores. En los grandes simios actuales esas proporciones se correlacionan con una mayor utilización arbórea, por lo que proporcionan un indicador indirecto de la arborealidad.

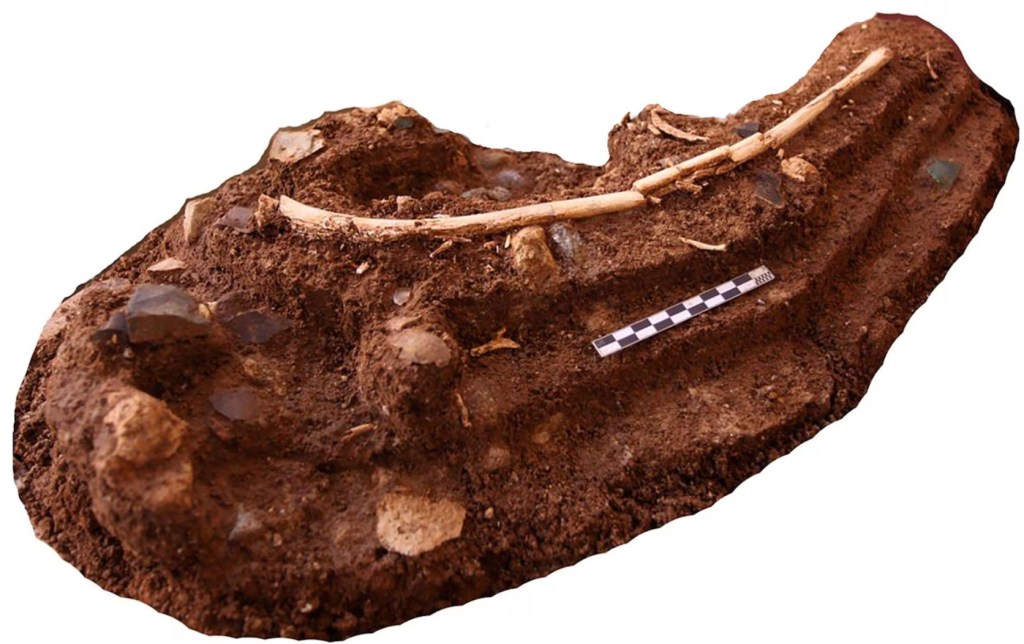
El estudio aporta nuevos datos de dos individuos: el australopiteco Little Foot (StW 573) de Sterkfontein, de unos 3,67 millones de años (Ma), y un Homo temprano de Dmanisi (D3901/D4167/D4507), de 1,8 Ma. Estos datos se integran con los disponibles para los australopitecos Lucy (A.L. 288-1) y Kadanuumuu  (KSD-VP-1/1), el Homo habilis OH 62, dos Homo erectus, KNM-ER 1808 y KNM-WT 15000, y muestras de chimpancés, gorilas, orangutanes y una muestra amplia de humanos modernos (hasta 1279 individuos, según la variable analizada). Para determinados análisis articulares se incorporaron además KNM-ER 1472 (Homo rudolfensis) y KNM-ER 1481a (H. erectus).

Sigue leyendo →
Homo floresiensis: ¿cazador o carroñero?

Homo floresiensis: ¿cazador o carroñero?

Llevábamos algún tiempo sin volver al «mundo perdido» de Flores (Indonesia), una isla siempre separada del continente por un ancho brazo oceánico de decenas de kilómetros. A pesar de ello, dependiendo del periodo climático, esa distancia se reducía periódicamente a tal vez unos 20 km, lo que permitía que algunas especies alcanzaran la isla mediante eventos excepcionales de dispersión como, por ejemplo, balsas naturales empujadas por tormentas o tsunamis. Entre estas especies, llegarían grupos de homininos derivados de poblaciones tempranas de Homo, con algunos rasgos arcaicos que recuerdan incluso a Homo habilis. Las raíces ancestrales africanas de aquellas poblaciones posiblemente se acercaban a los dos millones de años (Ma). Sus descendientes ya habían dejado hace ~1,8 Ma una presencia antigua fuera de África de homininos con rasgos arcaicos, en Europa oriental (Dmanisi y Orozmani, Georgia) y tal vez en China central (Yunxian, con datación discutida).

En todo caso, algunos animales del sudeste asiático que llegaron a Flores, por un proceso llamado especiación alopátrica, impulsado por el aislamiento geográfico extremo, evolucionaron hacia especies endémicas como animales elefantes enanos (stegodones) o ratas gigantes de un metro (Papagomys armandvillei). Entre ellas, se incluyen los pequeños homininos encontrados en yacimientos como Liang Bua (donde se definió la especie Homo floresiensis) o Mata Menge. H. floresiensis era una especie de poco más de 1 m de estatura, unos 25 kg de peso y un cerebro de 400 cc, poco mayor que el de un chimpancé adulto actual. Su presencia en Liang Bua se ha datado en unos 190-50 ka. El hominino de Mata Menge, más antiguo que el de Liang Bua (~700 ka) también parece probablemente más pequeño. Por ahora, en espera de nuevos restos, suele asociarse al linaje floresiensis.

Un nuevo trabajo (Veatch et al., 2026) ha revisado de forma muy detallada los restos de stegodon de Liang Bua y concluye que no existe evidencia clara de una explotación sistemática de grandes presas ni de un uso habitual del fuego por parte de H. floresiensis, apoyándose en una combinación de tafonomía, zooarqueología cuantitativa, análisis experimental de marcas y comparación con restos quemados de roedores procedentes de niveles asociados tanto a dicha especie como a Homo sapiens.

La muestra principal procede de las unidades 1 y 2 de Liang Bua, con presencia atribuida únicamente a H. floresiensis. Se estudiaron 3155 fragmentos de stegodon y 6906 elementos esqueléticos de múridos, muy fragmentados por causas posdeposicionales, y se reconstruyó tanto el contexto estratigráfico como la distribución espacial de los restos. Entre los restos de stegodon con edad identificable, 709 son de subadultos y 1511 de adultos, que corresponden a un mínimo de 9 individuos subadultos y 2 adultos.

Sigue leyendo →