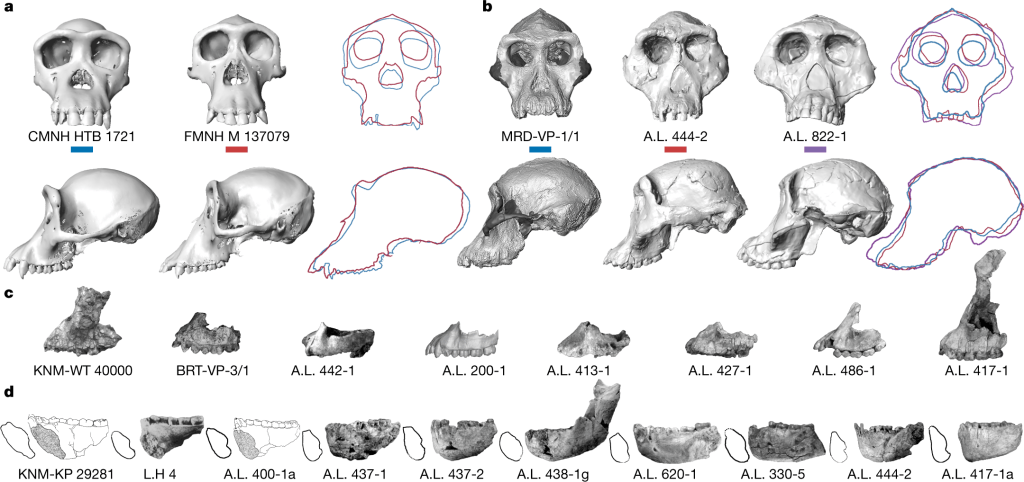
Sabemos bien que la bipedación no apareció de una vez en la evolución ni implicó el abandono inmediato de los árboles. Sin ir más lejos, hace poco conocimos que, en el sur de África, la bipedación terrestre sería más constante en Australopithecus, mientras que Paranthropus robustus (posteriores a los australopitecos) muestran una flexión frecuente de las articulaciones del tobillo, la rodilla y la cadera, normalmente asociada a la trepa, y tendrían un repertorio de locomoción más diverso (Cazenave et al., 2026).
Aunque, en general, las evidencias poscraneales de Australopithecus apuntan a que la bipedación terrestre constituía una parte fundamental de su repertorio locomotor, entrando en detalles, es mucho más discutible hasta qué punto esa bipedación coexistía con una utilización habitual de los árboles y, por otra parte, si todos los australopitecos combinaron ambas formas de locomoción de la misma manera. Así, es usual debatir sobre cuánto tiempo seguían pasando estos homininos en los árboles, a partir del estudio de rasgos anatómicos de los australopitecos como los brazos relativamente largos, las falanges curvas o el hombro.
El esqueleto juvenil de Dikika, por ejemplo, combina evidencias claras de bipedación con una escápula y unas falanges compatibles con una importante actividad arbórea (Alemseged et al., 2006; Green y Alemseged, 2012; DeSilva et al., 2018). Una reciente reevaluación de la paleobiología de Australopithecus concluye que eran bípedos habituales aunque conservaban un componente significativo de arborealidad (Alemseged, 2023).
Un nuevo estudio de Carlson et al. (2026) aborda el problema desde una perspectiva interesante: además de su morfología, analiza cómo de resistentes eran los huesos de brazos y piernas en relación unos con otros. La geometría interna de la diáfisis de los huesos largos tiene más plasticidad durante el desarrollo y, en cierta medida, responde a las cargas mecánicas que soporta un individuo a lo largo de su vida. Por tanto, un húmero relativamente robusto no sería simplemente una característica heredada de antepasados arborícolas, sino potencialmente una señal del uso efectivo del brazo para soportar peso, que es lo que sucede al trepar. Si en un hominino se identifica una resistencia relativamente mayor del húmero respecto a los huesos del miembro inferior, esto indica que los brazos estuvieron sometidos durante el desarrollo a cargas mecánicas mayores. En los grandes simios actuales esas proporciones se correlacionan con una mayor utilización arbórea, por lo que proporcionan un indicador indirecto de la arborealidad.
El estudio aporta nuevos datos de dos individuos: el australopiteco Little Foot (StW 573) de Sterkfontein, de unos 3,67 millones de años (Ma), y un Homo temprano de Dmanisi (D3901/D4167/D4507), de 1,8 Ma. Estos datos se integran con los disponibles para los australopitecos Lucy (A.L. 288-1) y Kadanuumuu (KSD-VP-1/1), el Homo habilis OH 62, dos Homo erectus, KNM-ER 1808 y KNM-WT 15000, y muestras de chimpancés, gorilas, orangutanes y una muestra amplia de humanos modernos (hasta 1279 individuos, según la variable analizada). Para determinados análisis articulares se incorporaron además KNM-ER 1472 (Homo rudolfensis) y KNM-ER 1481a (H. erectus).
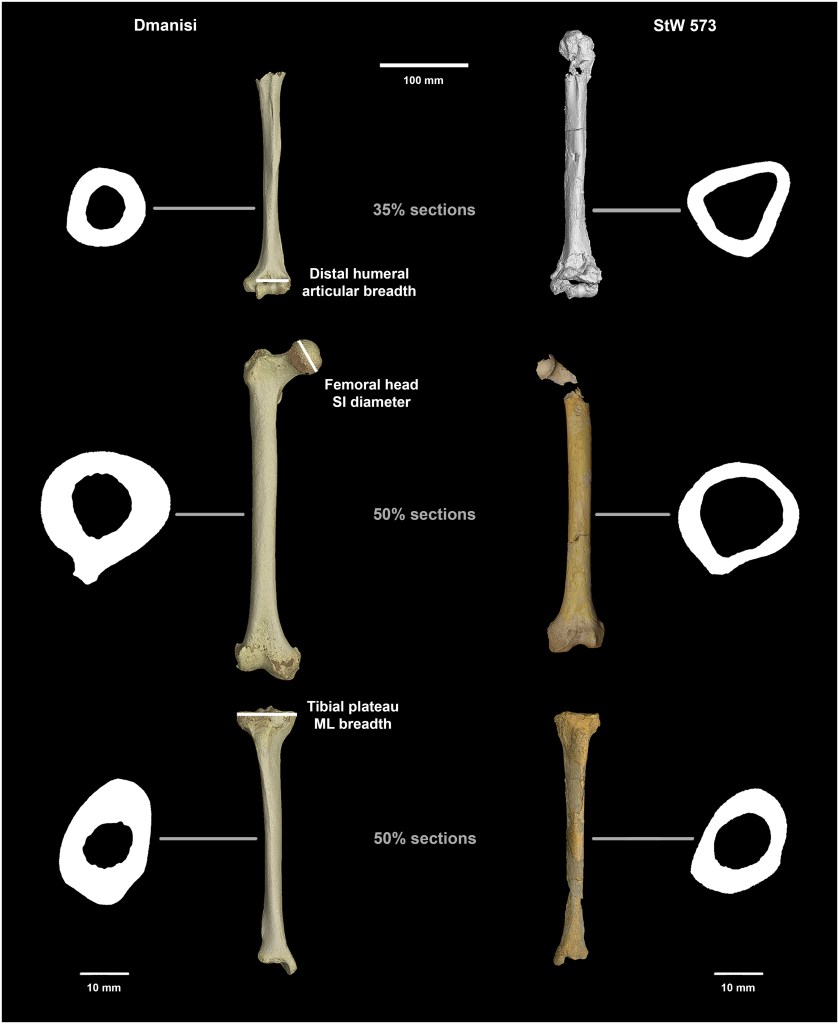
Los resultados ofrecen señales diferentes en brazos y piernas:
- En los miembros superiores, Little Foot y Lucy presentan una relación entre la resistencia del fémur y del húmero mucho más próxima a la de los grandes simios africanos que a la humana. Esto sugiere que los brazos continuaban soportando cargas importantes y se interpreta como señal biomecánica indicativa de un uso frecuente de los árboles, prácticamente como los chimpancés y gorilas actuales. Este resultado amplía lo observado por Ruff et al. (2016) sobre Lucy, cuya estructura ósea ya sugería una utilización de los miembros superiores mucho mayor que la de los humanos modernos.
- Pero las piernas cuentan otra historia. Little Foot presenta una relación de resistencia tibia/fémur semejante a la humana, lo cual consolida la clásica imagen de Australopithecus como un hominino con un repertorio locomotor en mosaico: algunas propiedades biomecánicas del miembro inferior reflejan importantes cargas asociadas a la bipedación terrestre, mientras que los miembros superiores seguirían participando regularmente en la locomoción arbórea. Esto nos puede recordar a… nada. No existe entre los primates actuales un equivalente locomotor claro de esta combinación, como subrayan los propios autores.
- En cambio, los individuos atribuidos a Homo temprano y Homo erectus de Dmanisi, KNM-ER 1808 y KNM-WT 15000 presentan proporciones de resistencia entre brazos y piernas esencialmente similares a las de los humanos modernos. Por tanto, antes de 1,8 Ma se produjo una importante transición adaptativa: el brazo dejó de desempeñar regularmente funciones de soporte del peso corporal y Homo pasó a depender mucho más plenamente de una bipedación terrestre.
¿Cuáles son las dudas razonables?
Tenemos en la muestra analizada fósiles de 3,7-3,2 Ma y después de Homo de 1,8 Ma, con un contraste marcado. Pero falta buena parte de un intervalo (3-1,8 Ma) que es crítico en la evolución humana. Este vacío impide obtener perspectivas más detalladas más allá de un indicio de una transición adaptativa hacia una terrestrialidad mucho mayor en los orígenes de Homo.
¿Representa entonces el contraste entre Australopithecus y Homo una única transición evolutiva o una diversidad de estrategias locomotoras que el exiguo registro fósil todavía no permite reconstruir? La propia muestra analizada de Australopithecus es pequeña y taxonómicamente diversa, y la de Homo temprano también lo es. Por ejemplo, la inclusión de OH 62 (~1,8 Ma) resulta problemática, ya que se atribuye tradicionalmente a Homo habilis, pero presenta proporciones tan simiescas como las de Lucy y Little Foot, y su asignación taxonómica está en discusión. Sería interesante incorporar en futuros estudios a los restos de Australopithecus sediba, ya que su datación (~1,97 Ma) se adentra en este hueco cronológico.
No podemos traducir directamente la resistencia ósea en «horas pasadas en los árboles»: las diferencias de carga mecánica permiten inferir comportamientos, pero no calcular un «porcentaje de arborealidad». Pero el estudio encaja bien con otras evidencias. La anatomía del hombro y del oído interno de Little Foot también conserva rasgos semejantes a los de los simios africanos, mientras que el pie y el tobillo de distintos australopitecos tienen adaptaciones inequívocas a la bipedación.
En conjunto, el dibujo que obtenemos no es una secuencia simple árbol > suelo, sino una fase prolongada en la que la bipedación terrestre convivió con una utilización todavía habitual de los árboles, seguida por una especialización mucho mayor hacia la vida terrestre en Homo. Pero seguimos teniendo apetito por conocer qué presión selectiva pudieron favorecer el abandono casi por completo de los árboles. El desarrollo de la tecnología lítica no lo explica, ya que tiene evidencias cercanas (e incluso anteriores) a 3 Ma. Entre otras posibilidades, se pueden plantear la ampliación de los territorios recorridos y cambios en las estrategias de forrajeo y alimentación. Por ahora, el nuevo trabajo viene a reforzar la frontera general que trazamos entre los géneros Australopithecus y Homo en términos de estrategias de locomoción.