
Durante años, los denisovanos han estado representados por un puñado de fósiles y una historia genética inesperada en el árbol filogenético humano. Hoy sabemos que su distribución geográfica fue muy amplia: desde la cueva de Denisova, en Siberia, hasta el Tíbet, China, Taiwán y Laos. Varios resultados publicados casi simultáneamente en las últimas semanas contribuyen ahora a conocer un poco mejor su complejo encaje evolutivo. Dos de ellos presentan nuevos hallazgos procedentes de la cueva de Bianfu (suroeste de China) y del Canal de Penghu (frente a Taiwán). Los restos de Bianfu proporcionan datos sobre la anatomía y la forma de vida de estos humanos, mientras que los fósiles recuperados en Penghu son un gran avance para conocer el esqueleto poscraneal denisovano, aunque este último trabajo todavía está en revisión por pares. Juntos, estos hallazgos no solo ensanchan el mapa de los denisovanos, sino que empiezan a revelar la diversidad de formas, ambientes y estrategias de subsistencia que pudo existir dentro de este enigmático grupo humano. El último estudio reseñado aporta una reconstrucción genómica de la historia de sus intercambios con otras poblaciones humanas. En conjunto, observando los distintos fósiles denisovanos, separados por miles de kilómetros y por más de 100.000 años, estos trabajos nos hacen reflexionar sobre su enorme diversidad anatómica, ecológica y tal vez hasta biológica.
Comencemos por Rao, Xing, Ruan et al. (2026), que examinaron más de 60.000 fragmentos óseos de mamíferos para localizar restos que pudieran pertenecer a homininos. De los 22 candidatos seleccionados, el análisis mediante ZooMS (técnica que identifica especies a partir de fragmentos de colágeno) señaló tres como pertenecientes al género Homo: dos fragmentos de hueso parietal, bastante gruesos, y la porción proximal de un radio. No pudo recuperarse ADN antiguo, pero sí se pudo hacer análisis proteómico, que identificó la variante del colágeno COL1A2 R996K, compartida con Denisova 3 (falange del dedo meñique de la niña denisovana que reveló la existencia de esta especie) y otros restos denisovanos. Por ello, los tres huesos, junto con dos dientes previamente excavados, fueron atribuidos a este grupo humano. El análisis proteómico de los dientes también detectó péptidos de amelogenina Y, una proteína codificada por un gen localizado en el cromosoma Y, lo que indica que procedían de individuos masculinos.
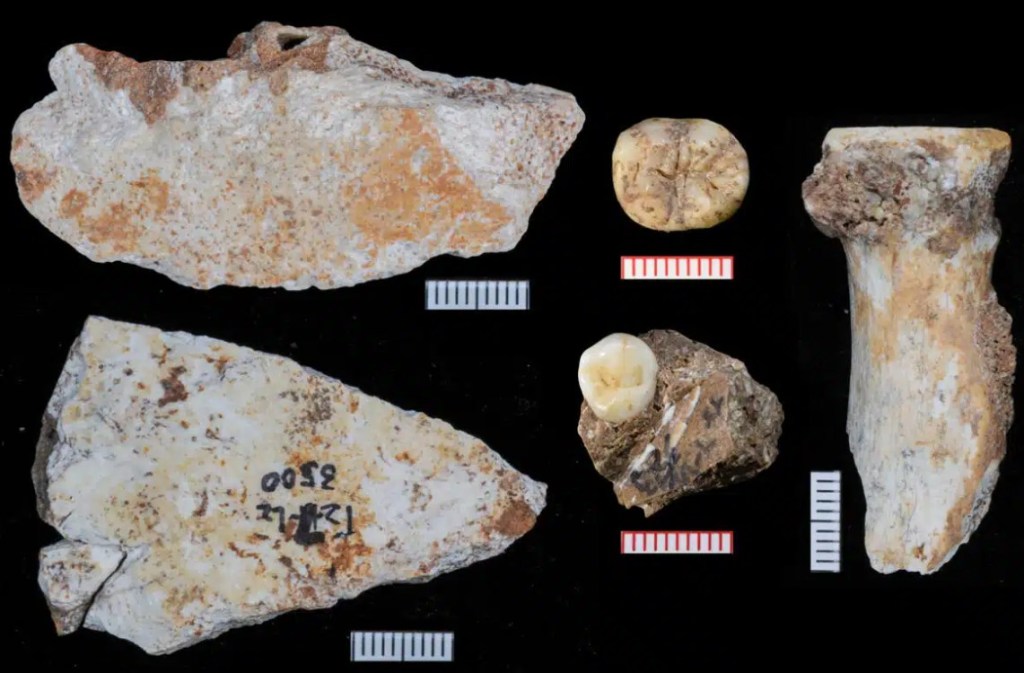
Los restos humanos proceden de niveles datados aproximadamente entre 167 y 134 ka (MIS 6). El hallazgo más novedoso es el fragmento de radio, de unos 4,5 cm, por el exiguo registro poscraneal denisovano. Probablemente perteneció a un adulto. La cabeza radial (que participa en la articulación del codo) es grande y la orientación medial de la tuberosidad (prominencia en la que se inserta el tendón distal del bíceps braquial) recuerdan a rasgos neandertales, mientras que la forma general y determinadas características de su sección transversal se aproximan más a Homo sapiens. Aunque todavía es imposible reconstruir las actividades que realizaba el individuo, la morfología de su codo apunta a que le habría permitido levantar objetos pesados, como en los neandertales, pero también realizar movimientos ágiles y precisos, como en los humanos modernos. Esta combinación iría esbozando un modelo biomecánico específico de los denisovanos, pero debe contrastarse cuando aparezcan más restos poscraneales. Por ahora no podemos saber si la morfología del radio es la habitual de los denisovanos o puede ser una variación individual.
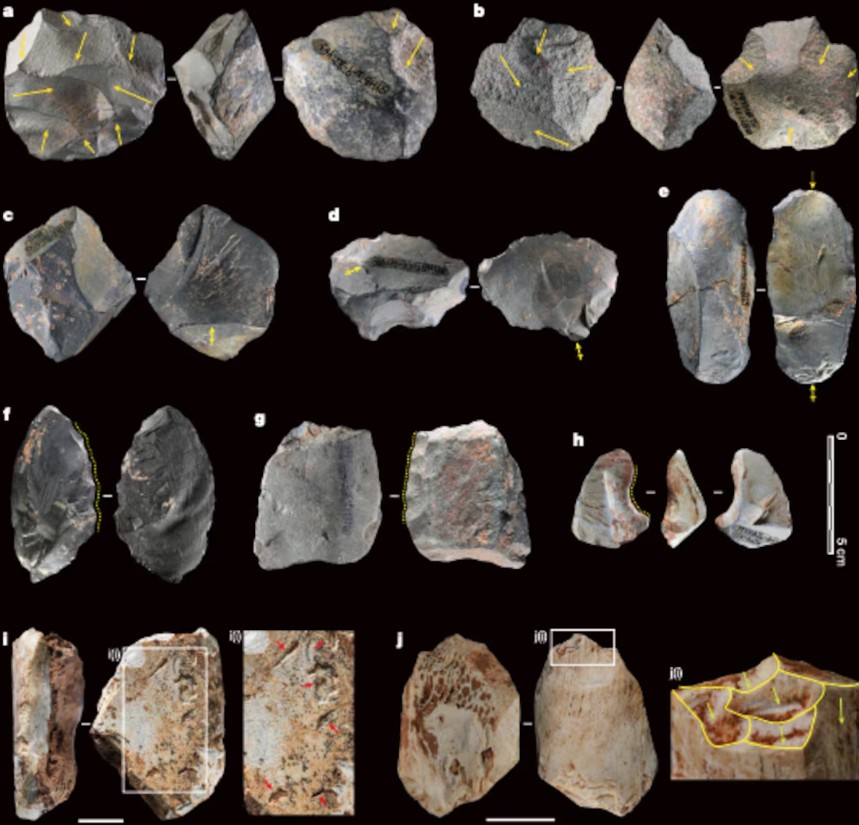
En una publicación paralela, Ruan, Li, Xing et al., (2026) abordan el comportamiento en Bianfu. Este sitio conserva una secuencia arqueológica larga (190-70 ka), aunque la evidencia fósil denisovana se concentra en niveles del intervalo mencionado 167-134 ka. Por tanto, no es posible todavía atribuir toda la secuencia arqueológica de Bianfu a los denisovanos hallados entre los niveles más antiguos. Los análisis de fauna y polen indican un entorno dominado por bosques de coníferas o ambientes de bosque-estepa. La fauna revela una intensa caza de presas de herbívoros medianos (como ciervos) y grandes (como búfalos y gaures), con acceso primario a las carcasas, numerosas marcas de descarnado y extracción de médula y poca actividad de carnívoros. Destacan los animales adultos en edad óptima para el consumo. El conjunto parece indicar una caza especializada, aunque no necesariamente constante durante toda la larga secuencia de ocupación de la cueva.
La tecnología presenta un contraste interesante. La mayor parte de los 1366 artefactos líticos procede de estrategias relativamente sencillas de reducción de núcleos sobre cantos con pocos retoques. Los núcleos discoides están presentes, pero la talla Levallois no abunda. También aparecen artefactos óseos, como retocadores. Una posible interpretación de esta estrategia tecnológica es que primara el aprovechamiento funcional de materias primas locales sobre una elaboración intensiva de herramientas. Este enfoque se entendería en conjunto con la documentación del procesamiento sistemático de las carcasas, el uso de retocadores y una explotación recurrente de presas medianas y grandes. Pero si una tecnología relativamente sencilla cumplía su función durante decenas de milenios, debemos preguntarnos qué pudo mover a grupos humanos en otras localizaciones geográficas a invertir tiempo y energía en producir herramientas más complejas. Tal vez no se esté interpretando correctamente esa diferencia como una cuestión de complejidad tecnológica.
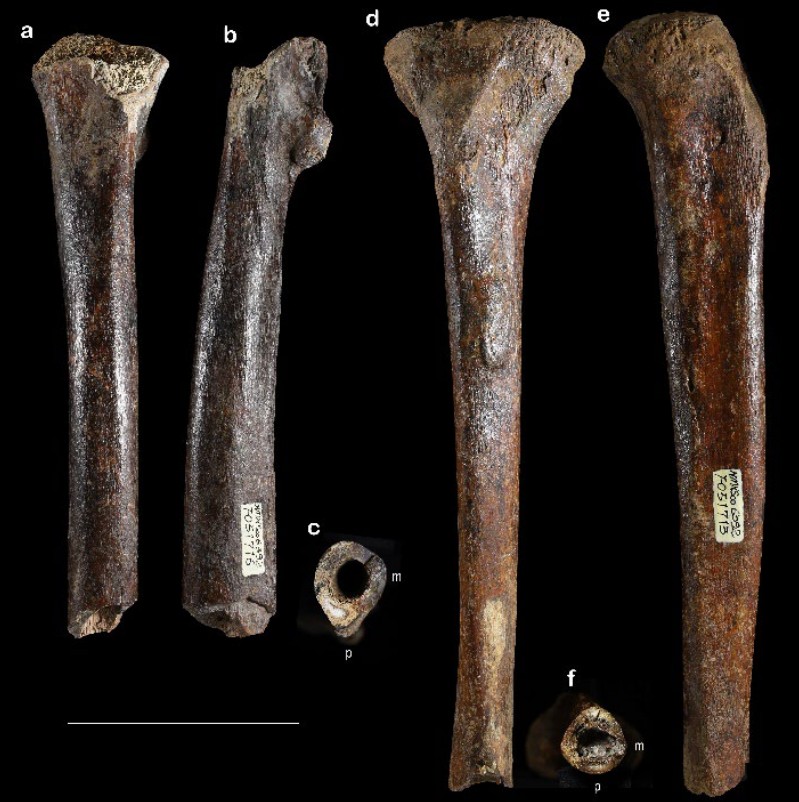
Por otra parte, Kaifu et al. (2026, preprint) expanden el registro poscraneal denisovano, incluyendo en él un fémur y una tibia encontrados en el fondo marino del Canal de Penghu, Taiwán. El fémur está datado por radiocarbono en 45 ka, mucho más reciente que los materiales de Bianfu. Se trata de un interesante momento temporal en que los humanos modernos ya estaban extendidos por Asia meridional. Estos nuevos fósiles forman parte de un conjunto de miles de huesos de animales desenterrados a 100 metros de profundidad por un arrastrero industrial en el lecho marino de este estrecho, situado entre Taiwán (al este) y las islas Penghu (al oeste), y adquiridos por investigadores en 2015. De entre ellos, la mandíbula Penghu 1 también se atribuyó por su proteoma a la especie denisovana (Tsutaya et al., 2025).
Lo más relevante de este estudio es el tamaño corporal inferido. El fémur Penghu 2 sería de un individuo masculino de 180 cm de estatura y 83 kg de peso, mientras que la tibia Penghu 3 sería de otro individuo masculino de 190 cm y 91 kg. El estudio proteómico halló la variante COL1A2 R996K de aminoácido en el colágeno tipo I que es característica de los denisovanos identificados anteriormente. En esta proteína, en la posición 996, los neandertales (y casi todos los humanos modernos) tienen arginina (R) en vez de lisina (K). El análisis filogenético también agrupa la mandíbula con los denisovanos.
Estos huesos presentan rasgos generalmente arcaicos, pero también algunos similares a los del humano moderno, como la pilastra femoral. El gran tamaño inferido para estos individuos, mayor que el de los H. erectus y H. sapiens de la región, plantea interrogantes sobre hasta qué punto las variaciones del tamaño corporal de los Homo del Pleistoceno asiático pueden explicarse mediante patrones climáticos propuestos por la regla de Bergmann, que predice una disminución latitudinal del tamaño corporal. Habría que preguntarse si la comparación entre el gran tamaño corporal estimado para los individuos de Penghu y el tamaño cerebral que inferimos para algunos denisovanos puede estar reflejando alguna relación causal.
Además, el análisis isotópico del fémur sugiere que el individuo formaba parte de una red trófica basada en recursos C4, compatible con ambientes abiertos como sabanas y llanuras aluviales o con una combinación de estos ambientes, y que consumía una alta proporción de proteína animal similar a la de algunos neandertales europeos, según publican Yoneda et al. (2026) en otro preprint.
Los hallazgos de Bianfu y de Penghu amplían nuestra visión de los denisovanos. Por una parte, expanden su distribución conocida en Asia y rellenan una laguna geográfica en el suroeste de China; por otra, tenemos por primera vez huesos largos que permiten comenzar a estudiar directamente su tamaño corporal, morfología, posibles demandas biomecánicas y las actividades de estos humanos, siempre teniendo en cuenta que Bianfu y Penghu están separados por una enorme distancia temporal y geográfica y que desconocemos su relación poblacional.
El último estudio se aleja de los fósiles y se centra en la genómica. Mediante un método denominado TRACE (Tracking Archaic Contributions via ARG -Ancestral Recombination Graphs- Estimation), Zhang et al. (2026) reconstruyeron árboles genealógicos locales a lo largo del genoma para buscar segmentos de ADN cuya historia evolutiva fuera mucho más antigua que la esperada y que, además, aparecieran dentro de regiones previamente identificadas como de origen denisovano. El análisis sugiere que entre un 3% y un 5% de la ascendencia genética denisovana reconstruida podría proceder de un linaje humano muy antiguo. Los modelos sitúan hace ¡1,8 Ma! la separación de este linaje respecto al que conduce a los humanos modernos. Sin embargo, no nos precipitemos en identificar a ese grupo como H. erectus, ya que el resultado procede de una reconstrucción estadística de la historia de los genomas, no de ADN recuperado de aquella población desaparecida. A su vez, el contacto que introdujo esta herencia en los antepasados de los denisovanos habría ocurrido hace más de 200 ka. Posteriormente, algunos grupos denisovanos transmitieron a los antepasados de determinadas poblaciones humanas actuales una pequeña fracción de esa fracción de su propio ADN.
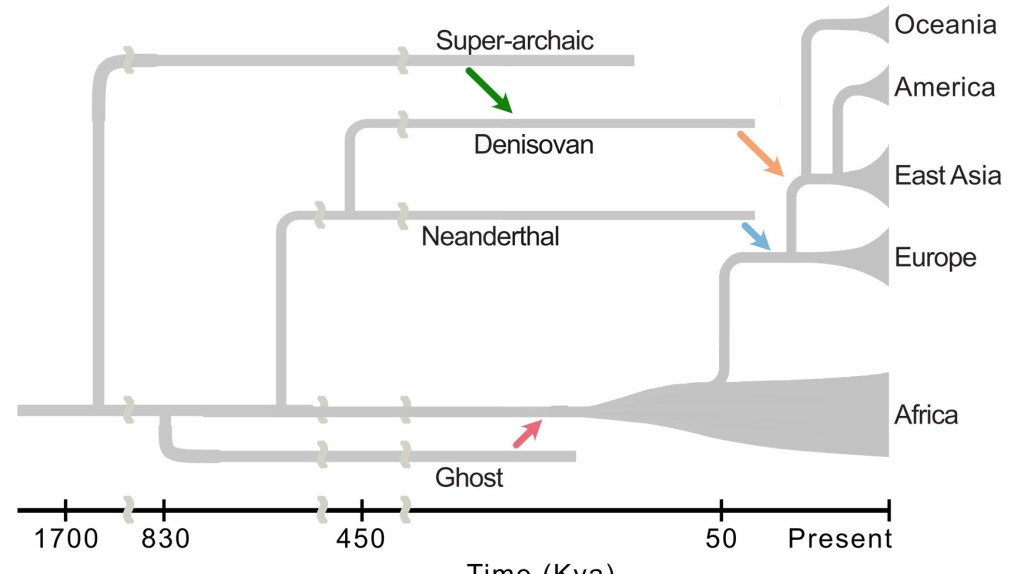
Por tanto, los denisovanos no solo participaron en la historia de mezclas que caracteriza al Pleistoceno asiático, sino que ellos mismos ya eran el resultado de una historia anterior de encuentros entre poblaciones humanas en episodios antiguos de intercambio genético entre especies humanas. Como suele ocurrir, ahora se abren más preguntas que respuestas tras conocer toda esta información, por ejemplo:
- ¿Cuál sería la relación que puede existir entre los individuos de Penghu, separados de los de Bianfu por más de 90 ka, y otros grupos humanos? ¿De qué linaje denisovano antiguo provenía ese rastro genómico superarcaico?
- ¿Representan Penghu y Bianfu poblaciones relacionadas dentro de una misma historia evolutiva, o bajo el término «denisovanos» estamos agrupando linajes asiáticos con adaptaciones climáticas y ambientales muy diversas, pero que compartían determinados rasgos genéticos?
- ¿Cuántos fósiles asiáticos del Pleistoceno que hoy atribuimos a H. erectus u otros grupos podrían corresponder realmente a poblaciones denisovanas?
- Por cierto, ¿lograremos que se popularice la denominación taxonómica Homo longi para «los denisovanos»?

