Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Cuando en publicaciones de trabajos genómicos se habla de grupos humanos superarcaicos, el pensamiento siempre se me va a Homo erectus, esperando (y deseando) que las evidencias moleculares de este grupo humano permitan acotar qué es esta especie y, en particular, si es posible caracterizar su longevidad, éxito evolutivo y distribución geográfica en África y Asia. Desde su aparición en África hace unos 2 Ma (millones de años), poblaciones erectinas se extendieron por toda Eurasia, desde su extremo occidental, dejando su rastro en humanos con rasgos afines a H. erectus en la Sima del Elefante (Atapuerca, España) hace 1,4 Ma, hasta su extremo oriental, llegando a persistir en Indonesia hasta hace solo unos 100 ka (miles de años).

Sin embargo, a pesar de su importancia en nuestra historia evolutiva, conocemos muy poco sobre su diversidad genética, debido a que precisamente la antigüedad de sus fósiles y las condiciones de conservación han dificultado la recuperación de ADN antiguo. En ausencia de este, la investigación en esa cronología tiene un gran potencial con la paleoproteómica. En concreto, el esmalte dental constituye un material especialmente favorable en esta técnica, por su elevada mineralización y capacidad de preservar restos proteicos. Hasta ahora, de H. erectus se habían podido analizar algunos péptidos de un diente de Dmanisi (Georgia, 1,77 Ma), pero sin resultados concluyentes sobre variantes distintivas.

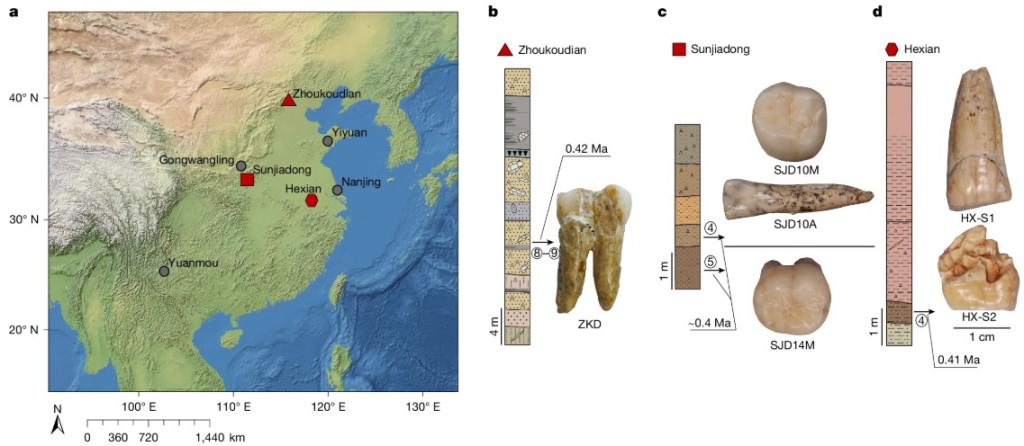
Qiaomei Fu y colaboradores han conseguido un gran avance en este ámbito, mediante el análisis de proteínas del esmalte dental de seis individuos de H. erectus de tres yacimientos chinos contemporáneos de hace unos 400 ka, que abarcan una gran región de norte a sur: Zhoukoudian (el icónico Hombre de Pekín), Hexian y Sunjiadong, junto con una muestra de Harbin, denisovano, utilizado como comparación. Mediante espectrometría de masas, se han recuperado entre 650 y 3457 péptidos endógenos por espécimen, correspondientes a entre 6 y 11 proteínas del esmalte. Los principales resultados son los siguientes.

  • Para empezar, se ha identificado el sexo de todos los individuos a partir de la proporción de péptidos específicos de AMELY frente a los de AMELX. El de Zhoukoudian, dos de Sunjiadong, dos de Hexian y el individuo de Harbin resultaron masculinos, mientras que otro de Sunjiadong es femenino.
  • El resultado más relevante fue la identificación de dos variantes de aminoácidos en la ameloblastina (AMBN), proteína implicada en la formación del esmalte dental. La primera, denominada A253G, no se había identificado anteriormente en ningún otro linaje humano ni en otros primates analizados. Al aparecer en los seis individuos de forma compartida y no identificada en los grupos comparativos disponibles, en principio podemos tener una característica distintiva de los H. erectus del Pleistoceno medio asiático. Eso sí, prudencia… La representatividad de seis muestras no permite aún generalizarla a toda la especie.
  • Esta variante AMBN(A253G) también permite afirmar que los individuos de Hexian están molecularmente vinculados a los ejemplares de Zhoukoudian y Sunjiadong y son de H. erectus. Esta cuestión generaba dudas hasta ahora, ya que su morfología presenta algunas semejanzas con los fósiles de Java, pero se había llegado a proponer su atribución a los denisovanos.
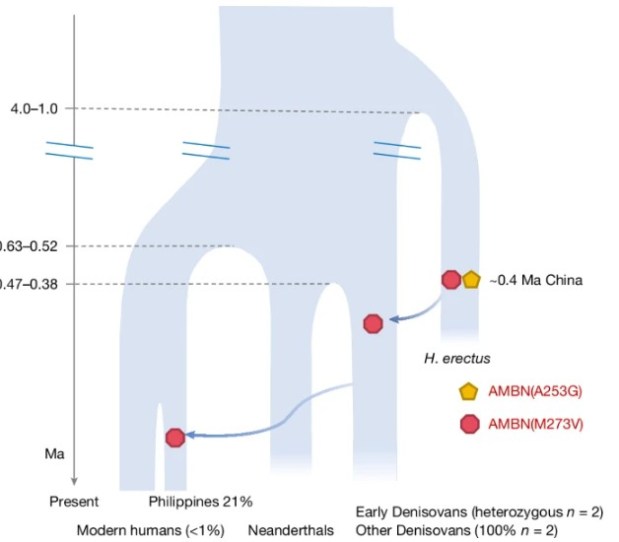
  • La segunda variante identificada, AMBN(M273V) también está presente en los seis individuos, pero ya se había identificado previamente: el alelo derivado correspondiente, rs564905233, aparece en denisovanos y en algunas poblaciones humanas actuales, con frecuencias del 21% en Filipinas, 1,17% en India y 0,71% en Papúa Nueva Guinea, y está ausente en la mayoría de las demás poblaciones. Por ello, los autores proponen que esta variante pudo llegar a los denisovanos mediante el flujo genético procedente de una población humana antigua relacionada con H. erectus.
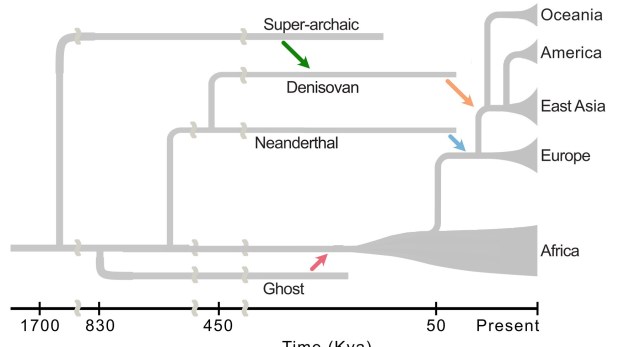
  • Hemos de conectar esta hipótesis con las evidencias genómicas de introgresión de ADN de linajes superarcaicos en los denisovanos que hemos conocido recientemente. Son poblaciones cuyo origen se remontaría a una divergencia anterior a 1 Ma respecto al antepasado común de denisovanos, neandertales y humanos modernos.
  • Precisamente, hace muy poco Zhang et al. (2026) encontraron que entre un 3% y un 5% de la ascendencia genética denisovana reconstruida podría proceder de un linaje humano superarcaico, cuya separación respecto al que conduce a los humanos modernos sucedería hace 1,8 Ma. Hace apenas unos meses sugería no precipitarnos en identificar a ese grupo como H. erectus, ya que el resultado procedía de una reconstrucción estadística de la historia de los genomas, no de ADN recuperado de aquella población desaparecida. Hoy ya podemos comprar más papeletas para apostar por esa hipótesis.
  • En una etapa posterior, parte de la ascendencia denisovana pasó posteriormente a los humanos modernos, mediante distintos eventos de introgresión de poblaciones próximas a los denisovanos hacia ancestros modernos del sudeste asiático y Oceanía. Se han identificado al menos tres episodios de este tipo, algunos posiblemente ocurridos hace tan solo 20 ka (Gokcumen, 2019).
Sigue leyendo →
Los denisovanos se multiplican: nuevos fósiles y una historia evolutiva más compleja

Los denisovanos se multiplican: nuevos fósiles y una historia evolutiva más compleja

Durante años, los denisovanos han estado representados por un puñado de fósiles y una historia genética inesperada en el árbol filogenético humano. Hoy sabemos que su distribución geográfica fue muy amplia: desde la cueva de Denisova, en Siberia, hasta el Tíbet, China, Taiwán y Laos. Varios resultados publicados casi simultáneamente en las últimas semanas contribuyen ahora a conocer un poco mejor su complejo encaje evolutivo. Dos de ellos presentan nuevos hallazgos procedentes de la cueva de Bianfu (suroeste de China) y del Canal de Penghu (frente a Taiwán). Los restos de Bianfu proporcionan datos sobre la anatomía y la forma de vida de estos humanos, mientras que los fósiles recuperados en Penghu son un gran avance para conocer el esqueleto poscraneal denisovano, aunque este último trabajo todavía está en revisión por pares. Juntos, estos hallazgos no solo ensanchan el mapa de los denisovanos, sino que empiezan a revelar la diversidad de formas, ambientes y estrategias de subsistencia que pudo existir dentro de este enigmático grupo humano. El último estudio reseñado aporta una reconstrucción genómica de la historia de sus intercambios con otras poblaciones humanas. En conjunto, observando los distintos fósiles denisovanos, separados por miles de kilómetros y por más de 100.000 años, estos trabajos nos hacen reflexionar sobre su enorme diversidad anatómica, ecológica y tal vez hasta biológica.

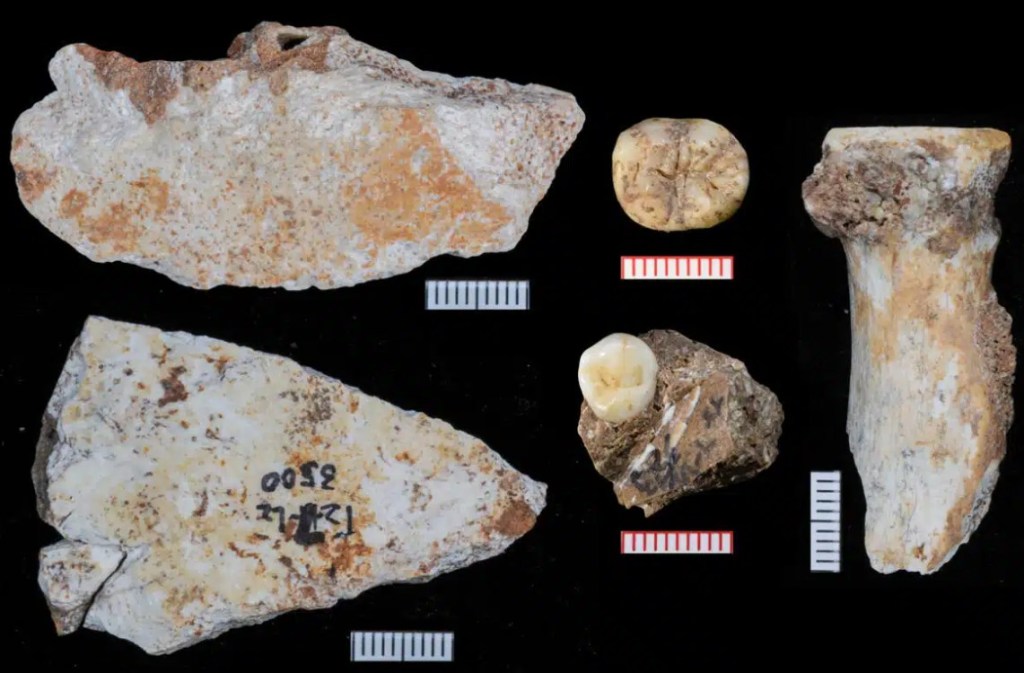
Comencemos por Rao, Xing, Ruan et al. (2026), que examinaron más de 60.000 fragmentos óseos de mamíferos para localizar restos que pudieran pertenecer a homininos. De los 22 candidatos seleccionados, el análisis mediante ZooMS (técnica que identifica especies a partir de fragmentos de colágeno) señaló tres como pertenecientes al género Homo: dos fragmentos de hueso parietal, bastante gruesos, y la porción proximal de un radio. No pudo recuperarse ADN antiguo, pero sí se pudo hacer análisis proteómico, que identificó la variante del colágeno COL1A2 R996K, compartida con Denisova 3 (falange del dedo meñique de la niña denisovana que reveló la existencia de esta especie) y otros restos denisovanos. Por ello, los tres huesos, junto con dos dientes previamente excavados, fueron atribuidos a este grupo humano. El análisis proteómico de los dientes también detectó péptidos de amelogenina Y, una proteína codificada por un gen localizado en el cromosoma Y, lo que indica que procedían de individuos masculinos.

Los restos humanos proceden de niveles datados aproximadamente entre 167 y 134 ka (MIS 6). El hallazgo más novedoso es el fragmento de radio, de unos 4,5 cm, por el exiguo registro poscraneal denisovano. Probablemente perteneció a un adulto. La cabeza radial (que participa en la articulación del codo) es grande y la orientación medial de la tuberosidad (prominencia en la que se inserta el tendón distal del bíceps braquial) recuerdan a rasgos neandertales, mientras que la forma general y determinadas características de su sección transversal se aproximan más a Homo sapiens. Aunque todavía es imposible reconstruir las actividades que realizaba el individuo, la morfología de su codo apunta a que le habría permitido levantar objetos pesados, como en los neandertales, pero también realizar movimientos ágiles y precisos, como en los humanos modernos. Esta combinación iría esbozando un modelo biomecánico específico de los denisovanos, pero debe contrastarse cuando aparezcan más restos poscraneales. Por ahora no podemos saber si la morfología del radio es la habitual de los denisovanos o puede ser una variación individual.

Sigue leyendo →
¡Todos los 20 Homo naledi analizados son hembras!

¡Todos los 20 Homo naledi analizados son hembras!

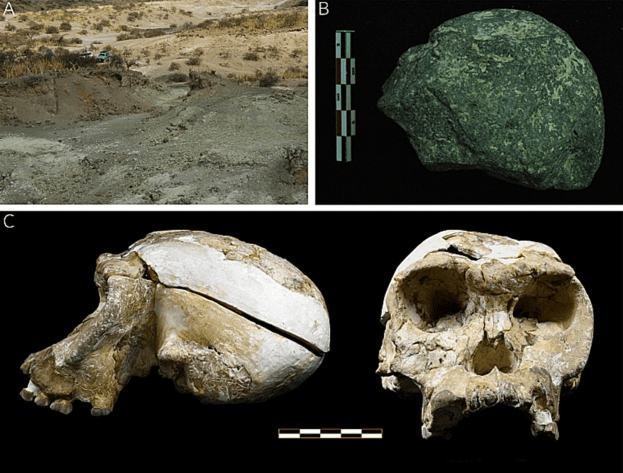
Recordemos la enigmática especie Homo naledi, de tamaño sorprendentemente pequeño, conocida solo en el sistema de cuevas sudafricanas de Rising Star. Este grupo humano existió hace unos 300.000 años, de forma casi contemporánea a la evolución de Homo sapiens en regiones no muy lejanas. Madupe et al. (2026) han estudiado la proteína amelogenina de 23 dientes de H. naledi, pertenecientes a un mínimo de 20 individuos. Esta proteína tiene variantes específicas diferentes según provenga de un gen del cromosoma X femenino o de un gen del cromosoma Y masculino. Los autores han hallado que, en 19 de los 20 individuos la variante AMELY (macho) estaba ausente (probabilidad >95%), y también lo estaba probablemente (50-95%) en el otro. Por tanto, entre 10 individuos adultos y 10 subadultos analizados, aparentemente todos son hembras.

Este es un hallazgo totalmente inesperado. Para que nos hagamos una idea, en una muestra de 20 individuos distintos, asumiendo una proporción sexual poblacional de 1:1, la probabilidad de encontrar todos los individuos hembra es extremadamente baja, 0,0000954%.

Por tanto, el estudio a mí me genera muchísimas preguntas que deberán ser trabajadas a partir de ahora:

  • Tenemos que revisar cualquier interpretación previa respecto al leve dimorfismo sexual que se había predicho entre machos y hembras de la especie, atendiendo a la distinción entre el tamaño de los esqueletos. Destaca el espécimen U.W. 102a (individuo LES1, apodado Neo), considerado tradicionalmente uno de los mejores candidatos a macho por su robustez, tamaño corporal y craneal. Pues bien, este individuo también carece de AMELY, es hembra.
  • Nos sorprendía el pequeño tamaño de estos humanos (del orden de 150 cm y 45 kg), resultando ahora que todos los especímenes de la muestra analizada son hembras. Hemos de esperar a la aparición de machos de H. naledi para revisitar nuestras interpretaciones del tamaño corporal. Podemos incluso especular con un tamaño corporal de machos y un dimorfismo sexual tal vez más próximo al de los humanos modernos que estaban evolucionando no lejos del sistema Rising Star.
  • ¿Puede corresponder este hallazgo a una motivación económica, el reparto de tareas entre machos y hembras? Para ello, debemos asumir que las hembras eran más pequeñas y podían acceder con menos dificultad por las galerías de Rising Star para realizar alguna actividad determinada. Sin embargo, el tamaño de los subadultos de ambos sexos no excedería el de una hembra adulta, lo que debilita esta hipótesis.
  • ¿Puede corresponder a una motivación cultural, una práctica funeraria por la cual depositaron solo cuerpos de mujeres en las cuevas? Ni siquiera hay bebés de sexo masculino que habrían sido enterrados con sus madres. Este escenario cultural reforzaría la hipótesis funeraria en H. naledi que ha sido cuestionada o, más bien, ilustraría una práctica funeraria muy concreta.
  • En el estudio se menciona como referencia la proporción de sexos desequilibrada 1:0,5 (F:M) en los individuos de la cueva portuguesa del Escoural (Granja et al., 2023), pero este caso es del Neolítico.
  • A mí me gusta más pensar en la Sima de los Huesos (España) que, con 430 ka de antigüedad, es un caso mucho más próximo cronológicamente al de H. naledi. Entre los 29 individuos de la Sima, el sesgo existente es el fuerte predominio de adolescentes y adultos jóvenes, que representan a más del 80%. En cambio, no hay sesgo por sexos en la Sima. Este caso suele considerarse un depósito intencional, con el que a veces se ha comparado a Rising Star.
  • Sin tener machos, tampoco podemos apresurarnos a buscar encajes de la escasa variabilidad morfológica de H. naledi comparándola con la de otras especies humanas. Además, H. naledi presenta dos sustituciones de aminoácidos: una variante derivada en la amelogenina X (AMELX) respecto a los demás representantes conocidos del género Homo y una variante arcaica P635 en COL17A1 (una proteína estructural presente en las células que forman el esmalte), identificada en cinco individuos. Esta última también aparece en dos ejemplares de Paranthropus robustus (SK835 y SK14132), mientras que humanos modernos, neandertales y denisovanos presentan la variante derivada A635. Más incógnitas a despejar.
  • Además, no hay variación en las secuencias de proteínas analizadas. Todos los individuos tenían secuencias muy similares. Esto podría indicar el aislamiento de esta población humana y/o su descendencia de una población fundadora muy pequeña. Una población grande y diversa es inconsistente con estos resultados.
  • Las conclusiones de este trabajo se verían alteradas si se demostrara que algunos machos de H. naledi presentaban una deleción o una mutación del gen AMELY que impidiera su detección mediante paleoproteómica. Los autores consideran poco probable este escenario y descartan que la ausencia de AMELY se deba simplemente a limitaciones técnicas o a una mala conservación de la proteína, ya que en otros fósiles de Australopithecus africanus, Paranthropus robustus y Homo antecessor sí se han identificado con éxito individuos masculinos mediante este mismo procedimiento.
Sigue leyendo →
Resiliencia de los neandertales en Prado Vargas y el rebautizo de Vera, en realidad niño

Resiliencia de los neandertales en Prado Vargas y el rebautizo de Vera, en realidad niño

El yacimiento de Prado Vargas, situado en el complejo kárstico de Ojo Guareña (Burgos, norte de la península ibérica), aporta información clave sobre las últimas poblaciones neandertales antes de la llegada de Homo sapiens a la región. Un estudio de carácter interdisciplinar (Navazo et al., 2021) reconstruye la vida cotidiana y las tradiciones culturales de estos grupos combinando análisis de estratigrafía, cronología, polen, fauna, industria lítica y restos humanos.

El nivel arqueológico más relevante, N4, se ha datado mediante OSL y radiocarbono entre 54,7 y 39,8 ka (miles de años), por tanto en el MIS 3, un periodo de intensos cambios climáticos. Este nivel se interpreta como un palimpsesto producto de ocupaciones recurrentes, probablemente estacionales (verano-otoño), cuando la cueva permanecía seca. Entre los hallazgos destaca un diente deciduo de un niño neandertal, evidencia directa de la presencia de individuos jóvenes en el grupo.

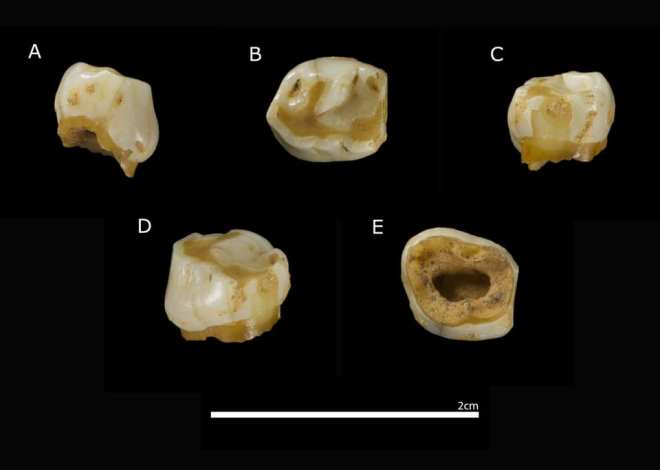
El mencionado diente es un deciduo inferior izquierdo (PV-1360) de un individuo de unos 9-10 años, que lo perdió de manera natural antes de la muerte. Inicialmente se le apodó Vera, que es el nombre de la nieta de Beni, dueño del prado donde se encuentra el yacimiento.

Su conservación ha permitido estudiar las proteínas del esmalte. El esmalte dental funciona como un sistema cerrado, protegiendo las proteínas originales durante decenas de milenios. Entre ellas destaca la amelogenina, codificada por dos genes parálogos: AMELX en el cromosoma X y AMELY en el cromosoma Y. Gracias a la espectrometría de masas aplicada a un pequeño fragmento de esmalte (unos 30 mg), fue posible detectar péptidos exclusivos de AMELY, lo que certifica que el individuo poseía un cariotipo XY. Es decir, cromosómicamente era un individuo masculino.

Este trabajo (Carrillo-Martín, 2025), presentado en el congreso de la ESEB (Evolutionary Society for Evolutionary Biology), constituye un nuevo ejemplo significativo de cómo la paleoproteómica puede suplir la ausencia de ADN en fósiles antiguos, aportando información biológica esencial, como la determinación del sexo o las relaciones filogenéticas.

Ahora bien, ¿cómo rebautizar al joven neandertal…? Yo propondría Vero, a partir del latín verus («verdadero»), para celebrar la determinación de su sexo cromosómico y, en breve, su certificación molecular como neandertal, gracias de nuevo a su proteoma.

Sigue leyendo →
Paleoantropología: novedades 2º trimestre 2025

Paleoantropología: novedades 2º trimestre 2025

Me había propuesto en este trimestre ser realmente estricto en el número de novedades seleccionadas. Os aseguro que lo he sido, a pesar de lo cual han sido 49 las que recopilo. Estamos en un tiempo fantástico para la paleoantropología.

  • Las tasas de cicatrización de heridas humanas son tres veces más lentas que en primates no humanos, las cuales, a su vez, son similares a las de otras especies animales como roedores. Matsumoto-Oda y colaboradores se plantean la desventaja evolutiva que pudo haber supuesto la pérdida del vello corporal. A diferencia de los grandes simios, los humanos experimentaron en su evolución un aumento en la densidad de las glándulas sudoríparas y una disminución en la densidad del vello corporal, acompañado del engrosamiento del tejido subcutáneo como forma alternativa de protección interna. Esto habría contribuido a la evolución de tasas de cicatrización más lentas, que pueden dificultar el acceso a los alimentos, reducir la capacidad de evadir depredadores e influir sobre las necesidades de energía para la reparación de tejidos, el crecimiento y la reproducción. Es posible que el desarrollo del cuidado a individuos mayores y discapacitados entre humanos, así como el uso de plantas medicinales, mitigaran la desventaja evolutiva de la cicatrización tardía de las heridas.
  • Los primeros Homo (incluyendo H. habilis y H. rudolfensis) y Paranthropus boisei son propuestos como los fabricantes de útiles olduvayenses (Williams et al., 2025). Los primeros miembros del género Homo siguen siendo los principales candidatos para la fabricación y el uso del Olduvayense a lo largo de su rango temporal más amplio (c. 3,25-1,6 Ma, millones de años) pero, considerando que el Olduvayense pudo darse hasta hace 1,2 Ma, P. boisei sería el principal candidato para la producción de los artefactos posteriores.
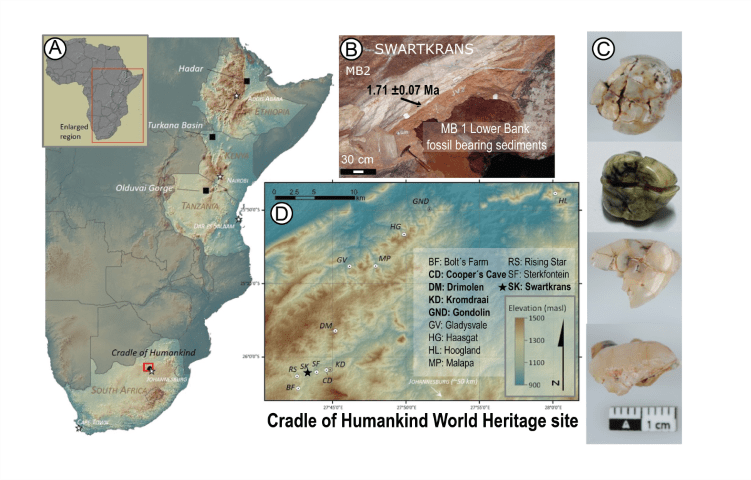
  • El espécimen SWT1/HR-2 de Paranthropus robustus, compuesto por un os coxae parcial articulado, el fémur casi completo y la tibia completa, procedente de Swartkrans Miembro 1 (1,7-2,3 Ma), indica bipedación completa y una estatura de solo 1,03 m, el hominino más pequeño conocido (Pickering et al., 2025).
  • Tras conocer el sexo biológico del espécimen Sts 63 (Australopithecus africanus) del Miembro 4 de Sterkfontein gracias a su proteoma conservado en un diente (Madupe et al., 2025), ahora han seguido el mismo camino cuatro especímenes de Paranthropus robustus de Swartkrans, de unos 2 Ma: son los dientes SK 830, SK 835, SK 850 y SK 14132. El estudio de la proteína amelogenina ha podido determinar que dos de los dientes tenían la variante específica de los machos (Madupe et al., 2025). Además, el polimorfismo de un solo aminoácido y la variación en la forma de la unión esmalte-dentina indicaron subgrupos potenciales presentes dentro de P. robustus. Anteriormente, se tenía identificada una variante genética única para la proteína polishina en dicha especie, pero este estudio mostró variaciones entre los cuatro individuos analizados. Esto podría reflejar dinámicas poblacionales complejas, microevolución o la presencia de grupos o taxones distintos.
Sigue leyendo →