Los denisovanos se multiplican: nuevos fósiles y una historia evolutiva más compleja

Los denisovanos se multiplican: nuevos fósiles y una historia evolutiva más compleja

Durante años, los denisovanos han estado representados por un puñado de fósiles y una historia genética inesperada en el árbol filogenético humano. Hoy sabemos que su distribución geográfica fue muy amplia: desde la cueva de Denisova, en Siberia, hasta el Tíbet, China, Taiwán y Laos. Varios resultados publicados casi simultáneamente en las últimas semanas contribuyen ahora a conocer un poco mejor su complejo encaje evolutivo. Dos de ellos presentan nuevos hallazgos procedentes de la cueva de Bianfu (suroeste de China) y del Canal de Penghu (frente a Taiwán). Los restos de Bianfu proporcionan datos sobre la anatomía y la forma de vida de estos humanos, mientras que los fósiles recuperados en Penghu son un gran avance para conocer el esqueleto poscraneal denisovano, aunque este último trabajo todavía está en revisión por pares. Juntos, estos hallazgos no solo ensanchan el mapa de los denisovanos, sino que empiezan a revelar la diversidad de formas, ambientes y estrategias de subsistencia que pudo existir dentro de este enigmático grupo humano. El último estudio reseñado aporta una reconstrucción genómica de la historia de sus intercambios con otras poblaciones humanas. En conjunto, observando los distintos fósiles denisovanos, separados por miles de kilómetros y por más de 100.000 años, estos trabajos nos hacen reflexionar sobre su enorme diversidad anatómica, ecológica y tal vez hasta biológica.

Comencemos por Rao, Xing, Ruan et al. (2026), que examinaron más de 60.000 fragmentos óseos de mamíferos para localizar restos que pudieran pertenecer a homininos. De los 22 candidatos seleccionados, el análisis mediante ZooMS (técnica que identifica especies a partir de fragmentos de colágeno) señaló tres como pertenecientes al género Homo: dos fragmentos de hueso parietal, bastante gruesos, y la porción proximal de un radio. No pudo recuperarse ADN antiguo, pero sí se pudo hacer análisis proteómico, que identificó la variante del colágeno COL1A2 R996K, compartida con Denisova 3 (falange del dedo meñique de la niña denisovana que reveló la existencia de esta especie) y otros restos denisovanos. Por ello, los tres huesos, junto con dos dientes previamente excavados, fueron atribuidos a este grupo humano. El análisis proteómico de los dientes también detectó péptidos de amelogenina Y, una proteína codificada por un gen localizado en el cromosoma Y, lo que indica que procedían de individuos masculinos.
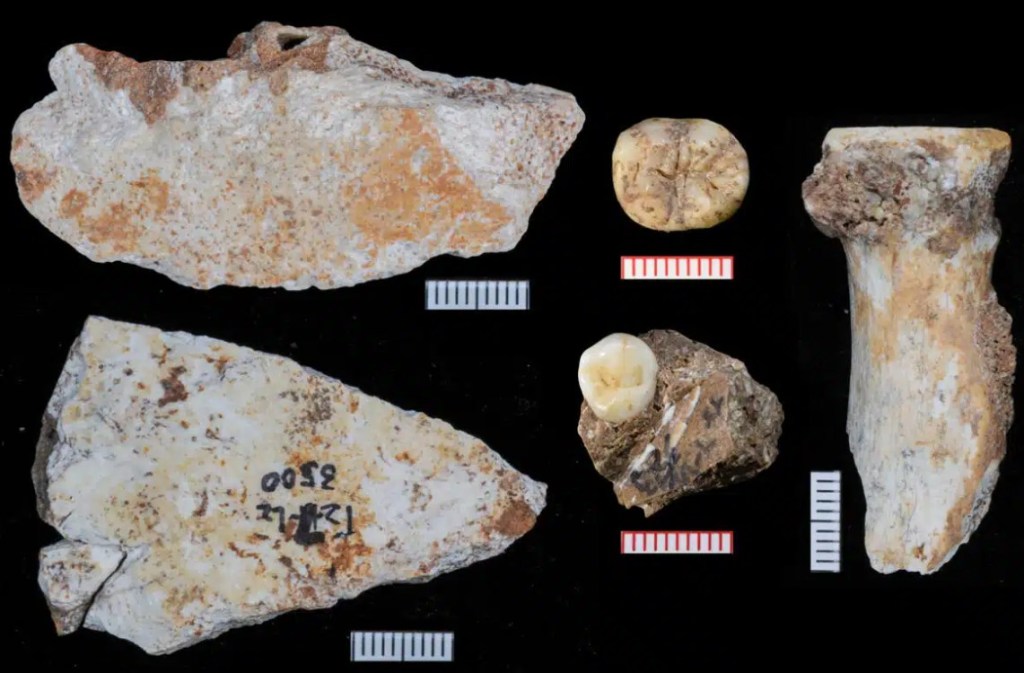
Los restos humanos proceden de niveles datados aproximadamente entre 167 y 134 ka (MIS 6). El hallazgo más novedoso es el fragmento de radio, de unos 4,5 cm, por el exiguo registro poscraneal denisovano. Probablemente perteneció a un adulto. La cabeza radial (que participa en la articulación del codo) es grande y la orientación medial de la tuberosidad (prominencia en la que se inserta el tendón distal del bíceps braquial) recuerdan a rasgos neandertales, mientras que la forma general y determinadas características de su sección transversal se aproximan más a Homo sapiens. Aunque todavía es imposible reconstruir las actividades que realizaba el individuo, la morfología de su codo apunta a que le habría permitido levantar objetos pesados, como en los neandertales, pero también realizar movimientos ágiles y precisos, como en los humanos modernos. Esta combinación iría esbozando un modelo biomecánico específico de los denisovanos, pero debe contrastarse cuando aparezcan más restos poscraneales. Por ahora no podemos saber si la morfología del radio es la habitual de los denisovanos o puede ser una variación individual.

Sigue leyendo →
Paleoantropología: novedades 2º trimestre 2026

Paleoantropología: novedades 2º trimestre 2026

Como cada trimestre, aquí llega el resumen de las principales novedades publicadas en el ámbito de la paleoantropología, ordenadas cronológicamente según la antigüedad de los hallazgos estudiados.

  • Una nueva estimación para la divergencia de los linajes chimpancé y humano la sitúa en 8,69-7,28 Ma, anterior a los c. 7 Ma que se venía asumiendo, basada en datos genéticos y evidencias fósiles (d’Oliveira Coelho et al., 2026).
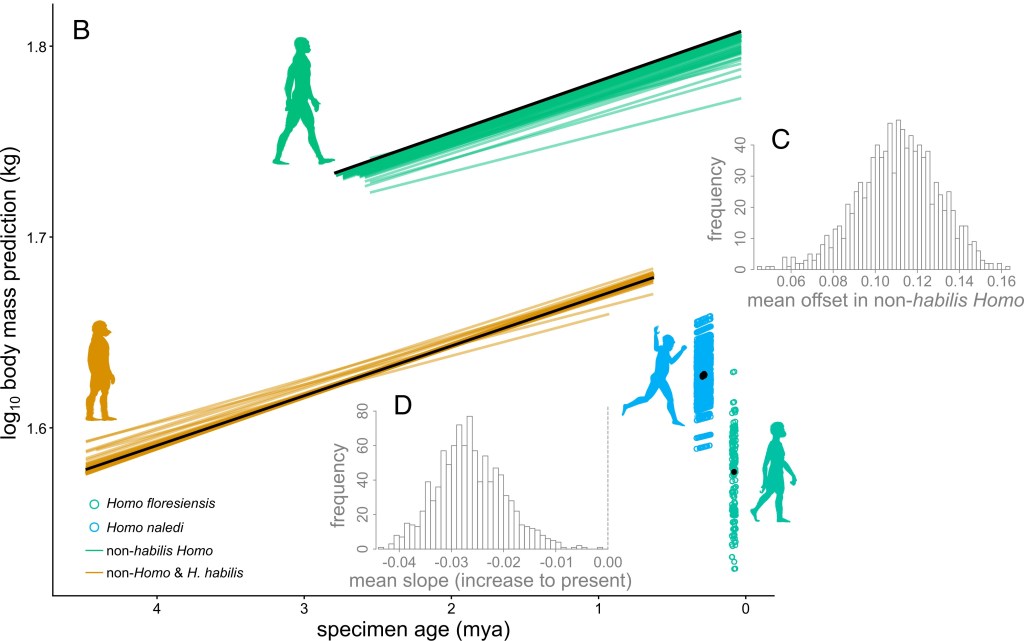
  • A partir de un análisis de 386 especímenes de 21 taxones, Gardner et al. (2026) publican evidencias de un fuerte aumento de la masa corporal para todas las especies tardías de Homo, excepto Homo habilis, no como tendencia continua, sino como un aumento progresivo en los homininos más antiguos, seguido de un cambio concentrado dentro del género Homo, acompañado de ramas paralelas que siguieron caminos distintos.
  • Hunter y colaboradores han estudiado la variación en la morfología carpiana de los homininos, un rasgo relevante desde el punto de vista biomecánico, encontrando una retención de rasgos potencialmente ancestrales que persistieron hasta Homo naledi. Con ello, sugieren que el carpo de los homininos habría evolucionado a partir de una muñeca similar a la de los simios africanos, y que su reorganización relacionada con la manipulación de herramientas de piedra habría ocurrido ya avanzado el Pleistoceno medio. Además, proponen que el último ancestro común chimpancé-humanos caminaría con nudilleo (knuckle-walking).
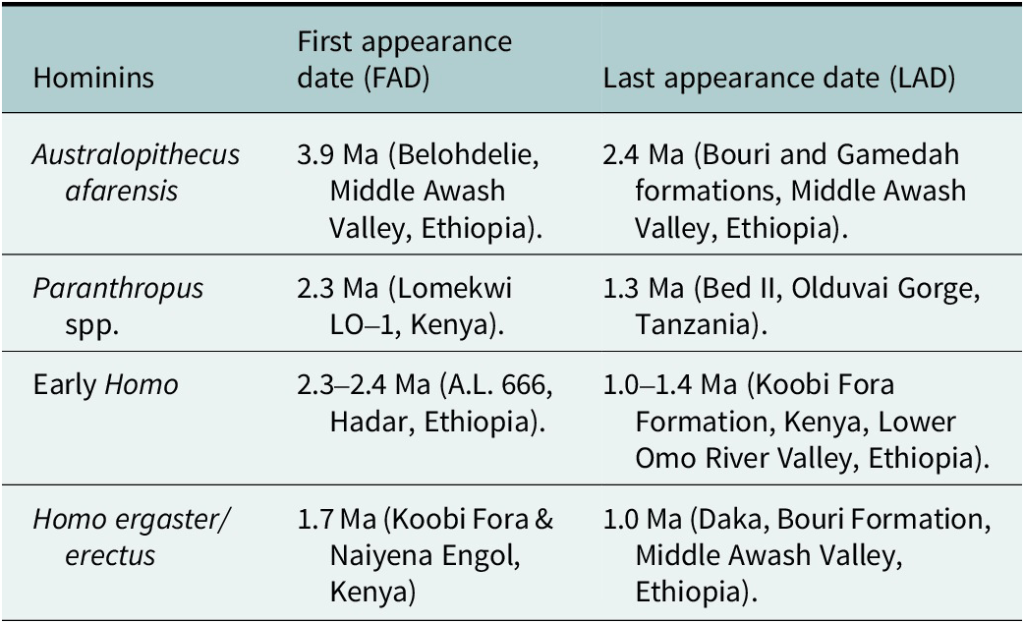
  • A partir de evidencias de útiles líticos asociadas con la desaparición de especies de Australopithecus, Paranthropus y Homo temprano en el registro africano oriental entre 0,8 y 3,5 Ma, Shea (2026) sugiere que la transición evolutiva entre los primeros Homo y Homo ergaster/erectus parece estar correlacionada con un cambio en la talla de ocasional a habitual, pero las últimas apariciones de Australopithecus y Paranthropus no parecen estar correlacionadas con cambios importantes en el registro.
  • Los nuevos hallazgos de restos fósiles de las extremidades inferiores de parántropos y australopitecos han permitido comparar su estructura ósea interna, concretamente entre especímenes de Paranthropus robustus de Swartkrans (parte de la pelvis, un fémur casi completo y una tibia completa del individuo SWT1/HR-2 del Miembro 1 de Swartkrans) y de especímenes de Australopithecus del Miembro 4 de Sterkfontein (Cazenave et al., 2026). La estructura ósea en los parántropos se acerca más a la de los grandes simios africanos que a la de los australopitecos. Esto sugiere una flexión más frecuente en P. robustus de las articulaciones del tobillo, la rodilla y la cadera, normalmente asociada a la trepa. Los autores interpretan una bipedación terrestre más constante en Australopithecus, y un repertorio de locomoción más diverso en los posteriores P. robustus. Como conclusiones derivadas, ambos taxones explotarían nichos ecológicos diferentes (los parántropos, un territorio más extenso). Nuevamente, se observa una evolución nada lineal de la bipedación en los homininos, y surge la necesidad de comparar este comportamiento locomotor con el de Paranthropus boisei en África oriental, para buscar similitudes que podrían haber caracterizado al género en cuanto a la frecuencia de posturas muy flexionadas de la cadera, la rodilla y el tobillo.
Sigue leyendo →
Nuevas señales de selección natural: la evolución humana continúa ¿y se acelera?

Nuevas señales de selección natural: la evolución humana continúa ¿y se acelera?

Un trabajo de Akbari, Perry, Barton y colaboradores (2026) observa un aumento en la intensidad de la selección natural en el registro genómico durante los últimos 10.000 años. Se trata del mayor estudio realizado hasta ahora sobre ADN humano antiguo, con datos de 15.836 euroasiáticos occidentales (10.016 con nuevos datos), procedentes de poblaciones antiguas de Europa y Oriente Próximo desde el surgimiento de la agricultura.

Los resultados muestran que la selección natural ha tenido un papel muy intenso en la evolución humana reciente, a través de numerosos casos de selección direccional, un proceso en el que variantes genéticas ventajosas aumentan rápidamente en frecuencia. Este trabajo aporta evidencia sólida de que la evolución humana no solo continúa, sino que se caracteriza por una mayor intensidad o detectabilidad de señales de selección en el registro reciente de Eurasia occidental.

El auge de la agricultura introdujo nuevos alimentos, patógenos y otros desafíos a medida que las poblaciones crecían y aumentaba la proximidad con animales domesticados. Esta gran transformación de los sistemas sociales y económicos humanos lógicamente tuvo consecuencias adaptativas. Sin embargo, los estudios genómicos hasta ahora solo habían identificado alrededor de una veintena de casos de selección reciente ampliamente aceptados, entre los que destacan:

  • La persistencia de la lactasa, es decir, la tolerancia a la leche en adultos en buena parte de la población mundial, que es el caso paradigmático de selección fuerte y reciente.
  • La pigmentación de piel, ojos y cabello como adaptación a la radiación ultravioleta.
  • La resistencia a determinadas enfermedades infecciosas, como la malaria (anemia falciforme).

Otras posibles señales identificadas estaban más discutidas, como el metabolismo de la dieta (almidón, grasas, etc.) o ciertas funciones inmunitarias. En conjunto, predominaba una cierta idea de que los pulsos de selección fuerte y rápida eran relativamente escasos en la evolución humana reciente.

El nuevo estudio incrementa radicalmente el tamaño de la muestra y, sobre todo, permite analizar directamente cambios por selección direccional en la frecuencia de variantes genéticas en diferentes grupos que vivieron en diferentes épocas. Esto hace más posible distinguir la acción de la selección natural de otras fuerzas como la deriva genética, cambios aleatorios o reemplazos poblacionales que también alteran la composición genética (por ejemplo, la sustitución de cazadores-recolectores europeos por agricultores de Oriente Próximo), aunque asegurar esa distinción sigue siendo un trabajo complejo.

Como resultado, se identificaron 479 variantes candidatas con indicios de selección direccional, de distinta magnitud y robustez. Entre los principales patrones observados destacan:

  • Enfermedades infecciosas y sistema inmunitario, gran protagonista de los resultados de este trabajo: variantes que afectan a la respuesta a patógenos y la inflamación, que sugieren una adaptación continua a epidemias y nuevos entornos, siempre teniendo en cuenta que las trayectorias de variantes inmunes suelen implicar combinaciones complejas, no adaptaciones lineales. Algunos ejemplos son:
    • Una variante genética vinculada a un mayor riesgo de desarrollar esclerosis múltiple (Barrie et al. 2024) experimentó un aumento drástico en su frecuencia hace unos 6000 años, pero se ha vuelto menos común en algunos grupos europeos en los últimos 2000 años.
    • Una variante vinculada a la susceptibilidad a la tuberculosis se volvió menos común en los últimos 3000 años (Kerner et al., 2021) pero, antes de esto, su frecuencia aumentó considerablemente, posiblemente debido a la aparición de otros patógenos.
    • Una variante que confiere resistencia al VIH en los humanos modernos se hizo más común hace entre 6000 y 2000 años, posiblemente porque también protegía contra las bacterias causantes de la peste, aunque esta es una hipótesis muy debatida.
  • Metabolismo y dieta: señales en genes implicados en el procesamiento de nutrientes y el uso de energía, más allá del caso clásico de la lactasa, que ilustran una adaptación compleja a dietas agrícolas.
  • Rasgos complejos (poligénicos): combinaciones de alelos relacionados con rendimiento cognitivo, estatura o menor grasa corporal parecen haber aumentado su frecuencia, mientras que habrían disminuido la frecuencia de combinaciones relacionadas con diabetes tipo 2, esquizofrenia o trastorno bipolar. Estos resultados son inciertos, ya que los efectos poligénicos están calibrados en poblaciones modernas y son sensibles a sesgos poblacionales y estratificación, por lo que no está claro cómo se podrían extrapolar a fenotipos adaptativos en el pasado.
  • Pigmentación: identificación de diez variantes asociadas a tonos de piel más claros y el cabello rojo.
  • Otros rasgos fisiológicos: cambios en variantes relacionadas con crecimiento, desarrollo y funciones biológicas generales. Como curiosidad, una causa de la calvicie masculina se ha vuelto mucho menos común en los últimos 7000 años, lo que ha contribuido a una disminución estimada del 1-2 % en la prevalencia de la calvicie.

En conjunto, los resultados indican que la selección natural reciente ha sido mucho más frecuente y extendida de lo que se pensaba, afectando especialmente a rasgos complejos y poligénicos, no solo a mutaciones simples. Además, la intensidad de estos procesos parece tener un «pico» durante la Edad del Bronce, hace unos 5000 años, posiblemente como consecuencia de una intensificación de los cambios en el estilo de vida iniciados en el Neolítico, hace unos 10.000 años.

¿Un origen híbrido para los neandertales? Nuevas hipótesis sobre expansión africana y redes matrilineales

¿Un origen híbrido para los neandertales? Nuevas hipótesis sobre expansión africana y redes matrilineales

No es novedad que el paradigma del siglo XXI en evolución humana sea un rompecabezas genético reconstruido a partir del ADN antiguo (ADNa). En el último mes, dos estudios amplían nuestro conocimiento y proponen hipótesis tentativas (siempre con la cautela de que son modelos para avanzar, no conclusiones definitivas).

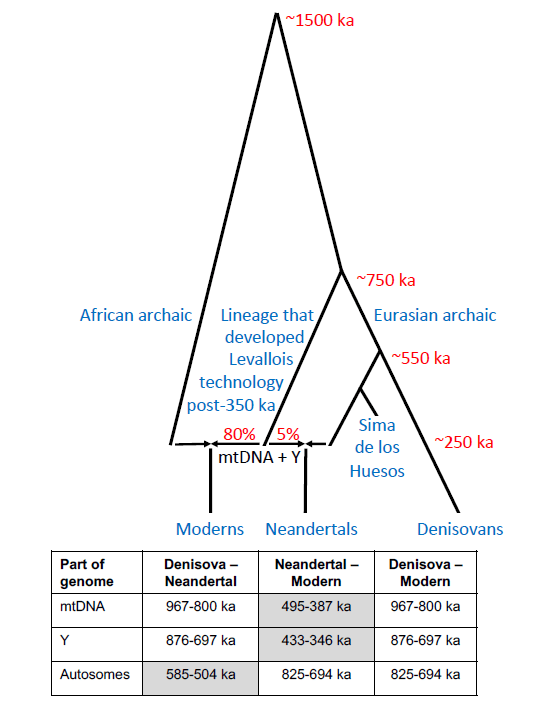
Un preprint del genetista David Reich (2026) propone un modelo demográfico para explicar aspectos de la historia de los linajes de neandertales y de humanos modernos. Según este modelo, hace entre 400 ka y 250 ka (miles de años) se produjo una expansión demográfica africana (expansión de rango o range expansion) de poblaciones asociadas a la Middle Stone Age (MSA) y la tecnología de núcleo preparado Levallois. Al expandirse hacia Eurasia, estas poblaciones habrían interactuado con grupos locales, probablemente similares a los representados en la Sima de los Huesos (Atapuerca, España), produciendo una mezcla genética muy asimétrica: la población resultante tendría aproximadamente 95% de ascendencia local basal (tipo Sima) y solo 5% de ascendencia moderna en ADN nuclear.

Aunque sería limitada esa contribución autosómica (a través de los autosomas, cromosomas no sexuales), el modelo de Reich muestra que bastaría para explicar el reemplazo completo de linajes uniparentales, como el ADN mitocondrial (ADNmt) y el cromosoma Y, debido a la dinámica de deriva y a redes de parentesco estructuradas. Las simulaciones indican que incluso una expansión numerosa puede dejar únicamente ese 5% de ascendencia autosómica africana en la población resultante. Este escenario corresponde cronológicamente a la aparición de paralelos culturales entre África y Eurasia en el Paleolítico medio, como la tecnología Levallois, el hafting (enmangado de herramientas) más sofisticado o el uso intensivo del fuego.

Sigue leyendo →
La construcción genética en Asia oriental: mezclas antiguas y transformaciones durante el Holoceno

La construcción genética en Asia oriental: mezclas antiguas y transformaciones durante el Holoceno

Un trabajo de Guanglin He y colaboradores describe 160.000 años de dinámicas poblacionales y adaptaciones biológicas a través de un completo estudio genómico en Asia oriental, con foco principalmente a partir del Paleolítico superior.

El resultado es una historia de contactos con humanos arcaicos, divergencias poblaciones durante el Pleistoceno y expansiones agrícolas durante el Holoceno. Esta nueva publicación refleja el fuerte crecimiento del volumen de datos de ADN antiguo de Asia oriental en los últimos años, aunque los resultados están limitados por la falta de muestreo en regiones cálidas y húmedas como el sur de China, donde la conservación del ADN es muy difícil.

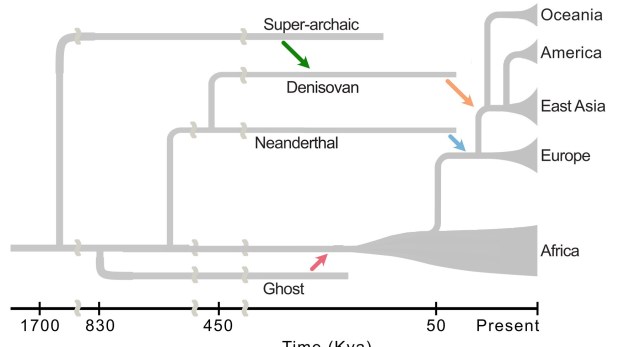
Se han identificado varias oleadas de introgresión arcaica en antepasados de los asiáticos orientales actuales: una introgresión neandertal compartida con todos los humanos modernos no africanos (aunque en Asia oriental hay evidencia de mayor proporción relativa respecto a los europeos) y, por otra parte, múltiples pulsos de introgresión denisovana, al menos uno con alcance geográfico amplio y otro más específico de Asia oriental.

Estas mezclas no fueron uniformes y se dieron en contactos repetidos con grupos arcaicos variados. Algunos fragmentos heredados, como el haplotipo EPAS1 en tibetanos, muestran una relación directa con adaptaciones funcionales, especialmente a gran altitud. Otros fragmentos pueden haber influido en rasgos relacionados con inmunidad, radiación ultravioleta o características de la piel.

En conjunto, la región tuvo múltiples linajes con trayectorias propias antes de la expansión neolítica.

  • Dos individuos analizados representan linajes tempranos de Asia oriental que tienen afinidades con grupos paleolíticos de Eurasia: Tianyuan (40 ka) y AR33K (33 ka).
  • Tras el Último Máximo Glacial se produjeron reemplazos o reorganizaciones demográficas en el noreste asiático, con nuevas poblaciones como la representada por el individuo AR19K.
  • A esta complejidad se suma otra evidencia procedente del norte de China donde, a partir del ADN de tres individuos que vivieron hace entre 11 ka y 9 ka en Donghulin (oeste de Pekín), se ha identificado un linaje humano hasta ahora no descrito que se remonta al final de la última glaciación (Zhang et al., 2026). Este grupo, genéticamente diferenciado de otros ya conocidos en Asia oriental, sugiere la existencia de poblaciones relictas o escasamente representadas en los genomas actuales, reforzando la idea de que la diversidad humana en la región durante el Pleistoceno tardío fue mayor de lo que indican los registros disponibles.
  • En el sur, poblaciones como las de los individuos MZR, Qihe3 y Longlin reflejan una diversidad genética antigua y, en algunos casos, aportaciones a poblaciones posteriores e incluso a los primeros americanos, reflejando una compartición de ascendencia de algunos linajes del este asiático con los ancestros de los nativos americanos.
Sigue leyendo →