
Suelo decir que, si el Niño de Taung hubiera vivido veinte años, se habría parecido a la Señora Ples. Es el momento de revisar si puedo mantener esta afirmación.
Gabriele Macho y colaboradores han revisado la diversidad de los homininos del sur de África durante el Plio-Pleistoceno a partir del reestudio del Niño de Taung (Taung-1), holotipo de la especie Australopithecus africanus, definida por Raymond Dart en 1925 a partir de este fósil. Quienes siguen este blog conocen la enorme y sorprendente variabilidad morfológica que muestran los especímenes de Au. africanus. Si ya es complicado encontrar caracteres derivados inequívocos en el taxón Au. africanus, todavía es más compleja la atribución de especímenes a este taxón porque su holotipo, Taung-1, es un individuo inmaduro, lo que obliga a distinguir entre diferencias debidas a la ontogenia y auténtica diferenciación taxonómica. Los fósiles que se han ido incorporando posteriormente a esta especie presentan una alta heterogeneidad anatómica, normalmente interpretada como variación intraespecífica. Pero son fósiles de distintos yacimientos del sur de África, algunos separados por centenares de miles de años, de modo que el conjunto agrupa variación espacial y, sobre todo, temporal.
En realidad, puede que esta variabilidad esté reflejando la existencia de más de una especie, como se ha propuesto ya anteriormente. De hecho, los fósiles de Sterkfontein fueron inicialmente atribuidos a Plesianthropus transvaalensis y los de Makapansgat a Australopithecus prometheus, antes de ser agrupados bajo Au. africanus en la década de 1950. Posteriormente, se recuperó el taxón Au. prometheus, sobre todo para StW 573 (Little Foot, 3,67 Ma).
En esta ocasión, el problema taxonómico se aborda combinando análisis de cronología, desarrollo dental, crecimiento endocraneal, morfología de la unión dentina-esmalte y reconstrucciones paleoambientales. Pues bien, este trabajo concluye que no pueden identificarse agrupaciones morfológicas consistentes y propone un modelo ecológico y evolutivo en que los ciclos climáticos modificaron repetidamente la distribución de los hábitats, favoreciendo expansiones y contracciones poblacionales, aislamiento, deriva genética, contacto secundario e hibridaciones.Veamos en detalle:
- Datación. En 2022 se revisaron las dataciones de Sterkfontein, situando en 3,5 Ma algunos depósitos del Miembro 4, donde apareció Sts 5 (Señora Ples). Las estimaciones anteriores eran imprecisas y daban fechas de hasta un millón de años más recientes. Taung, por su parte, se había situado tradicionalmente en torno a 2,5-3 Ma. Ahora se acota su antigüedad entre 2,96 y 3,03 Ma. El límite inferior procede de la datación isotópica ²⁰⁷Pb/²³⁵U de una formación situada estratigráficamente sobre el depósito fosilífero, mientras que el límite superior está fijado por los datos paleomagnéticos. Esta nueva cronología sitúa a Taung en el Plioceno y hace reconsiderar sus relaciones temporales con los fósiles de Sterkfontein.
- Desarrollo dental. Taung muestra una mineralización relativamente retrasada del segundo molar respecto al primero, que podría indicar cierta ralentización del desarrollo después de la erupción del M1. Esto sería compatible con una prolongación de la etapa juvenil respecto al patrón típico de los grandes simios, pero también con una fase incipiente de infancia posterior a la dependencia nutricional de la lactancia. Todavía no podemos determinar si el «niño» de Taung en realidad había alcanzado una etapa de infancia comparable a la humana o si se encontraba en una fase juvenil más semejante a la de los grandes simios.
- Crecimiento endocraneal. El volumen endocraneal de Taung (402-410 ml) es comparable al de algunos especímenes adultos atribuidos a Au. africanus, como Sts 60 (391 ml) y Sts 71 (412 ml), pero representaría apenas el 71 % del volumen de StW 505. En comparación, chimpancés y gorilas en una fase de desarrollo dental comparable a Taung ya han alcanzado respectivamente el 92 % y el 87 % de su volumen cerebral adulto medio. Sin embargo, el volumen no lo explica todo: la trayectoria de cambio de la forma endocraneal se aproxima a la de Sts 5 (Señora Ples) y Sts 60, pero no a la de otros especímenes como Sts 71, MLD 37/38 o StW 505. Esto refuerza la sospecha de que el conjunto tradicionalmente atribuido a Au. africanus incluye más de una entidad taxonómica, aunque las interpretaciones dependen de los modelos ontogenéticos empleados.
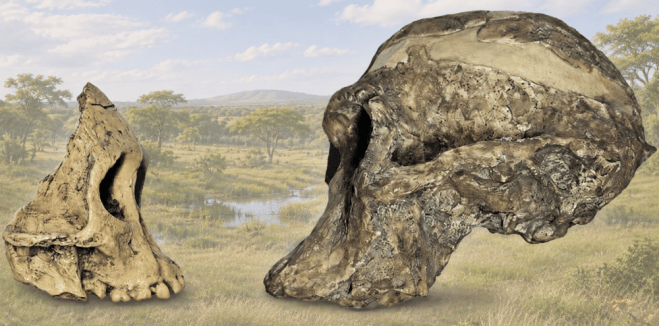
- Morfología dental. El análisis geométrico de la unión dentina-esmalte del primer molar, una estructura con fuerte señal genética y escasa modificación posnatal, sitúa a Taung en el extremo del espacio morfológico de Au. africanus, con cierto solape con Paranthropus robustus, prácticamente equidistante de Sts 18 (atribuido a Au. africanus) y SK 61 (P. robustus). Además, MLD 2 (de Makapansgat) tiene afinidades inesperadas con AL 266-1, Australopithecus afarensis de Hadar (este de África). Es decir, Taung no solo ocupa una posición morfológica singular, sino que el conjunto tradicionalmente atribuido a Au. africanus presenta una dispersión morfológica bastante mayor que la de los otros grupos comparados. Phillip Tobias ya había observado que determinados caracteres de Taung presentaban estados derivados próximos a los de P. robustus, P. boisei y Homo habilis. Dean Falk también identificó semejanzas endocraneales entre Taung y los parántropos. Entre los caracteres discutidos destaca un sistema de senos venosos occipitales y marginales desarrollado, característico de P. robustus, aunque su configuración podría modificarse durante el desarrollo. Sin embargo, resulta llamativo que algunos especímenes, como Sts 24, comparten patrones de desarrollo dental con Taung, pero difieren de él en la morfología de la unión dentina-esmalte.
- Paleoambiente. Los registros hidroclimáticos muestran una elevada variabilidad en el sureste africano entre 4 y 2,5 Ma, con una periodicidad de unos 400 ka relacionada con la excentricidad orbital. Los pólenes de Taung indican humedales y vegetación con mayor componente leñoso que el paisaje actual. Destaca la presencia de Podocarpus, asociado a ambientes húmedos y boscosos, cuyos bosques se encuentran hoy unos 400 km al este de Taung. Los autores proponen un modelo de seguimiento de hábitats (habitat tracking), en el que las poblaciones de homininos habrían acompañado los desplazamientos de los biomas favorables durante las oscilaciones climáticas. Estas dinámicas, especialmente en la zona de transición entre las regiones biogeográficas Zambeziana y Natal/Kalahari, habrían provocado expansiones y contracciones de sus áreas de distribución. Los episodios de aislamiento y las fluctuaciones demográficas habrían favorecido la deriva genética, mientras que los contactos secundarios habrían facilitado el flujo génico y la hibridación, contribuyendo así a explicar la diversidad morfológica observada.
Con este nuevo trabajo, de nuevo tenemos que cuestionar modelos simples de sucesión lineal de especies. Las tres fuentes de variación (cambio ontogenético, variabilidad intraespecífica y diferenciación interespecífica) deberán contrastarse mediante dataciones más precisas, nuevos estudios del desarrollo cerebral y dental y otros caracteres que aporten información filogenética, complementando el tradicional enfoque anatómico y taxonómico.
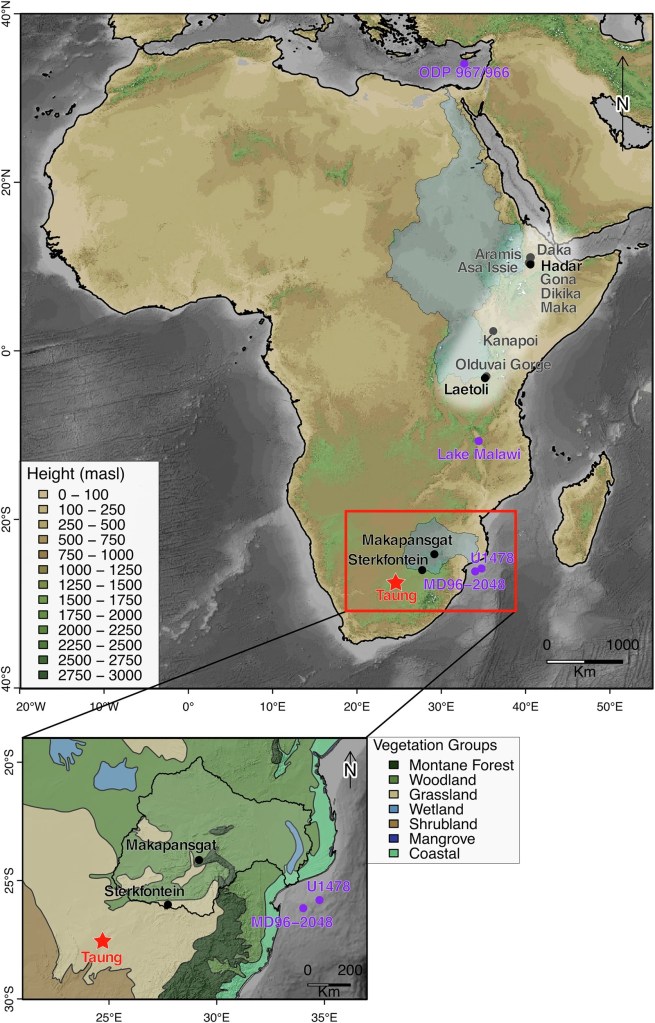
La siguiente gran incógnita será comprender las dinámicas poblacionales entre el este y el sur de África. Los episodios recurrentes de contacto y aislamiento entre diferentes poblaciones de australopitecos constituyen una hipótesis atractiva, pero difícil de trabajar con el registro fósil disponible. La escasez de evidencias directas de estos procesos ya es una señal clara de la complejidad de reconstruir esas relaciones evolutivas.
Quizá Taung sí habría acabado pareciéndose a la Señora Ples. Pero, después de este trabajo, ya no estoy tan seguro de que ambos fósiles pertenezcan siquiera a la misma especie.

