Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Cuando en publicaciones de trabajos genómicos se habla de grupos humanos superarcaicos, el pensamiento siempre se me va a Homo erectus, esperando (y deseando) que las evidencias moleculares de este grupo humano permitan acotar qué es esta especie y, en particular, si es posible caracterizar su longevidad, éxito evolutivo y distribución geográfica en África y Asia. Desde su aparición en África hace unos 2 Ma (millones de años), poblaciones erectinas se extendieron por toda Eurasia, desde su extremo occidental, dejando su rastro en humanos con rasgos afines a H. erectus en la Sima del Elefante (Atapuerca, España) hace 1,4 Ma, hasta su extremo oriental, llegando a persistir en Indonesia hasta hace solo unos 100 ka (miles de años).

Sin embargo, a pesar de su importancia en nuestra historia evolutiva, conocemos muy poco sobre su diversidad genética, debido a que precisamente la antigüedad de sus fósiles y las condiciones de conservación han dificultado la recuperación de ADN antiguo. En ausencia de este, la investigación en esa cronología tiene un gran potencial con la paleoproteómica. En concreto, el esmalte dental constituye un material especialmente favorable en esta técnica, por su elevada mineralización y capacidad de preservar restos proteicos. Hasta ahora, de H. erectus se habían podido analizar algunos péptidos de un diente de Dmanisi (Georgia, 1,77 Ma), pero sin resultados concluyentes sobre variantes distintivas.

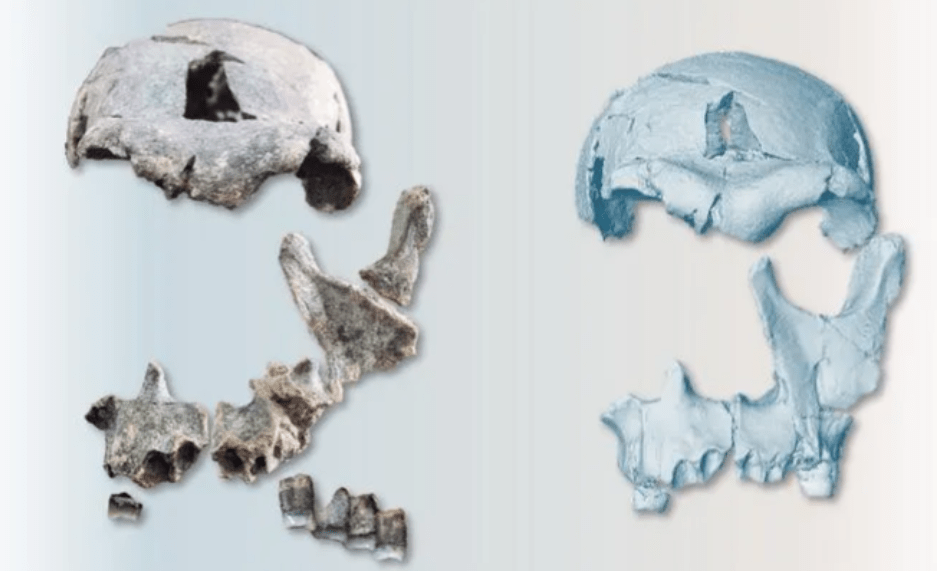
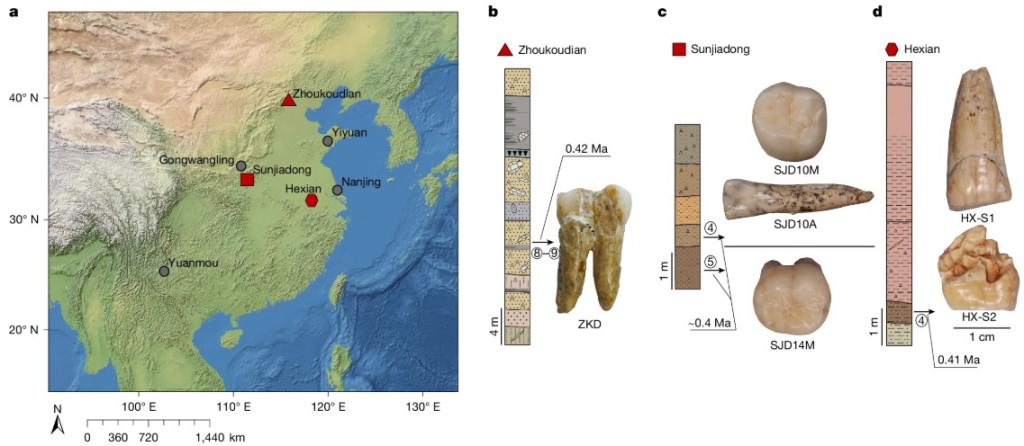
Qiaomei Fu y colaboradores han conseguido un gran avance en este ámbito, mediante el análisis de proteínas del esmalte dental de seis individuos de H. erectus de tres yacimientos chinos contemporáneos de hace unos 400 ka, que abarcan una gran región de norte a sur: Zhoukoudian (el icónico Hombre de Pekín), Hexian y Sunjiadong, junto con una muestra de Harbin, denisovano, utilizado como comparación. Mediante espectrometría de masas, se han recuperado entre 650 y 3457 péptidos endógenos por espécimen, correspondientes a entre 6 y 11 proteínas del esmalte. Los principales resultados son los siguientes.

  • Para empezar, se ha identificado el sexo de todos los individuos a partir de la proporción de péptidos específicos de AMELY frente a los de AMELX. El de Zhoukoudian, dos de Sunjiadong, dos de Hexian y el individuo de Harbin resultaron masculinos, mientras que otro de Sunjiadong es femenino.
  • El resultado más relevante fue la identificación de dos variantes de aminoácidos en la ameloblastina (AMBN), proteína implicada en la formación del esmalte dental. La primera, denominada A253G, no se había identificado anteriormente en ningún otro linaje humano ni en otros primates analizados. Al aparecer en los seis individuos de forma compartida y no identificada en los grupos comparativos disponibles, en principio podemos tener una característica distintiva de los H. erectus del Pleistoceno medio asiático. Eso sí, prudencia… La representatividad de seis muestras no permite aún generalizarla a toda la especie.
  • Esta variante AMBN(A253G) también permite afirmar que los individuos de Hexian están molecularmente vinculados a los ejemplares de Zhoukoudian y Sunjiadong y son de H. erectus. Esta cuestión generaba dudas hasta ahora, ya que su morfología presenta algunas semejanzas con los fósiles de Java, pero se había llegado a proponer su atribución a los denisovanos.
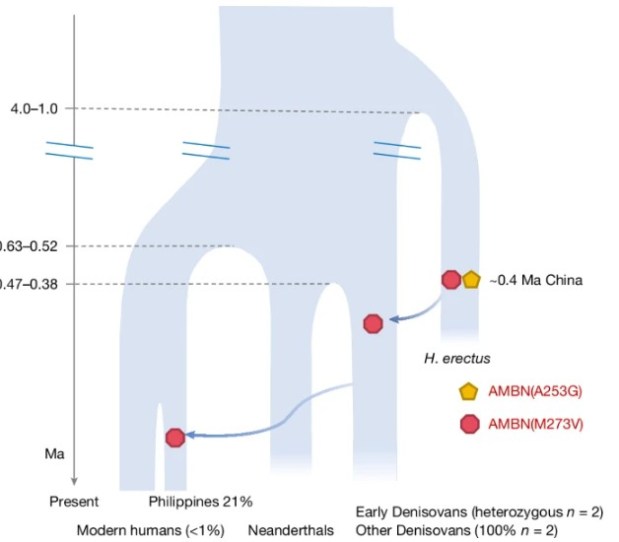
  • La segunda variante identificada, AMBN(M273V) también está presente en los seis individuos, pero ya se había identificado previamente: el alelo derivado correspondiente, rs564905233, aparece en denisovanos y en algunas poblaciones humanas actuales, con frecuencias del 21% en Filipinas, 1,17% en India y 0,71% en Papúa Nueva Guinea, y está ausente en la mayoría de las demás poblaciones. Por ello, los autores proponen que esta variante pudo llegar a los denisovanos mediante el flujo genético procedente de una población humana antigua relacionada con H. erectus.
  • Hemos de conectar esta hipótesis con las evidencias genómicas de introgresión de ADN de linajes superarcaicos en los denisovanos que hemos conocido recientemente. Son poblaciones cuyo origen se remontaría a una divergencia anterior a 1 Ma respecto al antepasado común de denisovanos, neandertales y humanos modernos.
  • Precisamente, hace muy poco Zhang et al. (2026) encontraron que entre un 3% y un 5% de la ascendencia genética denisovana reconstruida podría proceder de un linaje humano superarcaico, cuya separación respecto al que conduce a los humanos modernos sucedería hace 1,8 Ma. Hace apenas unos meses sugería no precipitarnos en identificar a ese grupo como H. erectus, ya que el resultado procedía de una reconstrucción estadística de la historia de los genomas, no de ADN recuperado de aquella población desaparecida. Hoy ya podemos comprar más papeletas para apostar por esa hipótesis.
  • En una etapa posterior, parte de la ascendencia denisovana pasó posteriormente a los humanos modernos, mediante distintos eventos de introgresión de poblaciones próximas a los denisovanos hacia ancestros modernos del sudeste asiático y Oceanía. Se han identificado al menos tres episodios de este tipo, algunos posiblemente ocurridos hace tan solo 20 ka (Gokcumen, 2019).
Sigue leyendo →
Evolución no lineal en los primeros Homo: el caso del cráneo DAN5

Evolución no lineal en los primeros Homo: el caso del cráneo DAN5

A partir de cinco fragmentos craneales/faciales y cinco dientes, se ha logrado reconstruir virtualmente el cráneo DAN5/P1 (Baab, Kaifu, Freidline et al., 2025). El fósil procede de Gona (Etiopía) y está datado en 1,6-1,5 Ma. Este trabajo ha dado como resultado uno de los cráneos de Homo más completos de su marco temporal.

DAN5 presenta un mosaico morfológico que, una vez más, cuestiona visiones evolutivas lineales entre Homo habilis y Homo erectus. Sus principales características son:

  • Cráneo pequeño, con un volumen de unos 598 cc, claramente por debajo del promedio de H. erectus africano clásico, solapándose con el de H. habilis y otros Homo tempranos.
  • Rasgos típicos de H. erectus, como un toro supraorbital desarrollado, perfil craneal bajo y alargado, glabela marcada y parietales relativamente rectos.
  • Cara corta y relativamente ortognata, con plano medio casi vertical, pómulos transversalmente planos y menor prognatismo que en muchos Homo tempranos, aunque sin los rasgos derivados de H. sapiens.
  • Región nasal plana y estrecha, similar a la de H. habilis. La baja posición de la nariz y de la cara en general recuerda a OH 24 (H. habilis) y D4500 (H. erectus Dmanisi), en contraste con las caras más altas y robustas de KNM-ER 3733 y ER 3883 (H. erectus africanos).
  • Paladar anterior ancho y casi cuadrangular, con arcada dental relativamente expandida anteriormente, consistente con condiciones plesiomorfas dentro de Homo.
  • Dentición y mandíbula con proporciones y robustez cercanas a Homo temprano. El tamaño relativo de molares y premolares es una plesiomorfía respecto a H. erectus africanos.
Sigue leyendo →
El esqueleto más completo de Homo habilis y el cuestionado vínculo habilis-erectus

El esqueleto más completo de Homo habilis y el cuestionado vínculo habilis-erectus

La publicación del esqueleto poscraneal más completo conocido de Homo habilis (Grine et al., 2026) es de gran importancia para comprender la posición de esta especie respecto a Australopithecus y a Homo erectus, a partir tanto de su morfología como de las inferencias sobre su modo de vida. Previamente solo se conocían tres esqueletos parciales muy fragmentarios de esta especie.

El esqueleto KNM-ER 64061 procede de Koobi Fora (Kenia) y su datación es 2,02-2,06 Ma (millones de años). Incluye ambas clavículas, fragmentos de omóplato, ambos huesos húmeros, radios y cúbitos, fragmentos del hueso coxal y parte del sacro, todos ellos asociados tafonómica y geoquímicamente con una dentición mandibular casi completa (KNM-ER 64060) atribuida a H. habilis. Es una lástima que no se conserve ningún hueso de las extremidades inferiores.

El individuo era un adulto joven con una estatura estimada de ~160 cm y un peso de entre 30,7 y 32,7 kg. La estatura es intermedia entre la de otros H. habilis (OH 62, KNM-ER 3735) y H. erectus (KNM-ER 1808, KNM-WT 15000), mientras que la masa corporal es ligeramente inferior a la de otros H. habilis y bastante menor que la de H. erectus. Su cuerpo presenta una combinación de rasgos primitivos y derivados:

  • Son rasgos apomórficos los de su morfología pélvica, donde ciertas características del isquion sugieren mecánicas del miembro inferior más similares a Homo que a australopitecos, como su orientación eficaz para la extensión femoral y la marcha bípeda moderna.
  • Son rasgos plesiomórficos las proporciones y robustez de las extremidades superiores, más similares a las de los australopitecos que a las de Homo erectus. Los huesos del hombro también son comparables a los observados en australopitecos y en otros Homo tempranos.

En general, sus características se asemejan particularmente a las de Australopithecus afarensis. Autores de la publicación han comentado que este esqueleto les recuerda al de Lucy. Los rasgos descritos sugieren que el individuo conservaría adaptaciones locomotoras arbóreas y/o un uso intensivo de los brazos, un modo de vida bastante distinto del que se supone para H. erectus.

Sigue leyendo →
Homininos norteafricanos hace 773.000 años en la evolución temprana hacia Homo sapiens

Homininos norteafricanos hace 773.000 años en la evolución temprana hacia Homo sapiens

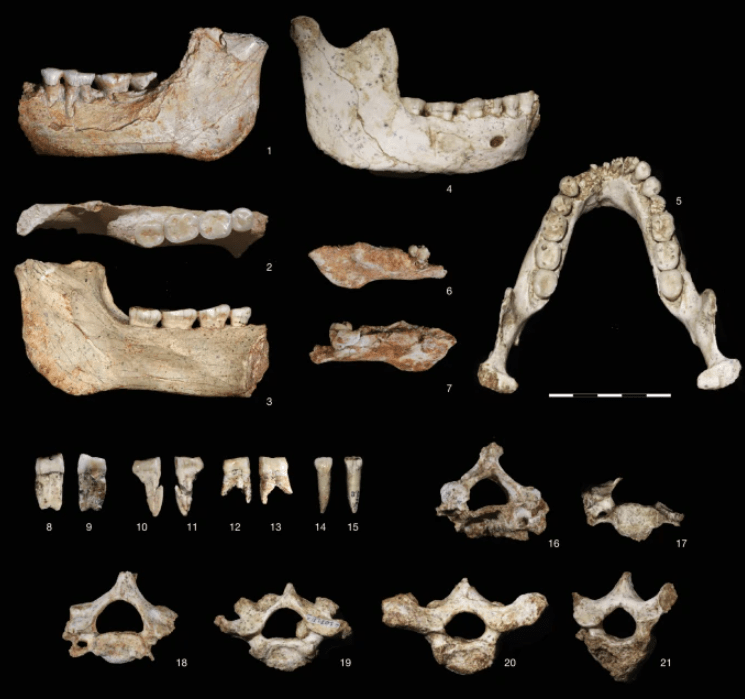
Han despertado gran interés la publicación de los homininos de la Grotte à Hominidés en Thomas Quarry I (ThI), Casablanca (Marruecos) (Hublin et al., 2026). Los depósitos de ThI albergan dos yacimientos diferentes: un lecho con industria achelense de 1,3 Ma (millones de años) y otro (ThI-GH) con los homininos mencionados. Se trata de tres mandíbulas (una completa), dientes aislados anteriores y posteriores, deciduos y permanentes, ocho vértebras y un fragmento proximal de fémur. Estos elementos representan al menos tres individuos. La mayoría de los fósiles fueron desenterrados en 2008 y 2009.

La datación por paleomagnetismo de 119 muestras de sedimento del entorno de los fósiles indica que la secuencia abarca la inversión del campo magnético de Matuyama-Brunhes, un evento geológico ocurrido hace 773 ka (miles de años), por lo que la edad geológica de los fósiles estaría situada poco antes de ese umbral. Por otra parte, el yacimiento también contiene núcleos y lascas de industria achelense, así como restos de fauna consumida por carnívoros. El fémur de hominino también tiene marcas de haber sido masticado por hienas.

Sigue leyendo →
¿Fueron humanos los primeros fabricantes de herramientas?

¿Fueron humanos los primeros fabricantes de herramientas?

El origen de la tecnología lítica en la evolución humana despierta un gran interés. Los hallazgos, cada vez más antiguos y complejos, indican que su fabricación no se restringió a nuestro género Homo. Algunos podrían asociarse con ciertos parántropos y australopitecos que coexistieron con los primeros humanos. Sus manos presentan adaptaciones que los acercan a la destreza manual humana mucho más que a la de otros primates. Microcharla impartida para el Club de Ciencia Boadilla el 14 de noviembre de 2025.