La importancia del cráneo de Kocabaş en el registro fósil hominino

La importancia del cráneo de Kocabaş en el registro fósil hominino

Aunque el cráneo de Kocabaş no suele ocupar titulares, su relevancia en la historia evolutiva humana es indiscutible. Se trata de un fragmento de calvaria datado en 1,1-1,3 millones de años (Ma) (Lebatard et al., 2014). Atendiendo a sus características morfológicas, fue clasificado como Homo erectus por Kappelman et al. (2008), confirmado por Vialet et al. (2012). Se encontró en un bloque de travertino extraído de una cantera cercana al pueblo homónimo, en la provincia de Denizli, en Turquía.

Estamos contemplando a un especimen de Homo erectus a las puertas de Europa, en un contexto de gran carencia de fósiles humanos en el registro de entre hace 1,5 y 1 millón de años. Casi podemos contar los especímenes disponibles con los dedos de una mano. Por ejemplo, en África tenemos los cráneos OH 9 (1,2 Ma), BOU-VP-2/66 en Daka, Etiopía (1 Ma) y Buia en Eritrea (1 Ma). En Eurasia, tenemos fósiles en cuatro sitios españoles: Sima del Elefante en Atapuerca (fragmento facial de 1,1-1,4 Ma y mandíbula de 1,1-1,3 Ma), Barranco León en Orce (diente de 1,4 Ma), Gran Dolina en Atapuerca (la colección de Homo antecessor, de 0,9 Ma) y Cueva Victoria en Cartagena (una falange de 0,9 Ma). Después de estos, son más recientes los fósiles asiáticos de Zhoukoudian LC (0,75 Ma), Sangiran 17 (0,79-1,45 Ma) y Nankin 1 (0,63 Ma).

El cráneo de Kocabaş está compuesto por tres fragmentos del hueso frontal y los parietales. Las superficies endocraneales presentan una excelente conservación. Rasgos típicos que tiene de H. erectus son: marcada constricción postorbital, toro supraorbitario bordeado posteriormente por un surco supratoral que muestra, en su borde inferior, una muesca y tubérculo supraorbitario, y líneas temporales en una posición media alta delimitando una zona frontal infratemporal con una protuberancia clara. También son típicos de erectus el desarrollo de las impresiones vasculares y cefálicas, y la anchura mínima del frontal y la máxima del parietal. El toro supraorbitario masivo de Kocabaş, con un espesor central de 18 mm, se sitúa entre los valores superiores para Homo erectus, cercano al de especímenes asiáticos como Sangiran 17. Además, es indicativo de que el individuo podría haber sido masculino.

Sigue leyendo →
Un posible Homo erectus en el oeste euroasiático hace 1,1-1,4 millones de años

Un posible Homo erectus en el oeste euroasiático hace 1,1-1,4 millones de años

¿Recordáis el 8 de julio de 2022? Aquel día escribí que sería marcado como una fecha muy especial para la historia de la evolución humana, especialmente para los hallazgos en Atapuerca. Curiosamente, también un 8 de julio, pero de 1994, se produjo en Gran Dolina el hallazgo de los primeros restos humanos que permitieron definir la especie Homo antecessor.

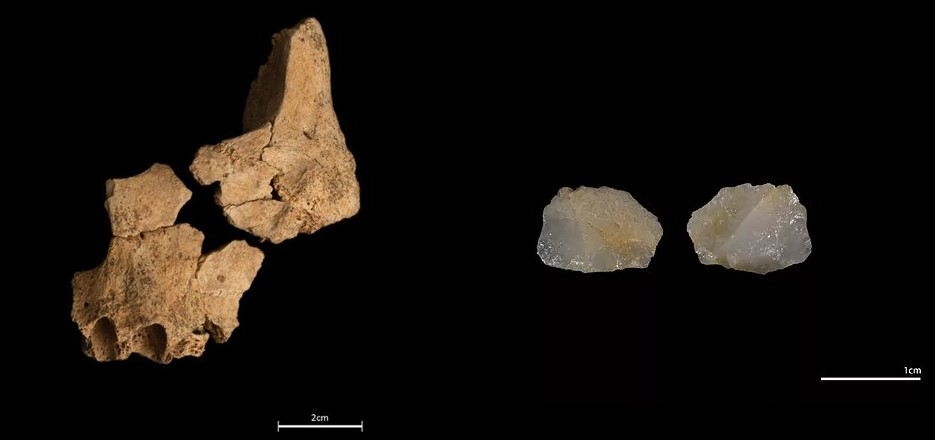
En 2022, el 8 de julio tuvo lugar la presentación de nueve fragmentos que conformaban el tercio medio de una cara humana, encontrada en el nivel TE7 de la Sima del Elefante el 30 de junio de ese año. Este fósil, identificado como ATE7-1, fue apodado “Pink”, en homenaje a Pink Floyd y su álbum The Dark Side of the Moon, además de ser un guiño a Rosa Huguet, líder de la publicación de este fósil.

Cara parcial y lasca procedentes del nivel TE7 de Sima del Elefante. Crédito: María Dolors Guillén

Por fin tenemos la publicación científica de este fósil (Huguet, Rodríguez-Álvarez, Martinón-Torres et al., 2025), cuya comparativa con otros especímenes aproximadamente contemporáneos ha sugerido su atribución a Homo aff. erectus. Su antigüedad se estima entre 1,1 y 1,4 Ma (millones de años). El término “aff.” (affinis) se emplea cuando un espécimen fósil o una población tiene características que se parecen a una especie conocida (en este caso, Homo erectus), pero no es posible identificarla con certeza como perteneciente a esa especie. Se reconocen las afinidades de Pink como Homo erectus, pero futuras evidencias podrían incluso llegar a cambiar su atribución a una especie distinta. De confirmarse su atribución a Homo erectus, este fósil se convertiría en el primer representante conocido de esta especie en el oeste euroasiático.

Entre los rasgos que aproximan a ATE7-1 a Homo erectus están su robustez general, una región nasal poco desarrollada y algo hundida, y la proyección mediofacial. Sin embargo, presenta una carta más corta y estrecha que lo habitual en esta especie. Además, los huesos son significativamente distintos a los de Homo antecessor (de 800-900 ka de antigüedad). ATE7-1 presenta una morfología mediofacial más primitiva, careciendo del aspecto moderno de Homo antecessor (una cara plana, corta y vertical), pero con una mayor derivación en la región nasoalveolar que los erectus de Dmanisi y otros homininos contemporáneos.

Sigue leyendo →

Humanos y parántropos cruzándose por el camino

Humanos y parántropos cruzándose por el camino

En 2016, escribí que especímenes de Homo erectus y de Paranthropus boisei coexistieron en el mismo paisaje cerca del Lago Turkana. Entonces usé el término «virtualmente» para subrayar que, aunque algunos milenios pueden parecer un lapso breve en términos geológicos, siguen siendo un periodo extenso. Restos de ambos linajes se han encontrado en capas sedimentarias cercanas en tiempo y espacio, pero esto no significa necesariamente que se hayan visto cara a cara. En todo caso, aquellos hallazgos fueron muy significativos porque demostraban un caso de simpatría entre homininos: la convivencia de dos especies muy distintas en morfología, capacidad craneal y estrategias de aprovechamiento de los recursos naturales. Estas diferencias les permitieron adaptarse a un mismo nicho ecológico minimizando la competencia directa.

Cráneos de Paranthropus boisei KNM ER 406 y de Homo erectus KNM ER 3733. Crédito: Roberto Sáez.

Ahora, tenemos evidencia de que sí coexistieron físicamente al mismo tiempo. Hace 1,5 Ma (millones de años), individuos de ambas especies caminaron por el mismo lugar. Lo sabemos gracias a sus huellas (K. G. Hatala, N. T. Roach, A. K. Behrensmeyer, et al., 2024). Este descubrimiento realmente hace vibrar: no se trata de fósiles que ofrecen una visión estática de cómo pudieron ser sus dueños, sino de rastros que nos hacen imaginar a aquellos seres en movimiento. Podemos figurarnos a cada uno caminando e interactuando con los miembros de su grupo, aunque dudo mucho que entre especies hubiera algo más allá de la curiosidad por verse de vez en cuando. Eran radicalmente distintos en forma y en modo de vida. Los Homo erectus ya tenían una estatura cercana a la nuestra, aunque posiblemente con un cuerpo algo achaparrado, y un cerebro de unos 1000 cc. Los parántropos, en cambio, mostraban una morfología poscraneal más similar a la de los australopitecos, y un cráneo muy distinto al humano, marcado por una mandíbula y una dentición masivas, con un cerebro más pequeño.

Las primeras huellas del sitio FE22 de Koobi Fora (Kenia) aparecieron en 1978. Junto a numerosas pisadas de hipopótamo, aparecieron rastros de un Homo temprano que caminó desde un barro más blando hacia una superficie más dura y menos profunda. En 2021, se descubrió el conjunto completo de huellas, atribuidas a dos tipos distintos de homininos que pasaron por allí con una diferencia de tiempo muy estrecha, de pocos días, quizá incluso en el mismo día. Las huellas sólo se preservan de esta manera si se cubren rápidamente con barro, ceniza u otros sedimentos.

El conjunto incluye una senda de 13 pisadas hechas por un Paranthropus boisei que caminaba rápidamente hacia el este y, a menos de un metro de distancia, sobre la misma superficie, tres huellas aisladas dejadas por dos o tres individuos de Homo erectus que se dirigían hacia el norte. La identificación de las especies se basa en su asociación con los fósiles hallados en la región con esa antigüedad. Las huellas están excepcionalmente bien conservadas, permitiendo comparaciones detalladas con otras conocidas de homininos, así como con las de 340 humanos actuales. Algunas huellas son tan claras que muestran el deslizamiento de los dedos por el barro. Sigue leyendo →

Homo erectus achaparrados

Homo erectus achaparrados

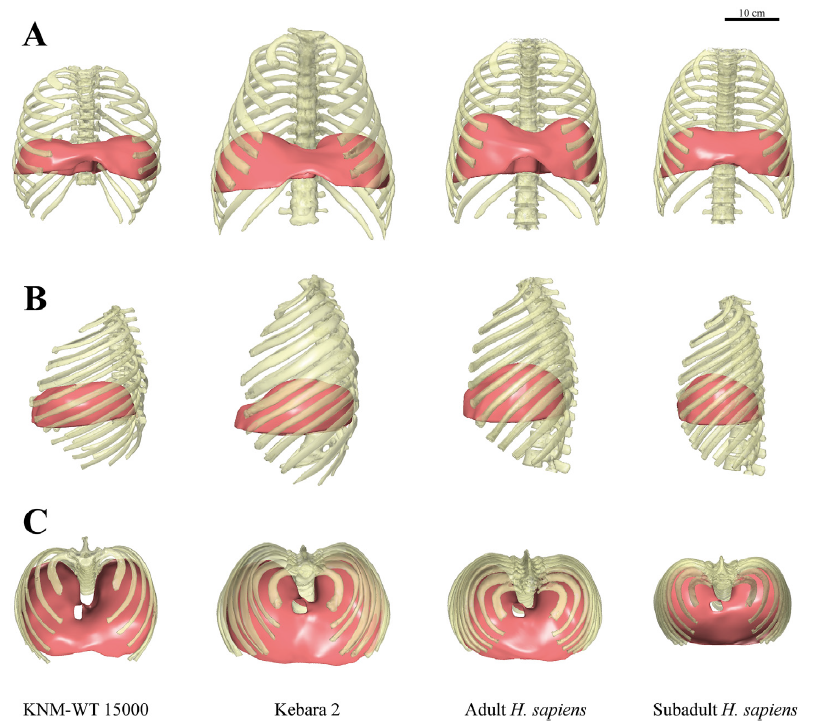
En un estudio anterior (Bastir, García-Martínez, Torres-Tamayo et al., 2020), nos sorprendió comprobar que las proporciones del tronco de Homo erectus no correspondían a una configuración esbelta, tal como nos suelen ilustrar los textos de manera extensiva, sino más bien achaparrada o esférica. En cambio, las extremidades inferiores sí que indican que tenían un cuerpo largo en comparación con la columna vertebral o la caja torácica, por ejemplo atendiendo a la longitud del fémur. Aquel trabajo se basaba en el esqueleto de la caja torácica, es decir, en el tamaño y proporciones de costillas y vértebras del esqueleto del Chico de Nariokotome KNM-WT 15000 (datado en ~1,5 millones de años).

A partir de los restos de aquel joven erectus, Bastir y compañeros reconstruyeron su caja torácica y realizaban una simulación cinemática de su respiración. En comparación con distintos individuos de Homo sapiens, observaron que el movimiento de las costillas difería notablemente del nuestro. Por otra parte, Gómez-Olivencia et al. (2018) habían reconstruido también la caja torácica del neandertal Kebara 2 (de unos 60.000 años): la morfología torácica en ambos homininos era similar. Esto nos cambió la forma de ver el cuerpo de Homo erectus. Siempre digo que estas son de las pocas investigaciones que realmente sí «obligan a reescribir» textos de prehistoria, en particular todo lo referente a la supuesta esbeltez y modernidad de los cuerpos erectus, con las implicaciones biomecánicas y paleoecológicas que eso tiene.

Ahora, un nuevo trabajo recién publicado (López-Rey et al., 2023) complementa a aquellos, abordando también el análisis de la acción muscular. A partir de una muestra de tomografías computarizadas de humanos modernos, el estudio analiza los diafragmas de estos sapiens actuales y cuantifica su forma. Luego, teniendo en cuenta la relación entre la forma del diafragma y la forma del tórax, estima cómo sería el diafragma en el Chico de Nariokotome y en el neandertal Kebara 2.

Este análisis concluye que, en base a la forma del tórax, el diafragma es más aplanado en ambos especímenes que en un sapiens actual, y correspondería a una forma de expandirse durante la inspiración no tanto en el plano sagital (es decir, hacia arriba y hacia abajo), sino en el plano mediolateral (es decir, de dentro hacia afuera). Estas conclusiones encajan y refuerzan a las del estudio de 2020, que apreciaba un tórax inferior mucho más amplio y costillas mucho más horizontales en Nariokotome que en Homo sapiens, lo que sugería también un mayor desplazamiento mediolateral de las costillas y una menor expansión vertical durante la inspiración que en H. sapiens.

Reconstrucción de cajas torácicas y representación de diafragmas en Homo erectus WT 15000, Homo neanderthalensis Kebara 2, Homo sapiens adultos y subadultos

Reconstrucción de cajas torácicas y representación de diafragmas en Homo erectus WT 15000, Homo neanderthalensis Kebara 2, Homo sapiens adultos y subadultos. Crédito: José M. López-Rey et al (2023).

Sigue leyendo →

Más o menos claridad en los orígenes de Homo: el niño erectus de Melka Kunture y la primera tecnología achelense

Más o menos claridad en los orígenes de Homo: el niño erectus de Melka Kunture y la primera tecnología achelense

Hace tiempo que descartamos una supuesta linealidad evolutiva entre Homo habilis y Homo erectus en los comienzos de «lo humano». Por una parte, tenemos habilinos cada vez más recientes, como el maxilar KNM-ER 42703, de tan solo 1,44 Ma (millones de años) y, por otra parte, tenemos erectinos cada vez más antiguos, como el cráneo parcial DNH 134 de Drimolen, Sudáfrica (1,95-2,04 Ma), y el fragmento de occipital KNM-ER 2598 (1,9 Ma). Donde antes los textos ilustraban una posible evolución anagenética desde unos seres más pequeños y primitivos hasta otros con un cerebro y un cuerpo más grandes y unas piernas más largas, ahora vamos intuyendo un cada vez más probable ancestro común de ambos linajes, todavía por conocer, que dio lugar a la gran diversidad de formas africanas cuya interpretación nos trae de cabeza. De hecho, este antepasado podría haber tenido más rasgos habilinos que erectinos, si atendemos a los pequeños cráneos de Dmanisi (Georgia), de 1,8 Ma. En este otro artículo escribí sobre ello en detalle.

Esta semana hemos conocido a un fósil que se une a la lista de los erectinos más antiguos. La mandíbula infantil Garba IVE (apodada simplemente Garba) se halló en 1982 en el nivel E del yacimiento Garba IV, uno de los más antiguos del complejo de sitios arqueopaleontológicos de Melka Kunture (Etiopía), que abarca tecnologías olduvayense, achelense y MSA. Esta mandíbula de un niño de 2-3 años se ha reevaluado con la ayuda de escáner MicroCT para analizar en el interior del hueso los dientes definitivos no erupcionados, ya que en el exterior sólo se conservan dos dientes deciduos, poco representativos para la identificación a nivel de especie. La anatomía de estos dientes definitivos confirman la adscripción de Garba al taxón de Homo erectus, que ya se intuía por la morfología que la relacionaba con especímenes subadultos como KNM-ER 820 y KNM-ER 1477. De acuerdo a los últimos trabajos de datación del sitio, Garba se convierte en el representante más antiguo de esta especie, con 2,06 Ma de antigüedad.

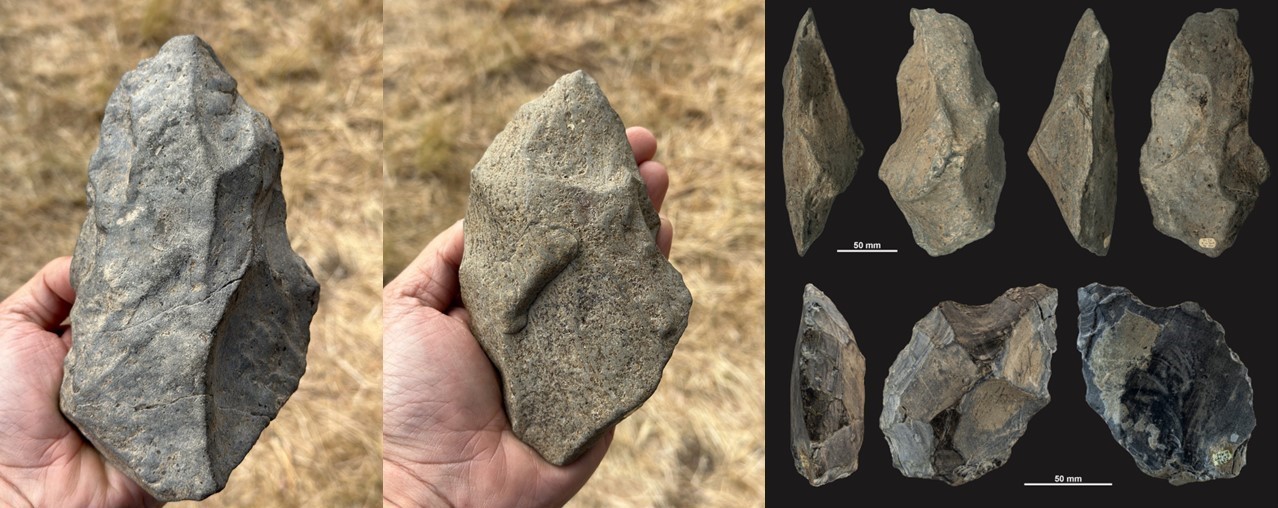
Adicionalmente, el trabajo ha permitido identificar artefactos de talla achelense en el nivel D, fechado en 1,95 Ma, adelantando en ~0,2 Ma la primera presencia conocida de esta tecnología (por ejemplo, la del FLK West, de 1,7 Ma). Por su parte, la tecnología presente en los niveles inferiores de Garba, de 2 Ma, es olduvayense.

Herramientas achelenses del Garba IV (1,95 Ma)

Herramientas achelenses del Garba IV (1,95 Ma). Mussi et al (2023). Cortesía de Eduardo Méndez Quintas.

Sigue leyendo →