Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Superarcaicos: la huella molecular de Homo erectus y su posible relación con los denisovanos

Cuando en publicaciones de trabajos genómicos se habla de grupos humanos superarcaicos, el pensamiento siempre se me va a Homo erectus, esperando (y deseando) que las evidencias moleculares de este grupo humano permitan acotar qué es esta especie y, en particular, si es posible caracterizar su longevidad, éxito evolutivo y distribución geográfica en África y Asia. Desde su aparición en África hace unos 2 Ma (millones de años), poblaciones erectinas se extendieron por toda Eurasia, desde su extremo occidental, dejando su rastro en humanos con rasgos afines a H. erectus en la Sima del Elefante (Atapuerca, España) hace 1,4 Ma, hasta su extremo oriental, llegando a persistir en Indonesia hasta hace solo unos 100 ka (miles de años).

Sin embargo, a pesar de su importancia en nuestra historia evolutiva, conocemos muy poco sobre su diversidad genética, debido a que precisamente la antigüedad de sus fósiles y las condiciones de conservación han dificultado la recuperación de ADN antiguo. En ausencia de este, la investigación en esa cronología tiene un gran potencial con la paleoproteómica. En concreto, el esmalte dental constituye un material especialmente favorable en esta técnica, por su elevada mineralización y capacidad de preservar restos proteicos. Hasta ahora, de H. erectus se habían podido analizar algunos péptidos de un diente de Dmanisi (Georgia, 1,77 Ma), pero sin resultados concluyentes sobre variantes distintivas.

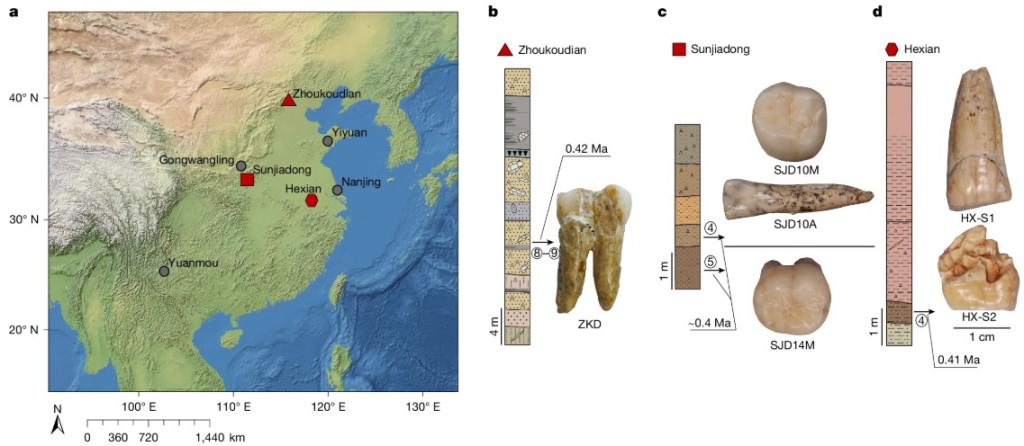
Qiaomei Fu y colaboradores han conseguido un gran avance en este ámbito, mediante el análisis de proteínas del esmalte dental de seis individuos de H. erectus de tres yacimientos chinos contemporáneos de hace unos 400 ka, que abarcan una gran región de norte a sur: Zhoukoudian (el icónico Hombre de Pekín), Hexian y Sunjiadong, junto con una muestra de Harbin, denisovano, utilizado como comparación. Mediante espectrometría de masas, se han recuperado entre 650 y 3457 péptidos endógenos por espécimen, correspondientes a entre 6 y 11 proteínas del esmalte. Los principales resultados son los siguientes.

  • Para empezar, se ha identificado el sexo de todos los individuos a partir de la proporción de péptidos específicos de AMELY frente a los de AMELX. El de Zhoukoudian, dos de Sunjiadong, dos de Hexian y el individuo de Harbin resultaron masculinos, mientras que otro de Sunjiadong es femenino.
  • El resultado más relevante fue la identificación de dos variantes de aminoácidos en la ameloblastina (AMBN), proteína implicada en la formación del esmalte dental. La primera, denominada A253G, no se había identificado anteriormente en ningún otro linaje humano ni en otros primates analizados. Al aparecer en los seis individuos de forma compartida y no identificada en los grupos comparativos disponibles, en principio podemos tener una característica distintiva de los H. erectus del Pleistoceno medio asiático. Eso sí, prudencia… La representatividad de seis muestras no permite aún generalizarla a toda la especie.
  • Esta variante AMBN(A253G) también permite afirmar que los individuos de Hexian están molecularmente vinculados a los ejemplares de Zhoukoudian y Sunjiadong y son de H. erectus. Esta cuestión generaba dudas hasta ahora, ya que su morfología presenta algunas semejanzas con los fósiles de Java, pero se había llegado a proponer su atribución a los denisovanos.
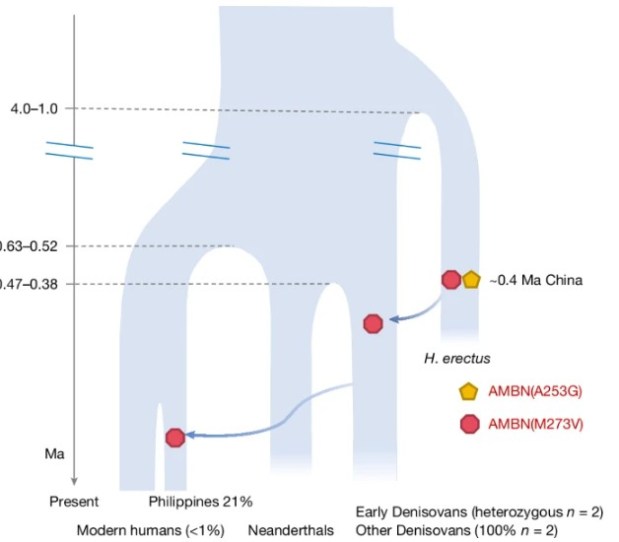
  • La segunda variante identificada, AMBN(M273V) también está presente en los seis individuos, pero ya se había identificado previamente: el alelo derivado correspondiente, rs564905233, aparece en denisovanos y en algunas poblaciones humanas actuales, con frecuencias del 21% en Filipinas, 1,17% en India y 0,71% en Papúa Nueva Guinea, y está ausente en la mayoría de las demás poblaciones. Por ello, los autores proponen que esta variante pudo llegar a los denisovanos mediante el flujo genético procedente de una población humana antigua relacionada con H. erectus.
  • Hemos de conectar esta hipótesis con las evidencias genómicas de introgresión de ADN de linajes superarcaicos en los denisovanos que hemos conocido recientemente. Son poblaciones cuyo origen se remontaría a una divergencia anterior a 1 Ma respecto al antepasado común de denisovanos, neandertales y humanos modernos.
  • Precisamente, hace muy poco Zhang et al. (2026) encontraron que entre un 3% y un 5% de la ascendencia genética denisovana reconstruida podría proceder de un linaje humano superarcaico, cuya separación respecto al que conduce a los humanos modernos sucedería hace 1,8 Ma. Hace apenas unos meses sugería no precipitarnos en identificar a ese grupo como H. erectus, ya que el resultado procedía de una reconstrucción estadística de la historia de los genomas, no de ADN recuperado de aquella población desaparecida. Hoy ya podemos comprar más papeletas para apostar por esa hipótesis.
  • En una etapa posterior, parte de la ascendencia denisovana pasó posteriormente a los humanos modernos, mediante distintos eventos de introgresión de poblaciones próximas a los denisovanos hacia ancestros modernos del sudeste asiático y Oceanía. Se han identificado al menos tres episodios de este tipo, algunos posiblemente ocurridos hace tan solo 20 ka (Gokcumen, 2019).
Sigue leyendo →
Harbin, denisovanos y el nombre de su especie

Harbin, denisovanos y el nombre de su especie

Los lectores habituales conoceréis mi debilidad por los denisovanos. Desde el momento en que se identificó este grupo humano a partir de su material genético, que los distinguía de sus contemporáneos neandertales y sapiens, estaba claro que iba a ser una revolución en paleoantropología. La visión tradicionalmente europeísta que muchas veces se ha dado a esta disciplina al analizar el Pleistoceno medio queda superada con estos humanos asiáticos, de los que hasta ahora se conocían unos pocos dientes, un par de mandíbulas, algún fragmento óseo aislado y restos de ADN sedimentario. Pero no se había identificado un cráneo denisovano, parte esqueletal clave para caracterizar a una especie.

Por otro lado, en los últimos años también hemos conocido el cráneo de Harbin, el «Hombre Dragón». Presenta una fascinante combinación de caracteres basales y derivados. Tiene frente baja, doble arco supraorbital, región nasal muy amplia, pero una cara corta, plana, grácil y poco proyectada. El cráneo es alargado y su capacidad de 1420 cc está en la mitad superior del promedio de Homo sapiens. El ancho máximo del cráneo está su mitad inferior. El paladar es ancho y poco profundo, con hueso alveolar grueso para alojar molares grandes (de los que solo conserva uno). La fosa suprainíaca apenas muestra la notable depresión típica de los neandertales, y el desarrollo del proceso mastoideo es ligero, similar al de H. sapiens.

La novedad es que, tras varios intentos por recuperar material genético de este cráneo, se ha logrado identificar ADN mitocondrial (ADNmt) a partir del cálculo dental (Fu et al., 2025). Aunque la mayor parte del ADNmt procede de bacterias, una pequeña fracción pertenece a células de la boca. Este ADNmt se sitúa dentro de la variación genética de los denisovanos. Harbin está relacionado más estrechamente con los linajes denisovanos antiguos de la cueva de Denisova (individuos Denisova 2, de 123-194 ka, y Denisova 8, 190 ka, que forman un clado con Denisova 19, 20 y 21) que con los más modernos (Denisova 3, 52-76 ka, y Denisova 4, 55-84 ka). Si el lector quiere ampliar información sobre estas ramas de denisovanos, hace poco escribí sobre ello.

Sigue leyendo →
Homo juluensis, Homo longi y denisovanos

Homo juluensis, Homo longi y denisovanos

Si me pidieran destacar un solo avance en paleoantropología en la última década, me quedaría con los hallazgos relacionados con la evolución humana en Asia. En concreto, el progreso en el estudio de los diversos grupos humanos que habitaron el Pleistoceno medio (o Chibaniense) ha comenzado a arrojar luz sobre linajes previamente poco comprendidos. Desde la primera publicación sobre los denisovanos, se han realizado interesantes esfuerzos para identificar diferentes linajes humanos que tradicionalmente se agrupaban bajo el concepto de «formas transicionales» entre Homo erectus y Homo sapiens, y que se distinguían de los neandertales:

  • En 2021 se propuso un nuevo grupo monofilético, hermano del linaje sapiens, que incluye los cráneos chinos de Dali (~260 ka, miles de años), Harbin (146-309 ka), Hualongdong (275-331 ka) y Jinniushan (280 ka), así como la mandíbula de Xiahe (160 ka), posiblemente denisovana. Curiosamente, este clado también incluiría fósiles africanos (los cráneos de Eliye Springs y de Salé) y europeos (los restos de Homo antecessor, Atapuerca). A su vez, este clado se diferenciaría del formado por los especímenes africanos y europeos asociados a Homo heidelbergensis/rhodesiensis. Representarían una evolución más próxima a nuestra especie que el linaje neandertal.
  • Poco después, se presentó el cráneo de Harbin. Aunque las caras de Dali y Harbin se asemejan por su gracilidad, se identificaron una serie de rasgos distintivos que llevaron a definir un nuevo taxón para Harbin, Homo longi («Hombre Dragón»), mientras que los cráneos de Hualongdong y Dali se asignaron a Homo daliensis. Sin embargo, la denominación H. daliensis parece descartarse actualmente porque en su origen se definió como subespecie (H. sapiens daliensis, 1981).
  • En 2023 se publicó un estudio detallado de la mandíbula del cráneo Hualongdong 6. Aunque la modernidad de su cara ya se había reconocido como una morfología cercana a la de H. sapiens sorprendentemente temprana, su mandíbula presenta una combinación inesperada de rasgos arcaicos y modernos. Este mosaico no se había registrado en otros miembros de Homo aproximadamente contemporáneos de Asia oriental, como Xujiayao, Penghu y Xiahe. La mandíbula de HLD 6 refuerza la gran diversidad morfológica durante este periodo y sugiere que podría formar parte de un grupo con algunas morfologías modernas presentes ya desde hace 300 ka, antes de la aparición de los humanos modernos en Asia oriental.

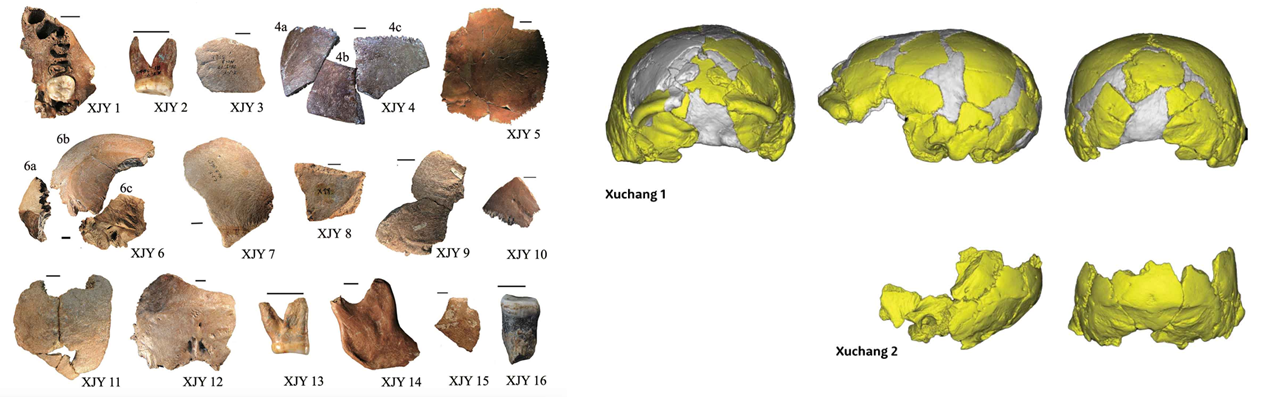
Ahora, Bae y Wu (2024) han propuesto un nuevo taxón, Homo juluensis, para agrupar seis especímenes que habitaron Asia durante este periodo. «Ju lu» en chino se refiere a una cabeza enorme, una de las características distintivas de estos especímenes («Juluren»). El principal motor de esta propuesta son los restos humanos de Xujiayao, compuestos por fragmentos craneales y dientes inicialmente considerados denisovanos tempranos. El cráneo más completo, Xujiayao 6, tiene una capacidad de unos 1700 cc, muy superior al promedio de H. sapiens (1350 cc) y H. neanderthalensis (1450 cc). Los dientes de Xujiayao presentan rasgos que recuerdan a los erectus de Zhoukoudian, como la forma de pala del incisivo; a los neandertales, como la curva de la corona; y a H. sapiens, en el desarrollo de los molares. La datación estimada para Xujiayao es de 200-160 ka. Al comparar los fósiles de Xujiayao con los dos cráneos parciales de otro sitio chino, Xuchang, la semejanza morfológica del cráneo y de los dientes sugiere la inclusión de estos últimos en H. juluensis. El individuo Xuchang 1 tiene una capacidad craneal de 1800 cc, todavía mayor que la de Xujiayao, y vivió unos 60-70 ka después (125-105 ka).

Izquierda: restos de Xujiayao (crédito: Wu, 2024). Derecha: cráneos de Xuchang reconstruidos digitalmente (crédito: Li et al, 2017)

Sigue leyendo →

Conozcamos a Homo longi, el Hombre Dragón

Conozcamos a Homo longi, el Hombre Dragón

En un vistazo rápido, algunos de sus rasgos más llamativos pueden llevar a pensar que se trata de un hominino bastante antiguo. Sin embargo, descubramos por qué en realidad puede estar más cerca de nuestro linaje sapiens de lo que parece…

Conferencia impartida para el Club de Ciencia Boadilla, inscrita en la Semana de la Ciencia de Madrid (noviembre 2023).

Homo daliensis, Homo longi y denisovanos

Homo daliensis, Homo longi y denisovanos

[English version below]

El cráneo de Dali fue hallado en 1978 por el geólogo Shuntang Liu en el curso bajo del río Luo, en una terraza fluvial llamada Tianshuigou (109°40E, 34°52N), en la provincia de Shaanxi. Se trata de un valle encajado entre la meseta de Loess al norte y las montañas Qinling al sur, un área con otros sitios arqueológicos que evidencian un importante foco de ocupación y evolución de los homininos en el centro-suroeste de China. El condado de Dali da nombre al fósil.

Hasta la presentación del cráneo de Harbin en 2021, el de Dali era el cráneo más completo del Pleistoceno medio de China. En su publicación en 1981, Xinzhi Wu lo describió como una forma intermedia entre Homo sapiens y Homo erectus, un posible tipo arcaico de H. sapiens, y con rasgos que le separan del linaje neandertal: «Por tanto, aquí se considera una nueva subespecie: Homo sapiens daliensis». Aunque esta denominación fue cayendo en desuso, y el cráneo de Dali era más bien considerado un Homo sapiens arcaico, o incluso un Homo heidelbergensis. En realidad, el término sapiens arcaico debe restringirse a los fósiles africanos tempranos que tienen una mayoría de los rasgos característicos del linaje sapiens (cráneo alto y redondeado, cara pequeña, mentón, huesos ligeros con pelvis estrecha, etc.). Algunos de los rasgos de Dali se alejan de este patrón de sapiens arcaico.

En 2021 se propuso un nuevo linaje humano en el Pleistoceno medio, compuesto por un grupo monofilético que incluye a los cráneos chinos de Dali (datado en unos 260 ka), Harbin (146-309 ka), Hualongdong (275-331 ka) y Jinniushan (280 ka), así como a la mandíbula de Xiahe (160 ka), que posiblemente es denisovana. Este clado sería diferente del formado por los especímenes africanos y europeos asociados a H. heidelbergensis/H. rhodesiensis, y hermano del clado Homo sapiens: representarían una evolución más próxima a nuestra especie que el linaje neandertal.

Conozcamos el cráneo de Dali

Su capacidad estimada es de 1120 cc. Es una pena que no conserve ni dentición ni mandíbula inferior. Tras un primer vistazo donde se aprecia claramente el mosaico de rasgos arcaicos y modernos, sorprende la modernidad de los rasgos faciales: Dali tiene una cara pequeña y plana, no proyectada, pómulos suaves, órbitas cuadradas con bordes redondeados, sin constricción posorbital, fosa canina y seno maxilar pronunciados. También son modernos los parietales alzados, con el ancho máximo del cráneo en su parte superior.

Sigue leyendo →