Yunxian, el origen de Homo longi y la línea evolutiva denisovanos-sapiens

Yunxian, el origen de Homo longi y la línea evolutiva denisovanos-sapiens

Actualizado febrero 2026 [English version below]

En la localidad de Yunxian, situada a orillas del río Han en la provincia de Hubei (China central), se han descubierto tres cráneos humanos en sucesivas campañas de 1989, 1990 y 2022, procedentes del yacimiento de Xuetangliangzi. Aunque su antigüedad se estimaba en 0,94-1,1 Ma (millones de años) basado en el estudio faunístico (Dong, 2016), una nueva datación (Tu et al, 2026) sitúa sorprendentemente el yacimiento en 1,77 Ma.

Los dos primeros cráneos presentan un mal estado de conservación. Yunxian 1 está severamente aplastado, mientras que la deformación de Yunxian 2 es menos notable. Tradicionalmente se han atribuido a Homo erectus, Homo heidelbergensis o bien Homo sapiens «arcaico» (ahora mejor llamado Homo sapiens basal). El tercero está siendo extraído de la matriz rocosa y está pendiente de estudio. Mediante el uso de escáneres de tomografía computarizada y modelado digital de alta resolución, Feng y colaboradores han reconstruido virtualmente y analizado el cráneo Yunxian 2, incorporando detalles anatómicos de Yunxian 1.

Tras la reconstrucción, el fósil solo carece de pequeñas partes de los arcos cigomáticos y de los incisivos centrales ausentes. El cráneo virtual resultante revela una mezcla de rasgos considerados primitivos o ancestrales (plesiomorfias) y derivados o novedosos (apomorfias).

Es plesiomórfico en su forma general, recordando a otros Homo tempranos euroasiáticos normalmente asociados a H. erectus. Es un cráneo largo y bajo, con frontal retraído y perfil parietal plano. Tiene un toro supraorbital ancho, pero no muestra el occipital fuertemente angulado con un prominente toro transversal típico de H. erectus y de algunos cráneos humanos del Pleistoceno medio africano y europeo. Tampoco tiene la protuberancia occipital con depresión central (fosa suprainíaca) característica de los neandertales. Visto desde atrás, el cráneo es algo estrecho en la parte superior, con huesos temporales y parietales que convergen superiormente, aunque menos que en H. erectus. A la vez, carece de la expansión parietal de los H. sapiens y de la forma abombada típica de los neandertales. De perfil, la cara es alta y algo proyectada hacia delante, similar a H. erectus y a fósiles del Chibaniano (Pleistoceno medio), pero en menor grado. Los huesos nasales sobresalen mucho, aunque la zona media de la cara no está adelantada como en los neandertales. La parte superior de la cara y la abertura nasal son anchas. Los pómulos son grandes y altos, pero se disponen planos y orientados hacia delante, recordando a Homo antecessor, a fósiles asiáticos como Harbin, Dali, Jinniushan o Hualongdong, e incluso a H. sapiens. Por último, los terceros molares son sorprendentemente pequeños, alejados de los erectinos.

Su capacidad endocraneal (~1143 cc) supera a la de especímenes de H. erectus contemporáneos. Es más pequeño que los cráneos de Harbin y Xuchang, aproximadamente del mismo tamaño que el de Kabwe, Jinniushan, Petralona y Bodo, y mayor que los de Sangiran 17, Irhoud 1 y Maba.

Sigue leyendo →
Los dientes de Hualongdong en el enredo del Pleistoceno medio asiático

Los dientes de Hualongdong en el enredo del Pleistoceno medio asiático

Entre 2014 y 2015 se recuperó un conjunto de restos humanos de 300 ka en el yacimiento de Hualongdong (HLD), provincia de Anhui, sur de China: un cráneo casi completo con 14 dientes, un maxilar parcial con un premolar, seis dientes aislados, tres secciones diafisarias femorales y algunas piezas craneales.

En contraste con otros especímenes más aislados y fragmentarios de este periodo en Asia oriental, la abundancia de hallazgos en HLD, junto con un marco cronoestratigráfico confiable, otorga gran relevancia a este conjunto para explorar la variabilidad de los homininos del Pleistoceno medio asiático y su relación con grupos humanos posteriores.

Los rasgos más destadados en los fósiles de HLD son los siguientes:

  • Las extremidades de HLD tienen rasgos predominantemente primitivos (Xing et al., 2020), compartidos con los Homo tempranos.
  • La mandíbula presenta una combinación inesperada de rasgos arcaicos y modernos (Wu et al., 2023) también identificada en otros homininos del mismo periodo de Asia oriental, como Xujiayao, Penghu y Xiahe.
  • La cara es moderna, con características que la acercan a formas tempranas de humanos modernos (Wu et al., 2021). Esto refleja una transición hacia la morfología moderna en el este asiático hace 300 ka, es decir, unos 80-100 ka antes de lo que se suponía.
  • La capacidad craneal de HLD es de ∼1150 cc, cercana a la de Dali (∼1120 cc), inferior que la de Maba (∼1300 cc), Jinniushan (∼1360 cc) y Harbin (∼1450 cc), y mucho más pequeña que la de Xujiayao y Xuchang (~1800 cc). Estos dos últimos parecen alejarse del resto, debido a su tamaño y a la expresión de algunas características neandertales, como el suelo nasal en dos niveles, (Wu et al., 2012), la porción petrosa del temporal distintiva y el toro occipital delgado. Aunque Bae y Wu (2024) proponen el taxón Homo juluensis para Xujiayao, Xuchang y los especímenes asignados de los denisovanos, la atribución denisovana de Harbin (Homo longi) de acuerdo a su ADNmt y su proteoma, invalidaría dicho taxón. 
  • El cráneo de HLD tiene más características en común con Dali que con el resto de especímenes contemporáneos de la región: cara relativamente plana, posición alta de la anchura craneal máxima, protuberancia frontal débil, cresta sagital frontal, constricción postorbitaria débil, escama temporal alta y arqueada, fosa temporomandibular poco profunda, toro supraorbitario desarrollado y doblemente arqueado, más grueso en las órbitas medias y menos arqueado y más delgado en las porciones laterales, y depresión débil en la glabela.

Ahora se ha publicado el estudio de los 21 dientes de HLD (Wu, Martinón-Torres, Xing et al., 2025). La mayoría de las características dentales no se parecen a las neandertales y se asemejan a las de los homininos del Pleistoceno final, como el tercer molar reducido, a pesar de su edad del Pleistoceno medio. Se exceptúan las raíces robustas de los premolares y molares, que sí se aproximan a las morfologías de su periodo. En general, estas características no están presentes en la mayoría de especímenes del Pleistoceno medio tardío en Asia oriental (300-120 ka), salvo quizás en los de Panxian Dadong o Jinniushan.

Sigue leyendo →
Harbin, denisovanos y el nombre de su especie

Harbin, denisovanos y el nombre de su especie

Los lectores habituales conoceréis mi debilidad por los denisovanos. Desde el momento en que se identificó este grupo humano a partir de su material genético, que los distinguía de sus contemporáneos neandertales y sapiens, estaba claro que iba a ser una revolución en paleoantropología. La visión tradicionalmente europeísta que muchas veces se ha dado a esta disciplina al analizar el Pleistoceno medio queda superada con estos humanos asiáticos, de los que hasta ahora se conocían unos pocos dientes, un par de mandíbulas, algún fragmento óseo aislado y restos de ADN sedimentario. Pero no se había identificado un cráneo denisovano, parte esqueletal clave para caracterizar a una especie.

Por otro lado, en los últimos años también hemos conocido el cráneo de Harbin, el «Hombre Dragón». Presenta una fascinante combinación de caracteres basales y derivados. Tiene frente baja, doble arco supraorbital, región nasal muy amplia, pero una cara corta, plana, grácil y poco proyectada. El cráneo es alargado y su capacidad de 1420 cc está en la mitad superior del promedio de Homo sapiens. El ancho máximo del cráneo está su mitad inferior. El paladar es ancho y poco profundo, con hueso alveolar grueso para alojar molares grandes (de los que solo conserva uno). La fosa suprainíaca apenas muestra la notable depresión típica de los neandertales, y el desarrollo del proceso mastoideo es ligero, similar al de H. sapiens.

La novedad es que, tras varios intentos por recuperar material genético de este cráneo, se ha logrado identificar ADN mitocondrial (ADNmt) a partir del cálculo dental (Fu et al., 2025). Aunque la mayor parte del ADNmt procede de bacterias, una pequeña fracción pertenece a células de la boca. Este ADNmt se sitúa dentro de la variación genética de los denisovanos. Harbin está relacionado más estrechamente con los linajes denisovanos antiguos de la cueva de Denisova (individuos Denisova 2, de 123-194 ka, y Denisova 8, 190 ka, que forman un clado con Denisova 19, 20 y 21) que con los más modernos (Denisova 3, 52-76 ka, y Denisova 4, 55-84 ka). Si el lector quiere ampliar información sobre estas ramas de denisovanos, hace poco escribí sobre ello.

Sigue leyendo →
Prehistoria de los homininos que ocuparon la cueva Denisova

Prehistoria de los homininos que ocuparon la cueva Denisova

Poco a poco vamos completando la historia de lo que ocurrió en la cueva Denisova desde hace 300 ka (miles de años). Jacobs, Zavala, Li y otros compañeros describen de forma exhaustiva en su publicación la cronología de los homininos y la fauna que ocuparon la cueva en distintos momentos hasta la llegada de los humanos modernos. Este yacimiento es clave para comprender la evolución de los enigmáticos denisovanos, su interacción con los dos homininos con los que convivió y están muy próximos genéticamente (Homo neanderthalensis y Homo sapiens), así como los cambios faunísticos asociados a las fluctuaciones climáticas de este tramo del Pleistoceno.

Los hallazgos se basan en dataciones ópticas y el análisis de ADN mitocondrial y de ADN nuclear extraído de sedimentos de las tres cámaras principales de la cueva (Principal, Este y Sur). Por primera vez, las tres cámaras se estudian de manera integral en este trabajo, ya que hasta ahora el foco había estado en la Principal y la Este. En estas dos cámaras se habían hallado hasta ahora seis fósiles de denisovanos, cuatro de neandertales y un fragmento óseo de un descendiente de neandertal-denisovano (Denisova 11), así como fragmentos de ADNmt de denisovanos, neandertales y humanos modernos en 160 muestras de sedimentos. Mientras tanto, en la Cámara Sur se han recuperado dos dientes denisovanos (Denisova 4 y 25), dos fragmentos de cráneo denisovanos (Denisova 13 y 22), y ADNmt hominino en 15 muestras de sedimento.

Sigue leyendo →
Homo juluensis, Homo longi y denisovanos

Homo juluensis, Homo longi y denisovanos

Si me pidieran destacar un solo avance en paleoantropología en la última década, me quedaría con los hallazgos relacionados con la evolución humana en Asia. En concreto, el progreso en el estudio de los diversos grupos humanos que habitaron el Pleistoceno medio (o Chibaniense) ha comenzado a arrojar luz sobre linajes previamente poco comprendidos. Desde la primera publicación sobre los denisovanos, se han realizado interesantes esfuerzos para identificar diferentes linajes humanos que tradicionalmente se agrupaban bajo el concepto de «formas transicionales» entre Homo erectus y Homo sapiens, y que se distinguían de los neandertales:

  • En 2021 se propuso un nuevo grupo monofilético, hermano del linaje sapiens, que incluye los cráneos chinos de Dali (~260 ka, miles de años), Harbin (146-309 ka), Hualongdong (275-331 ka) y Jinniushan (280 ka), así como la mandíbula de Xiahe (160 ka), posiblemente denisovana. Curiosamente, este clado también incluiría fósiles africanos (los cráneos de Eliye Springs y de Salé) y europeos (los restos de Homo antecessor, Atapuerca). A su vez, este clado se diferenciaría del formado por los especímenes africanos y europeos asociados a Homo heidelbergensis/rhodesiensis. Representarían una evolución más próxima a nuestra especie que el linaje neandertal.
  • Poco después, se presentó el cráneo de Harbin. Aunque las caras de Dali y Harbin se asemejan por su gracilidad, se identificaron una serie de rasgos distintivos que llevaron a definir un nuevo taxón para Harbin, Homo longi («Hombre Dragón»), mientras que los cráneos de Hualongdong y Dali se asignaron a Homo daliensis. Sin embargo, la denominación H. daliensis parece descartarse actualmente porque en su origen se definió como subespecie (H. sapiens daliensis, 1981).
  • En 2023 se publicó un estudio detallado de la mandíbula del cráneo Hualongdong 6. Aunque la modernidad de su cara ya se había reconocido como una morfología cercana a la de H. sapiens sorprendentemente temprana, su mandíbula presenta una combinación inesperada de rasgos arcaicos y modernos. Este mosaico no se había registrado en otros miembros de Homo aproximadamente contemporáneos de Asia oriental, como Xujiayao, Penghu y Xiahe. La mandíbula de HLD 6 refuerza la gran diversidad morfológica durante este periodo y sugiere que podría formar parte de un grupo con algunas morfologías modernas presentes ya desde hace 300 ka, antes de la aparición de los humanos modernos en Asia oriental.

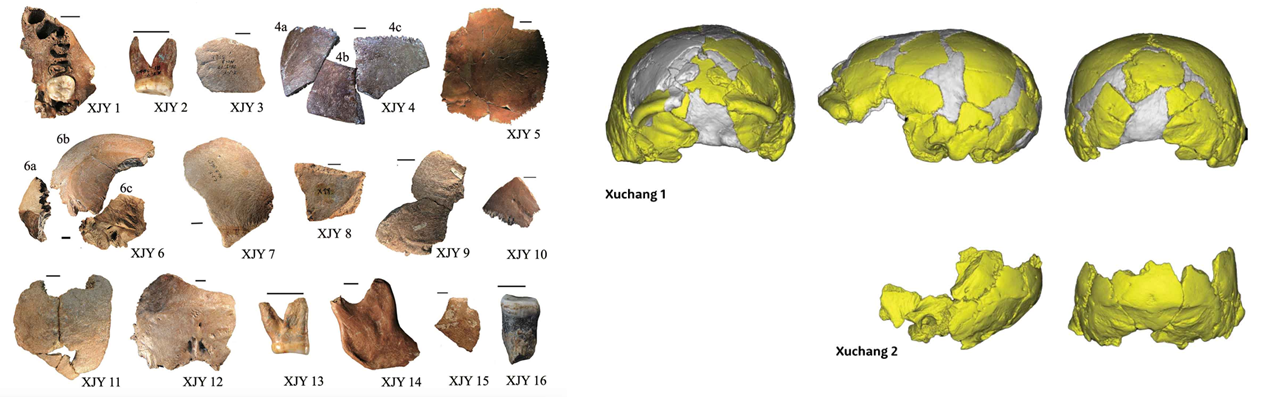
Ahora, Bae y Wu (2024) han propuesto un nuevo taxón, Homo juluensis, para agrupar seis especímenes que habitaron Asia durante este periodo. «Ju lu» en chino se refiere a una cabeza enorme, una de las características distintivas de estos especímenes («Juluren»). El principal motor de esta propuesta son los restos humanos de Xujiayao, compuestos por fragmentos craneales y dientes inicialmente considerados denisovanos tempranos. El cráneo más completo, Xujiayao 6, tiene una capacidad de unos 1700 cc, muy superior al promedio de H. sapiens (1350 cc) y H. neanderthalensis (1450 cc). Los dientes de Xujiayao presentan rasgos que recuerdan a los erectus de Zhoukoudian, como la forma de pala del incisivo; a los neandertales, como la curva de la corona; y a H. sapiens, en el desarrollo de los molares. La datación estimada para Xujiayao es de 200-160 ka. Al comparar los fósiles de Xujiayao con los dos cráneos parciales de otro sitio chino, Xuchang, la semejanza morfológica del cráneo y de los dientes sugiere la inclusión de estos últimos en H. juluensis. El individuo Xuchang 1 tiene una capacidad craneal de 1800 cc, todavía mayor que la de Xujiayao, y vivió unos 60-70 ka después (125-105 ka).

Izquierda: restos de Xujiayao (crédito: Wu, 2024). Derecha: cráneos de Xuchang reconstruidos digitalmente (crédito: Li et al, 2017)

Sigue leyendo →