Paleoantropología: novedades 3er trimestre 2026

Paleoantropología: novedades 3er trimestre 2026

Cerramos el tercer trimestre del año con la reseña de 34 nuevos trabajos que siguen completando, y en algunos casos cuestionando, nuestra visión de la evolución humana.

  • A partir de moldes cerebrales virtuales de primates actuales y fósiles del Eoceno al Mioceno, Kay y colaboradores (2026) reconstruyen la evolución de la neocorteza y cuestionan que su expansión estuviera impulsada principalmente por un crecimiento desproporcionado del lóbulo frontal. El tamaño de la neocorteza aumentó en paralelo en distintos linajes de primates, con incrementos rápidos en tarsios y antropoides, pero el lóbulo frontal evolucionó gradualmente siguiendo un patrón común de escalamiento con el tamaño cerebral. En cambio, las regiones no frontales de la neocorteza aumentaron rápidamente en relación con el tamaño del cerebro en los haplorrinos. Esta expansión coincidió con un incremento del área del foramen óptico, indicador del flujo de información transportada por el nervio óptico, lo que vincula la intensificación del procesamiento visual con la evolución modular y la expansión de la neocorteza de los primates.
  • Una revisión de Brand-Miller y colaboradores propone que los azúcares de frutas y otros alimentos dulces aportaron glucosa a los primeros homininos, antes de que el procesamiento y la cocción facilitaran el aprovechamiento del almidón. Su modelo destaca la demanda de glucosa de un cerebro cada vez mayor y de los tejidos reproductivos, especialmente durante el embarazo y la lactancia. La hipótesis amplía el papel atribuido a los carbohidratos junto al de los alimentos animales.
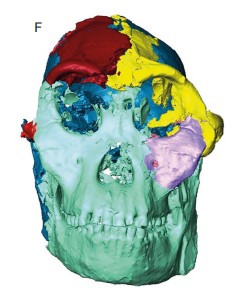
  • La reconstrucción virtual del esqueleto facial de StW 573, apodado Little Foot (Beaudet et al., 2026) en comparación con Sts 5 y A.L. 444-2 (Australopithecus) y con grandes simios modernos, sitúa el tamaño de la cara entre el de un gorila y el de un orangután, mientras que la forma se parecía más a la de los orangutanes y los bonobos. El tamaño, forma y dimensiones de las cuencas de sus ojos son más similares a los Australopithecus de África oriental.
  • Se han publicado 18 fósiles de homininos de Drimolen no descritos previamente (Martin et al., 2026), de los que uno se asigna a Homo erectus, 14 a Paranthropus robustus y tres sin asignación específica. El estudio refuerza la idea de que la población de P. robustus de Drimolen es morfológicamente distinta y proporciona evidencia adicional de la presencia de H. erectus en Sudáfrica hace 2,04-1,95 Ma.
  • El examen del hueso alveolar en 71 mandíbulas de distintas especies de homininos entre 5,3 Ma y 2,6 Ma (Ripamonti et al., 2026) pone de manifiesto una frecuencia mucho mayor de destrucción ósea por periodontitis en el género Homo. Los autores relacionan esta diferencia con la progresiva reducción de la mandíbula y del aparato masticador, que habría liberado espacio en la región craneal. En paralelo, mutaciones genéticas habrían conducido a reducir el tamaño de las coronas dentales en los primeros Homo. La periodontitis sería así una consecuencia indirecta de un conjunto más amplio de transformaciones anatómicas, genéticas y funcionales en las primeras especies humanas.
  • Comparando la resistencia ósea del fémur con la del húmero en distintos especímenes fósiles y restos de humanos actuales, Carlsson y colaboradores muestran una fase prolongada en Australopithecus en la que la bipedación terrestre convivió con una utilización todavía habitual de los árboles, seguida por una especialización mucho mayor hacia la vida terrestre en Homo.
  • Hubbe y Harvati (2026) cuestionan que el aumento progresivo del cerebro y la reducción de la robustez facial en el género Homo fueran impulsados principalmente por una selección natural direccional y gradual. A partir del análisis morfométrico 3D de 63 cráneos fósiles y 24 de H. sapiens recientes, agrupados en ocho conjuntos desde los primeros Homo hasta neandertales y humanos modernos, compararon la evolución del neurocráneo y la cara con las predicciones de seis modelos evolutivos. Los resultados se ajustan mejor a procesos de evolución neutral y, especialmente, de estasis y selección estabilizadora, que a una selección continuada hacia cerebros mayores y caras más reducidas. Los autores proponen así que las restricciones evolutivas, las condiciones ambientales y posiblemente comportamientos culturales que amortiguaron determinadas presiones selectivas tuvieron un papel más importante de lo asumido en la evolución de la morfología craneal de Homo.
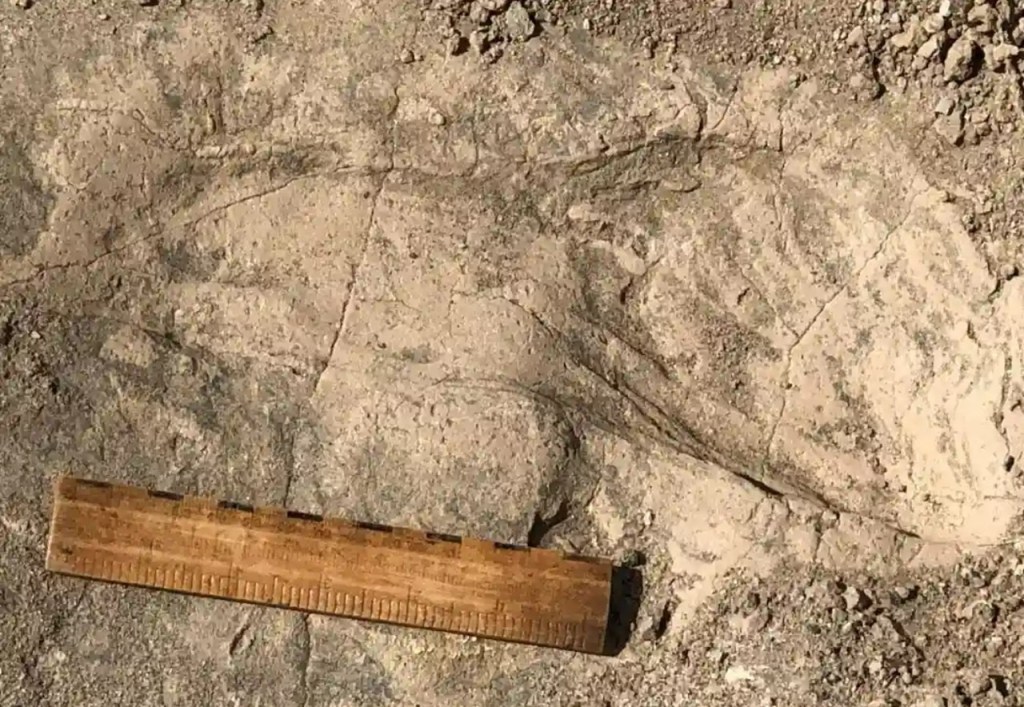
  • En GaJi10, en la orilla oriental del lago Turkana (Kenia), se han documentado 21 huellas de homininos dejadas sobre una misma superficie fangosa hace aproximadamente 1,43 Ma y atribuidas a ocho individuos (Hatala et al., 2026). Su morfología coincide con la de otras huellas atribuidas a Paranthropus boisei y refleja un pie y una locomoción diferentes de los de Homo, más próximos en algunos aspectos a los de Australopithecus. Suponiendo proporciones corporales semejantes a las de este último género, los individuos medibles alcanzarían entre 130,6 y 180,9 cm de estatura y entre 39,8 y 74,6 kg de masa corporal. Cuatro superarían la mayor estatura estimada hasta ahora a partir del esqueleto de P. boisei y dos, la mayor masa conocida para esta especie. Will et al. (2017) estimaban para P. boisei un promedio de 131,1 cm y un máximo conocido hasta entonces de 161,3 cm. Las huellas parecen corresponder mayoritariamente a machos adultos que se desplazaban juntos, sin indicios de hembras ni individuos infantiles, una composición que los autores relacionan con posibles formas complejas de organización social. La misma superficie conserva además 146 huellas de otros animales: 67 de hipopótamo, 64 de bóvido, 13 de ave y 2 de équido..
Sigue leyendo →
Paleoantropología: novedades 4º trimestre 2025

Paleoantropología: novedades 4º trimestre 2025

Cerramos un gran año en hallazgos paleoantropológicos. En el último trimestre recopilé 46 publicaciones que ilustran la riqueza acumulada: los cuatro resúmenes trimestrales de 2025 suman 198 novedades. ¡Feliz 2026!

  • Combinando modelos tridimensionales de cráneos y métodos comparativos filogenéticos, Gómez-Robles y colaboradores han analizado la velocidad a la que distintas regiones del rostro y del neurocráneo cambiaron a lo largo del tiempo en distintos linajes de primates. El linaje humano duplicó la tasa esperada de cambio morfológico, y esto sucedió en la mayoría de los rasgos craneofaciales, separándose claramente de otros grandes simios y mostrando una selección direccional.
  • Al contrario que el desarrollo prolongado en el neurocráneo de Homo sapiens y Homo erectus, en Australopithecus afarensis y Paranthropus robustus los patrones de desarrollo son variables (Braga, Alemseged y Gilissen, 2025). De hecho, Au. afarensis exhibe un crecimiento endocraneal prolongado en comparación con P. robustus, un contraste incluso mayor que el de Pan paniscus y Pan troglodytes, lo que sugiere que el desarrollo endocraneal en Au. afarensis se asemeja más al de H. sapiens que al de P. robustus.
  • El análisis 3D morfométrico de las inserciones ligamentarias radiocarpianas (Casado et al., 2025) en 110 radios de homininos fósiles aporta información sobre sus patrones locomotores: Au. afarensis, Au. anamensis y Au. sediba combinaban locomoción bípeda y arbórea similar a chimpancés y orangutanes; P. robustus tenía una locomoción terrestre más similar a la de los gorilas; neandertales y H. sapiens basales muestran una anatomía similar a la de los humanos actuales, pero algo más de robustez orientada a cargas manuales (caza/herramientas).
  • El astrágalo ARA-VP-6/500-023 de Ardipithecus ramidus presenta similitudes con los astrágalos de chimpancés y gorilas, adaptados a la escalada vertical y al cuadrupedismo plantígrado terrestre. Además, el fósil tiene rasgos derivados consistentes con un mecanismo de impulso mejorado en el pie de Ar. ramidus. Prang y colaboradores proponen que el último ancestro común de humanos y chimpancés no sería un simio arborícola generalizado, sino un ancestro africano similar a un simio con un repertorio postural que incluía el cuadrupedismo plantígrado terrestre y la escalada vertical, del cual Ar. ramidus representaría un estadio intermedio, con modificaciones incipientes hacia una mayor eficiencia en bipedación. Por otro lado, la bipedación de Ardi sería distinta a la que emplean los grandes simios: su lateral del pie funcionaba mejor para el impulso lateral, dándole un empuje más eficiente al caminar.
Sigue leyendo →
The Top 10 hominin #FossilFriday posts of 2025

The Top 10 hominin #FossilFriday posts of 2025

The #FossilFriday tradition seems to be losing steam, and even hashtags themselves may no longer be as popular as they once were. This trend is also reflected in the declining number of #FossilFriday posts featuring hominin fossils. Still, as long as there continue to be outstanding contributions like those we’ve seen this year, this Top 10 list will live on!

But what exactly is ‘FossilFriday’? Every Friday, social media users share captivating fossil images under the hashtag #FossilFriday. These posts often showcase iconic specimens, museum collections, scientific papers, blog articles, quirky fossils, and much more. I especially enjoy joining in by posting about hominin fossils. So, without further ado, here’s the Top 10 of 2025. Keep posting!

10. The hypnotizing temporomandibular joint of KNM-ER 23000. By Marta Mirazón Lahr @MartaMLahr

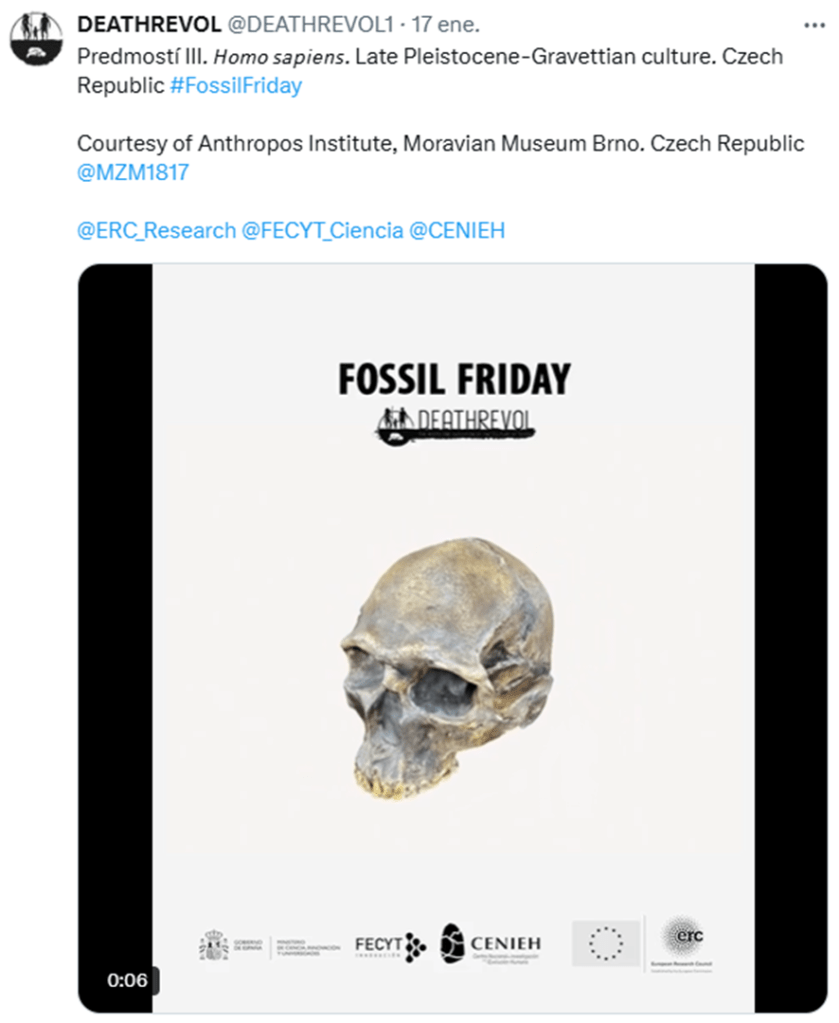
9. Who said fossil skulls can’t be beautiful? By DEATHREVOL @DEATHREVOL1

Sigue leyendo →
Humanos y parántropos cruzándose por el camino

Humanos y parántropos cruzándose por el camino

En 2016, escribí que especímenes de Homo erectus y de Paranthropus boisei coexistieron en el mismo paisaje cerca del Lago Turkana. Entonces usé el término «virtualmente» para subrayar que, aunque algunos milenios pueden parecer un lapso breve en términos geológicos, siguen siendo un periodo extenso. Restos de ambos linajes se han encontrado en capas sedimentarias cercanas en tiempo y espacio, pero esto no significa necesariamente que se hayan visto cara a cara. En todo caso, aquellos hallazgos fueron muy significativos porque demostraban un caso de simpatría entre homininos: la convivencia de dos especies muy distintas en morfología, capacidad craneal y estrategias de aprovechamiento de los recursos naturales. Estas diferencias les permitieron adaptarse a un mismo nicho ecológico minimizando la competencia directa.

Cráneos de Paranthropus boisei KNM ER 406 y de Homo erectus KNM ER 3733. Crédito: Roberto Sáez.

Ahora, tenemos evidencia de que sí coexistieron físicamente al mismo tiempo. Hace 1,5 Ma (millones de años), individuos de ambas especies caminaron por el mismo lugar. Lo sabemos gracias a sus huellas (K. G. Hatala, N. T. Roach, A. K. Behrensmeyer, et al., 2024). Este descubrimiento realmente hace vibrar: no se trata de fósiles que ofrecen una visión estática de cómo pudieron ser sus dueños, sino de rastros que nos hacen imaginar a aquellos seres en movimiento. Podemos figurarnos a cada uno caminando e interactuando con los miembros de su grupo, aunque dudo mucho que entre especies hubiera algo más allá de la curiosidad por verse de vez en cuando. Eran radicalmente distintos en forma y en modo de vida. Los Homo erectus ya tenían una estatura cercana a la nuestra, aunque posiblemente con un cuerpo algo achaparrado, y un cerebro de unos 1000 cc. Los parántropos, en cambio, mostraban una morfología poscraneal más similar a la de los australopitecos, y un cráneo muy distinto al humano, marcado por una mandíbula y una dentición masivas, con un cerebro más pequeño.

Las primeras huellas del sitio FE22 de Koobi Fora (Kenia) aparecieron en 1978. Junto a numerosas pisadas de hipopótamo, aparecieron rastros de un Homo temprano que caminó desde un barro más blando hacia una superficie más dura y menos profunda. En 2021, se descubrió el conjunto completo de huellas, atribuidas a dos tipos distintos de homininos que pasaron por allí con una diferencia de tiempo muy estrecha, de pocos días, quizá incluso en el mismo día. Las huellas sólo se preservan de esta manera si se cubren rápidamente con barro, ceniza u otros sedimentos.

El conjunto incluye una senda de 13 pisadas hechas por un Paranthropus boisei que caminaba rápidamente hacia el este y, a menos de un metro de distancia, sobre la misma superficie, tres huellas aisladas dejadas por dos o tres individuos de Homo erectus que se dirigían hacia el norte. La identificación de las especies se basa en su asociación con los fósiles hallados en la región con esa antigüedad. Las huellas están excepcionalmente bien conservadas, permitiendo comparaciones detalladas con otras conocidas de homininos, así como con las de 340 humanos actuales. Algunas huellas son tan claras que muestran el deslizamiento de los dedos por el barro. Sigue leyendo →

Paleoantropología: novedades 2º trimestre 2024

Paleoantropología: novedades 2º trimestre 2024

Acompañando al cierre del segundo trimestre, aquí va el resumen de 32 novedades publicadas. Os deseo buena lectura y un feliz verano (o invierno, en el hemisferio sur).

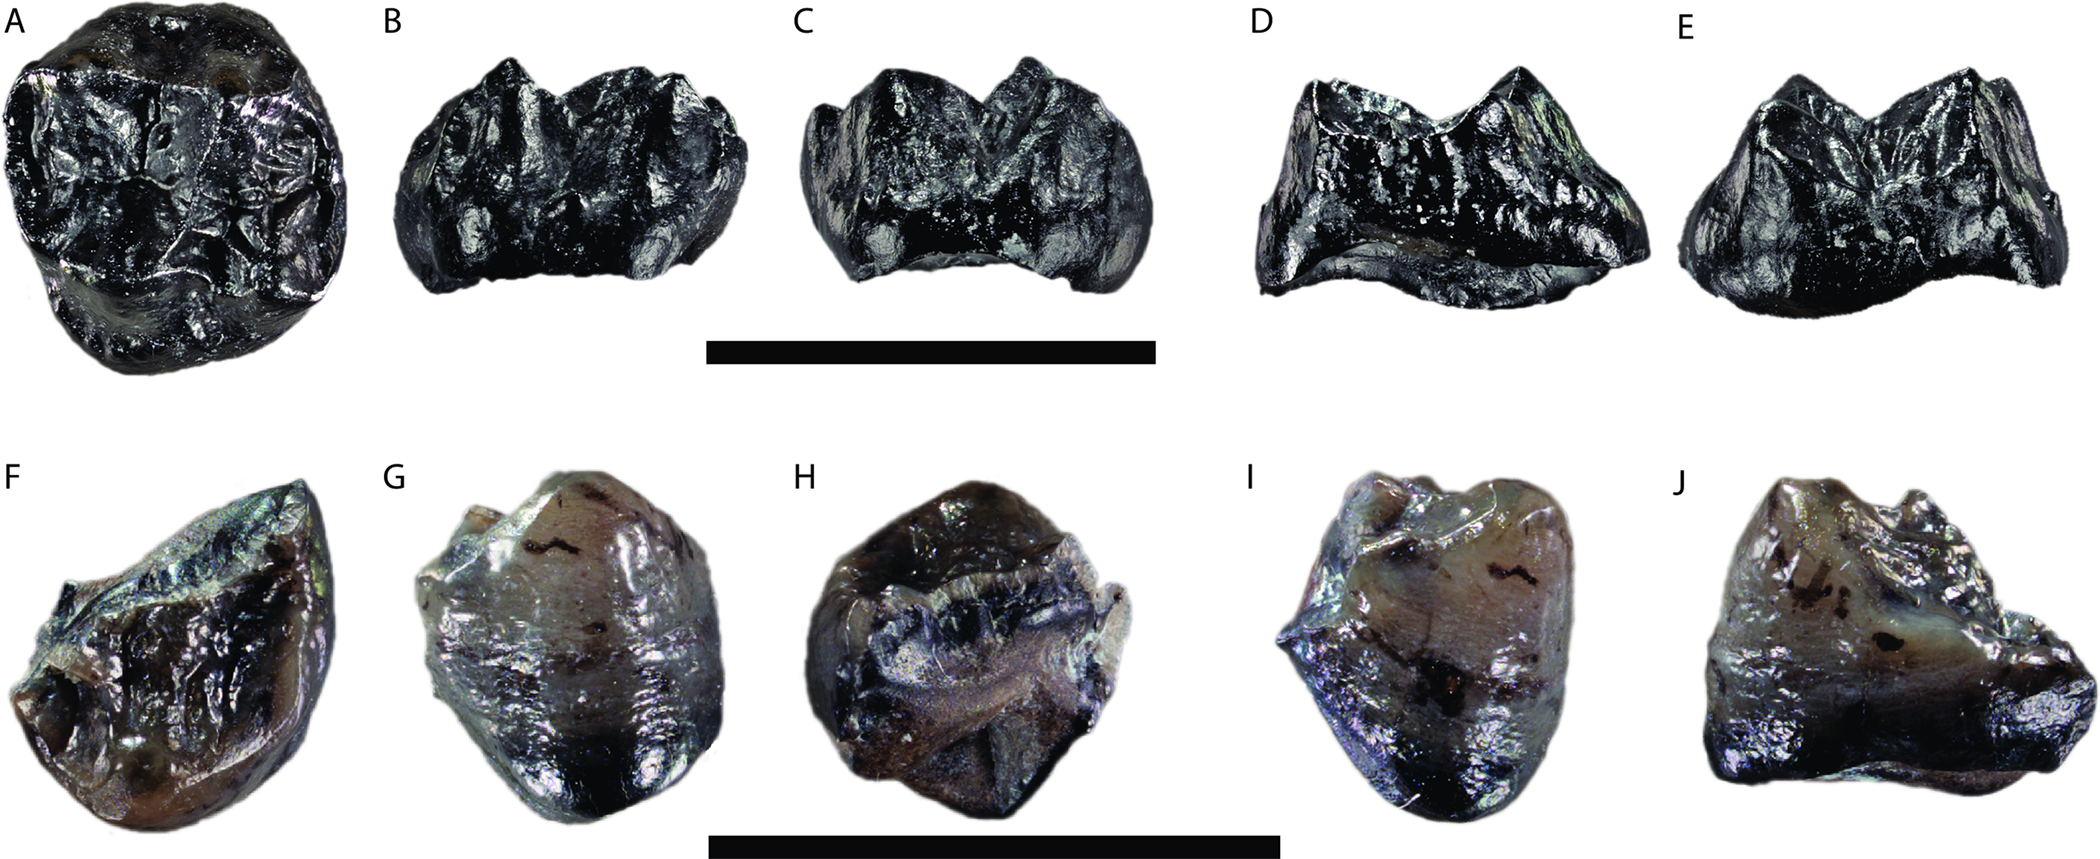
  • Damos la bienvenida a un nuevo homínido, denominado Buronius manfredschmidi, el más pequeño conocido (10 kg de masa corporal). Datado en 11,62 Ma (millones de años), procede de Hammerschmiede (Bavaria, Alemania). Su holotipo es un molar M2 y paratipos un premolar P4 y un fragmento de paladar. Contrastando con la frecuente simpatría de hominoides (más de una especie conviviendo en el mismo área) en el Mioceno inicial y medio de África, hasta ahora no se conocía ningún caso de simpatría en el Mioceno europeo. En el mismo nivel 5 de Hammerschmiede, se halló el Danuvius guggenmosi presentado en 2019.

  • La morfología mediofacial varía mucho entre los grandes simios y los humanos, en los que la cara es pequeña y retraída. Aún se desconocen en gran medida los procesos de desarrollo subyacentes a estas diferencias morfológicas. El estudio de la cara media de distintos primates concluye que, en general, los humanos comparten el patrón de modelado óseo mediofacial de los grandes simios, pero la reabsorción ósea es elevada en la zona canina desde el nacimiento, lo que puede ser una clave de la reducción canina en la evolución facial; también, que los humanos presentan altos niveles de reabsorción ósea durante la infancia, una característica que no comparten con otros simios [+].
  • Una revisión del trabajo de Daver et al. (2022) (que proponía a Sahelanthropus tchadensis como un bípedo habitual) cuestiona tal caracterización, basándose en que determinados rasgos morfológicos, principalmente del fémur, no son exclusivos de seres bípedos [+].
  • La competencia fue fundamental para la especiación en nuestro camino evolutivo a lo largo de cinco millones de años. Mediante modelos bayesianos y análisis filogenéticos, un trabajo observa que, cuantas más especies de Homo había, mayor era la tasa de especiación. Esto apenas tiene parangón en la ciencia evolutiva dado que, en otros vertebrados, las tasas de especiación aumentan y luego se estancan a medida que los nichos ecológicos se llenan, momento en que las tasas de extinción comienzan a aumentar. Este argumento reforzaría que la competencia entre especies fue un factor evolutivo importante. En cambio, en los homininos, cuando esos nichos se fueron llenando, surgían aún más especies. También lo han observado en algunas especies de escarabajos isleños, cuyos ecosistemas han podido producir tendencias evolutivas inusuales. Los autores de este trabajo observan que, mientras que especies de homininos como Paranthropus probablemente evolucionaron fisiológicamente para ampliar su nicho, por ejemplo, adaptando los dientes para explotar nuevos tipos de alimentos, el motor del patrón tan diferente en nuestro género Homo podría haber sido la tecnología. Las herramientas de piedra, el fuego, o las técnicas de caza intensiva son comportamientos extremadamente flexibles que permiten generalizar y superar rápidamente los nichos ecológicos, que obligan a otras especies a competir por el hábitat y sus recursos,  sin necesidad de sobrevivir mucho tiempo para desarrollar nuevos planes corporales [+].
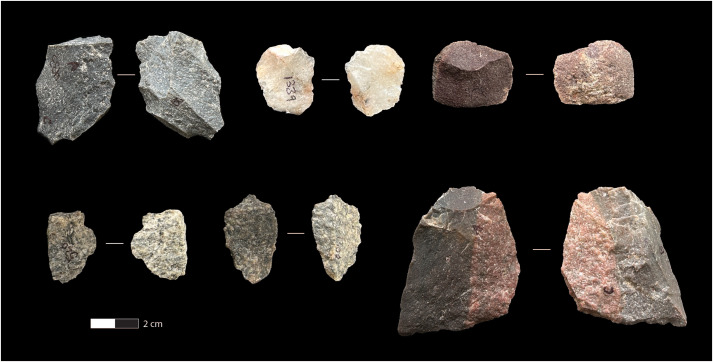
  • Siempre es bienvenido un nuevo yacimiento olduvayense. Se trata de Sare-Abururu, situado en la península de Homa, en el suroeste de Kenia, donde ya se conocen otros conjuntos olduvayenses procedentes de Nyayanga (Plioceno final, ~3-2,6 Ma) y Kanjera Sur (Pleistoceno inicial, ~2 Ma). Mientras que en estos últimos sitios los homininos obtenían diversas materias primas de alta calidad a más de 10 km de distancia, más tarde, en Sare-Abururu los homininos hace ~1,7 Ma dejaron 1754 artefactos fabricados a partir de guijarros de cuarzo, en una reducción simple aunque produciendo hábilmente bordes cortantes con pocos errores. Esto muestra que las estrategias oportunas no necesariamente indican una falta de habilidad o de materias primas adecuadas. Sare-Abururu se halla a unos 12 km al sureste de Kanjera South y 18 km al este de Nyayanga. Los patrones de adquisición y reducción de líticos en la península de Homa parecen reflejar variaciones en los contextos de recursos locales en lugar de cambios evolutivos a gran escala en la movilidad, el coste energético o la cognición de los fabricantes de herramientas [+].

Herramientas olduvayenses de Sare-Abururu (c. 1.7 Ma). Crédito: Finestone et al. (2024).

  • Un nuevo trabajo de modelización indica que el Olduvayense pudo haberse originado hace 3-3,2 Ma en algún momento cercano a la ocurrencia de los artefactos de Lomekwi 3 [+].
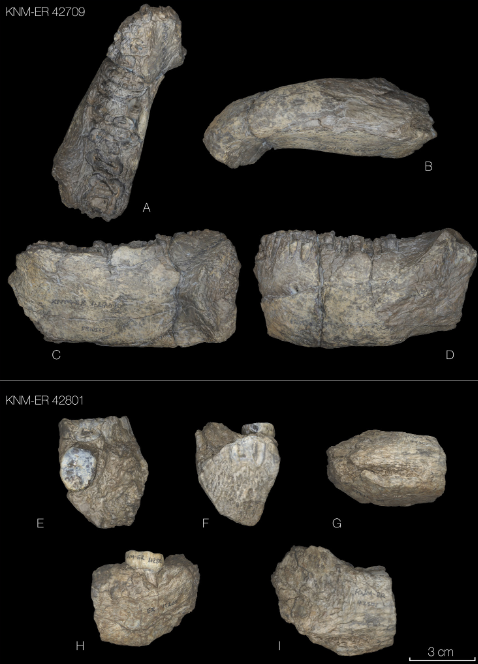
  • Dos nuevas mandíbulas de Paranthropus boisei aportan información muy interesante sobre esta especie [+]. Por un lado, KNM ER-42709 es una hemimandíbula sin dientes datada en 1,4 Ma, el parántropo más reciente conocido en Kenia hasta ahora, y uno de los más recientes del registro fósil junto con KGA 10-525 de Konso (1,42 Ma) y OH 80 (1,338 Ma). Por otro lado, KNM ER-42801 es un fragmento mandibular con un molar M3 datado en 1,55 Ma. Su entorno se caracterizaba por la abundancia de vegetales tipo C4, en un momento previo al incremento de la cobertura forestal (plantas C3) que tuvo lugar en la transición del Pleistoceno inferior al medio (1,3-0,7 Ma en el este de África). Estos dos especímenes enriquecen la variabilidad intraespecífica en las dimensiones dentales y del cuerpo mandibular.

Dos nuevos fósiles de Paranthropus boisei. Crédito: Lucía Nadal et al (2024)

  • Se han hallado marcas de corte sobre los restos esqueléticos del elefante FN3-5-MPS (Mammuthus meridionalis), que murió de forma natural, halllado en Fuente Nueva 3, Orce (Granada) entre 2001 y 2003. Fueron realizadas por homininos y por felinos, posiblemente tigres dientes de sable, hace 1,2 Ma (millones de años), según se ha observado en la tafonomía y la microestratigrafía. Se trata de la evidencia más antigua conocida de marcas de cortes en huesos de proboscidios en el oeste de Eurasia [+].
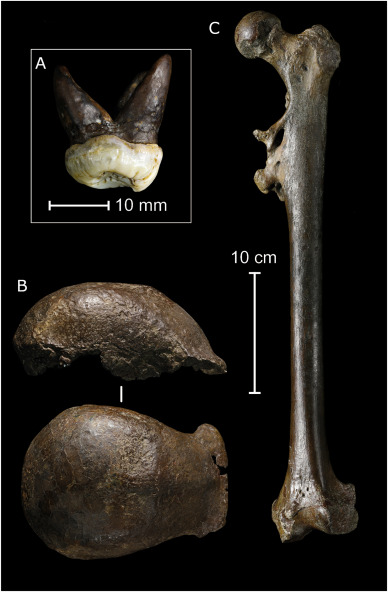
  • De los tres fósiles originales a partir de los que Dubois definió la especie Homo erectus, un nuevo estudio considera que sólo la calota Trinil 2 corresponde al holotipo [+].

Holotipo de Homo erectus publicado por Dubois (1893): A) molar Trinil 1, B) calota Trinil 2, C) fémur Trinil 3.

Sigue leyendo →