La coevolución entre la biología de los homininos y su cultura material

La coevolución entre la biología de los homininos y su cultura material

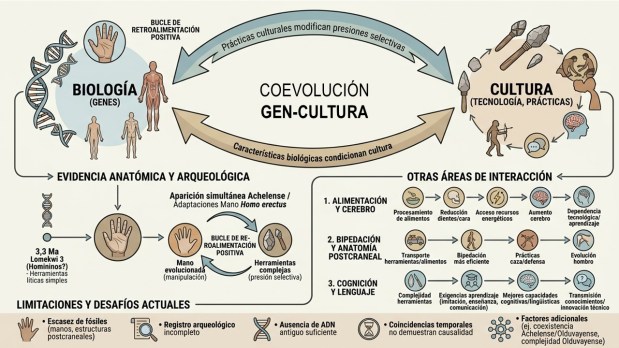
La evolución humana suele explicarse mediante la interacción entre cambios biológicos, como el aumento del cerebro o las modificaciones anatómicas de la mano, y avances culturales, como la fabricación de herramientas o el desarrollo de estrategias de subsistencia. Hasta qué punto influyeron unos en otros es objeto de frecuentes discusiones. En un nuevo trabajo, Alastair Key examina la coevolución entre la biología de los homininos y su cultura material desde los primeros indicios de tecnología lítica hasta antes de la aparición de la agricultura.

El trabajo pivota sobre la hipótesis denominada «coevolución gen-cultura», que conecta perspectivas de diversas disciplinas para interpretar las evidencias de relaciones recíprocas entre cultura y evolución biológica. El objetivo es explorar cómo determinadas prácticas culturales modifican las presiones selectivas que actúan sobre las poblaciones y, a su vez, cómo las características biológicas de estas condicionan el desarrollo y la transmisión de dichas prácticas. La evolución biológica no precede a otra cultural, sino que son procesos entrelazados que se retroalimentan durante generaciones.

Las primeras evidencias de herramientas líticas conocidas proceden de Lomekwi 3, en Kenia, de 3,3 Ma (millones de años). Se trata de artefactos toscos y simples que los homininos emplearían a modo de yunque y martillo. Aunque su datación a veces se cuestiona, no debe sorprendernos teniendo en cuenta que algunos primates actuales emplean piedras de manera similar. De hecho, Key plantea que el uso de herramientas pudo comenzar antes, mediante piedras naturalmente afiladas, fragmentos de hueso u otros objetos modificados. Cada vez está menos claro que fueran humanos los primeros fabricantes de herramientas.

La mano constituye uno de los ejemplos más claros de esta interacción gen-cultura. La proporción entre el pulgar y los dedos, la musculatura implicada en su flexión y la estabilidad de determinadas articulaciones son innovaciones morfológicas en la evolución hacia los primeros humanos, que favorecerían la talla y/o la manipulación de herramientas. A su vez, las exigencias mecánicas de fabricar y utilizar estos útiles habrían generado presiones selectivas favorables a determinadas características anatómicas. En particular, la aparición prácticamente simultánea de herramientas achelenses (los famosos bifaces de gran tamaño) y las adaptaciones de la mano de Homo erectus no parece una casualidad. Resulta difícil establecer qué cambio precedió al otro, lo cual, en mi opinión, viene a indicar una coevolución muy rápida por el beneficio adaptativo que suponía para la especie.

Nadie duda que la tecnología también transformó la alimentación. El procesamiento con herramientas de alimentos animales y vegetales reduce el esfuerzo necesario para masticar, lo que facilitó la continua reducción del tamaño de los dientes y de la robustez facial. El acceso a recursos de mayor calidad energética, facilitado por nuevas técnicas y estrategias de obtención de alimentos, favorecería el aumento del cerebro. Este, a su vez, habría permitido desarrollar comportamientos de subsistencia más complejos, reforzando la dependencia de la tecnología y del aprendizaje social.

Además, el transporte de herramientas, alimentos y otros objetos pudo contribuir a las presiones selectivas relacionadas con la bipedación, que en los primeros humanos era más eficiente que en homininos anteriores, según vamos conociendo a partir de estudios recientes sobre nuevos restos poscraneales. Algunas prácticas de caza, defensa y lanzamiento de artefactos pudieron intervenir en la evolución de la anatomía del hombro, aunque el registro fósil aún no permite verificar esta hipótesis.

Sigue leyendo →
Paleoantropología: novedades 4º trimestre 2025

Paleoantropología: novedades 4º trimestre 2025

Cerramos un gran año en hallazgos paleoantropológicos. En el último trimestre recopilé 46 publicaciones que ilustran la riqueza acumulada: los cuatro resúmenes trimestrales de 2025 suman 198 novedades. ¡Feliz 2026!

  • Combinando modelos tridimensionales de cráneos y métodos comparativos filogenéticos, Gómez-Robles y colaboradores han analizado la velocidad a la que distintas regiones del rostro y del neurocráneo cambiaron a lo largo del tiempo en distintos linajes de primates. El linaje humano duplicó la tasa esperada de cambio morfológico, y esto sucedió en la mayoría de los rasgos craneofaciales, separándose claramente de otros grandes simios y mostrando una selección direccional.
  • Al contrario que el desarrollo prolongado en el neurocráneo de Homo sapiens y Homo erectus, en Australopithecus afarensis y Paranthropus robustus los patrones de desarrollo son variables (Braga, Alemseged y Gilissen, 2025). De hecho, Au. afarensis exhibe un crecimiento endocraneal prolongado en comparación con P. robustus, un contraste incluso mayor que el de Pan paniscus y Pan troglodytes, lo que sugiere que el desarrollo endocraneal en Au. afarensis se asemeja más al de H. sapiens que al de P. robustus.
  • El análisis 3D morfométrico de las inserciones ligamentarias radiocarpianas (Casado et al., 2025) en 110 radios de homininos fósiles aporta información sobre sus patrones locomotores: Au. afarensis, Au. anamensis y Au. sediba combinaban locomoción bípeda y arbórea similar a chimpancés y orangutanes; P. robustus tenía una locomoción terrestre más similar a la de los gorilas; neandertales y H. sapiens basales muestran una anatomía similar a la de los humanos actuales, pero algo más de robustez orientada a cargas manuales (caza/herramientas).
  • El astrágalo ARA-VP-6/500-023 de Ardipithecus ramidus presenta similitudes con los astrágalos de chimpancés y gorilas, adaptados a la escalada vertical y al cuadrupedismo plantígrado terrestre. Además, el fósil tiene rasgos derivados consistentes con un mecanismo de impulso mejorado en el pie de Ar. ramidus. Prang y colaboradores proponen que el último ancestro común de humanos y chimpancés no sería un simio arborícola generalizado, sino un ancestro africano similar a un simio con un repertorio postural que incluía el cuadrupedismo plantígrado terrestre y la escalada vertical, del cual Ar. ramidus representaría un estadio intermedio, con modificaciones incipientes hacia una mayor eficiencia en bipedación. Por otro lado, la bipedación de Ardi sería distinta a la que emplean los grandes simios: su lateral del pie funcionaba mejor para el impulso lateral, dándole un empuje más eficiente al caminar.
Sigue leyendo →
El bifaz de West Tofts con una concha fósil centrada y alineada

El bifaz de West Tofts con una concha fósil centrada y alineada

¿Talló un neandertal este bifaz con una intención estética?

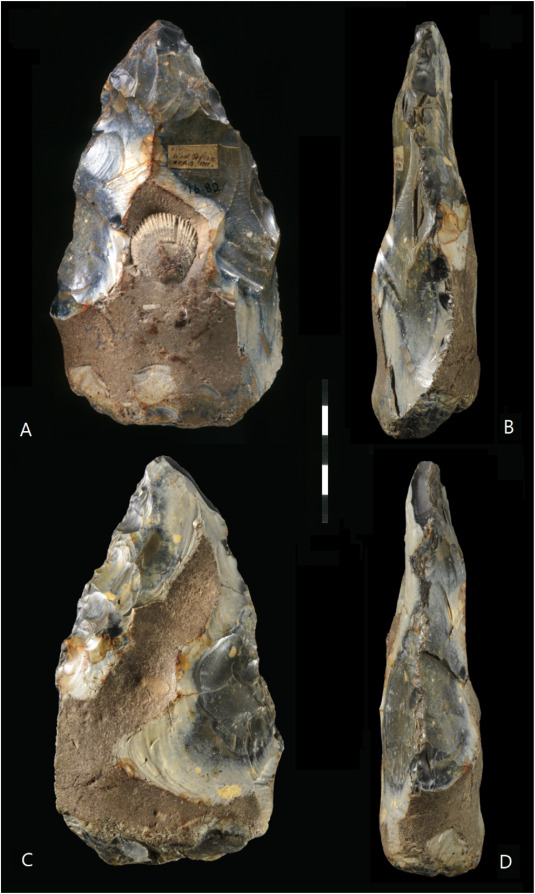
Bifaz de West Tofts. Crédito: University of Cambridge Museum of Archaeology and Anthropology.

Conozcamos el bifaz o hacha de mano achelense de West Tofts (West Tofts handaxe, WTH). Seguramente, los lectores lo reconocerán por multitud de fotografías. Se bautizó con el nombre de la aldea de Norfolk (Reino Unido) donde fue descubierto en 1911. Su popularidad se debe a la conservación de una concha de bivalvo fosilizada en el centro geométrico del objeto. Su antigüedad, estimada entre el MIS 11 (hace 374-424 ka, miles de años) y MIS 9 (300-337 ka), es coherente con otros aspectos observados en relación a la evolución cognitiva de los homininos en este periodo. En concreto, los que ocupaban aquella región en ese momento eran grupos de neandertales o preneandertales.

Desde su primera descripción en 1915, numerosos textos han reconocido esta herramienta como tallada cuidadosa y deliberadamente para retener, enmarcar centralmente y enfatizar el fósil, destacando con ello su valor estético y artístico. No debemos olvidar que esta interpretación estética puede estar influida por el criterio de los humanos actuales que observamos la pieza, aplicando principios artísticos y de diseño como la composición, el equilibrio, las proporciones y el color. Pero, hasta qué punto el criterio de aquellos humanos podría ser diferente? Este tipo de cuestionamientos surgen también al interpretar el valor artístico de otras creaciones desarrolladas por humanos prehistóricos, como los grandes paneles de arte rupestre.

El bifaz de West Tofts no es el único artefacto que conserva una concha fósil dentro de su corteza, como veremos más abajo, pero nadie niega el carácter extraordinario de este objeto. Esta singularidad se debe a una combinación de aspectos que incluye el gran tamaño de la concha, la alineación del eje largo de la concha con la superficie del sílex, la falta de daño al fósil y su ubicación casi perfectamente central. Además, el bifaz conserva parte de la corteza del sílex en la mitad inferior justo por debajo de la concha, lo que también podría expresar una posible intencionalidad. Todo esto habría implicado una enorme pericia técnica por parte del fabricante para tallar el nódulo de sílex desde dos o tres direcciones conservando perfectamente la concha, dejarla ubicada en el centro, extraer lascas grandes y delgadas mientras conservaba intencionadamente la corteza y, previamente, haber pensado y planificado este objeto tan peculiar, incluso desde la misma selección del nódulo de sílex.

Sigue leyendo →
Paleoantropología: novedades 3er trimestre 2024

Paleoantropología: novedades 3er trimestre 2024

¡Hemos cerrado un trimestre cargadito de novedades importantes! Aquí va mi resumen de las 39 seleccionadas:

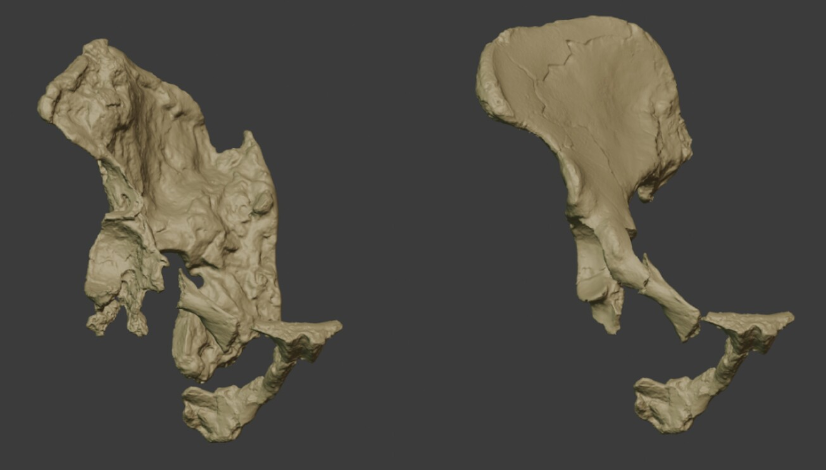
  • Una reevaluación de la morfología de los huesos coxales en el Australopithecus prometheus StW 573 de Sterkfontein Member 2 (3,67 millones de años, Ma), comparada con la variación de los huesos coxales en humanos y simios actuales, así como en otros homininos del Plioceno y del Pleistoceno, sugiere distintas morfologías y múltiples formas de bipedalismo entre los primeros homininos, y un «refuerzo firme» de la hipótesis de una segunda especie de Australopithecus en Sterkfontein [+].

Modelos digitales de StW573 y StW 431. Crédito: R. Crompton et al. (2024).

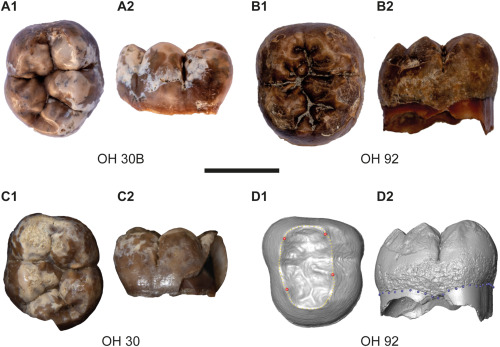
  • Bienvenidos dos nuevos dientes de Paranthropus en Olduvai: los molares OH 92 y OH 30B. Este último procede del sitio Maiko Gully en Frida Leakey Korongo (FLK) y, por su morfología, se ha podido determinar que pertenece al individuo OH 30 hallado en 1969, datado en 1,8-1,7 Ma. En cuanto al OH 92, se halló en el área Bell’s Korongo (BK), pero no se ha podido identificar la capa sedimentaria de donde procede [+].

Dientes analizados en A. Riga et al. (2024)

  • La comparación entre el conjunto achelense de MW5 (Melka Wakena, Etiopía), de 1,37-1,34 Ma, con otros conjuntos anteriores de 1,6 y 1,7 Ma, muestra una mayor planificación previa para la adquisición de materia prima y una mayor inversión en el control de las propiedades morfométricas de los artefactos, que marcan el cambio hacia una tecnología basada en lascas grandes (Large Cutting Tools, LCT) [+].
  • Se ha revisado la datación de los tres yacimientos de Orce (sur de España) que cuentan con algunas de las evidencias más antiguas de homininos en Europa occidental: Venta Micena (1,32 Ma), Barranco León (1,28 Ma) y Fuente Nueva 3 (1,23 Ma) [+].
  • Y seguimos en Orce. Aunque se publicó al final del anterior trimestre, no quiero dejar de mencionar el estudio sobre la interpretación de los restos de megafauna hallados en Fuente Nueva 3. La capa 5 del nivel superior tiene suelos de arenas finas y blandas con presencia de muchos restos de megahervíboros, como Mammuthus meridionalis, que serían consumidos por carroñeros como hienas gigantes (Pachycrocuta brevirostris). En las capas 2-3 del nivel inferior, formadas por limos y arcillas, se han hallado numerosos manuports, piedras no modificadas utilizadas por los homininos como herramientas de percusión para fracturar huesos y acceder al tuétano [+].
  • Barranc de la Boella puede representar una dispersión temprana del Achelense desde África hace unos 1,4 Ma, potencialmente conectada a conjuntos como ‘Ubeidiya. Este trabajo subraya la complejidad de la tecnología lítica durante la aparición de nuevos comportamientos en los conjuntos europeos de Modo 2 inicial, que se extienden más allá de la mera aparición de LCTs [+].
  • La caza humana fue un factor clave en la pérdida de docenas de especies de proboscídeos: la tasa de extinción de estos animales se quintuplicó cuando aparecieron los primeros humanos hace unos 1,8 Ma, y aumentó aún más cuando aparecieron los humanos modernos, según el análisis de miles de fósiles asistido por IA [+]. Hoy en día, solo quedan tres especies de este grupo.
  • La concentración de yacimientos en puntos calientes como el Sistema del Rift de África oriental es un factor a tener en cuenta para evitar el sesgo en nuestra comprensión de la evolución humana. Es una discusión que surge de haber estudiado los mamíferos modernos de cuerpo mediano y grande especialistas del Rift, entorno que representa sólo el 1,6% del rango total de los mamíferos africanos. En particular, los cráneos de primates modernos del Rift suponen menos del 50% de la variación total entre todos los cráneos de primates africanos [+].
  • El genoma humano de alta cobertura más antiguo hasta la fecha es el de Denisova 25, un denisovano de hace 200 miles de años (ka), 80 ka más antiguo que el genoma del neandertal de la cueva siberiana de Chagyrskaya. Se trata de un individuo masculino que proviene de una población distinta de denisovanos tempranos que se cruzaron varias veces con un grupo de neandertales cuya población no había sido detectada antes en el ADN. De ésta heredó el 5% de su ADN. Es el segundo genoma denisovano secuenciado, tras el de la falange distal de Denisova 3 (60-80 ka). Todavía no publicado, este trabajo se anunció en la reunión anual de la Society for Molecular Biology and Evolution [+].
  • Utilizando genomas de 2000 humanos modernos, así como de tres neandertales y un denisovano, se ha conseguido mapear el flujo genético recurrente entre los tres grupos humanos durante los últimos 200 ka: una primera oleada de contactos hace unos 200-250 ka, otra hace unos 100-120 ka y la mayor hace unos 50-60 ka [+].
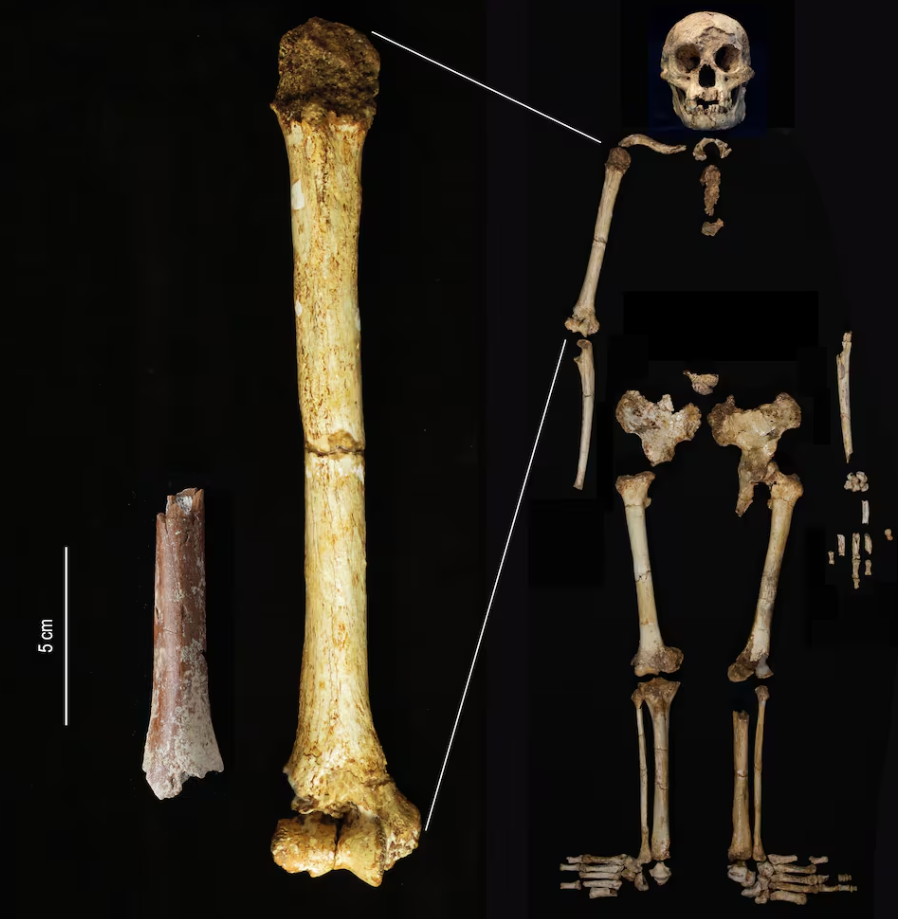
  • Un fragmento de húmero de 700 ka hallado en Mata Menge (Indonesia) procede de un individuo adulto que mediría unos 100 cm, es decir, unos 6 cm menos que la estatura estimada según la longitud del fémur para el esqueleto de Homo floresiensis de Liang Bua, de 60 ka. De hecho, es el húmero más corto del registro fósil hominino [+]. Recordemos que los molares de Mata Menge también son más pequeños que los conocidos de cualquier otro hominino.

Fragmento de húmero de Mata Menge (izda) a la misma escala que el húmero de Homo floresiensis de Liang Bua (centro y derecha). Crédito: Yousuke Kaifu.

Sigue leyendo →

Más o menos claridad en los orígenes de Homo: el niño erectus de Melka Kunture y la primera tecnología achelense

Más o menos claridad en los orígenes de Homo: el niño erectus de Melka Kunture y la primera tecnología achelense

Hace tiempo que descartamos una supuesta linealidad evolutiva entre Homo habilis y Homo erectus en los comienzos de «lo humano». Por una parte, tenemos habilinos cada vez más recientes, como el maxilar KNM-ER 42703, de tan solo 1,44 Ma (millones de años) y, por otra parte, tenemos erectinos cada vez más antiguos, como el cráneo parcial DNH 134 de Drimolen, Sudáfrica (1,95-2,04 Ma), y el fragmento de occipital KNM-ER 2598 (1,9 Ma). Donde antes los textos ilustraban una posible evolución anagenética desde unos seres más pequeños y primitivos hasta otros con un cerebro y un cuerpo más grandes y unas piernas más largas, ahora vamos intuyendo un cada vez más probable ancestro común de ambos linajes, todavía por conocer, que dio lugar a la gran diversidad de formas africanas cuya interpretación nos trae de cabeza. De hecho, este antepasado podría haber tenido más rasgos habilinos que erectinos, si atendemos a los pequeños cráneos de Dmanisi (Georgia), de 1,8 Ma. En este otro artículo escribí sobre ello en detalle.

Esta semana hemos conocido a un fósil que se une a la lista de los erectinos más antiguos. La mandíbula infantil Garba IVE (apodada simplemente Garba) se halló en 1982 en el nivel E del yacimiento Garba IV, uno de los más antiguos del complejo de sitios arqueopaleontológicos de Melka Kunture (Etiopía), que abarca tecnologías olduvayense, achelense y MSA. Esta mandíbula de un niño de 2-3 años se ha reevaluado con la ayuda de escáner MicroCT para analizar en el interior del hueso los dientes definitivos no erupcionados, ya que en el exterior sólo se conservan dos dientes deciduos, poco representativos para la identificación a nivel de especie. La anatomía de estos dientes definitivos confirman la adscripción de Garba al taxón de Homo erectus, que ya se intuía por la morfología que la relacionaba con especímenes subadultos como KNM-ER 820 y KNM-ER 1477. De acuerdo a los últimos trabajos de datación del sitio, Garba se convierte en el representante más antiguo de esta especie, con 2,06 Ma de antigüedad.

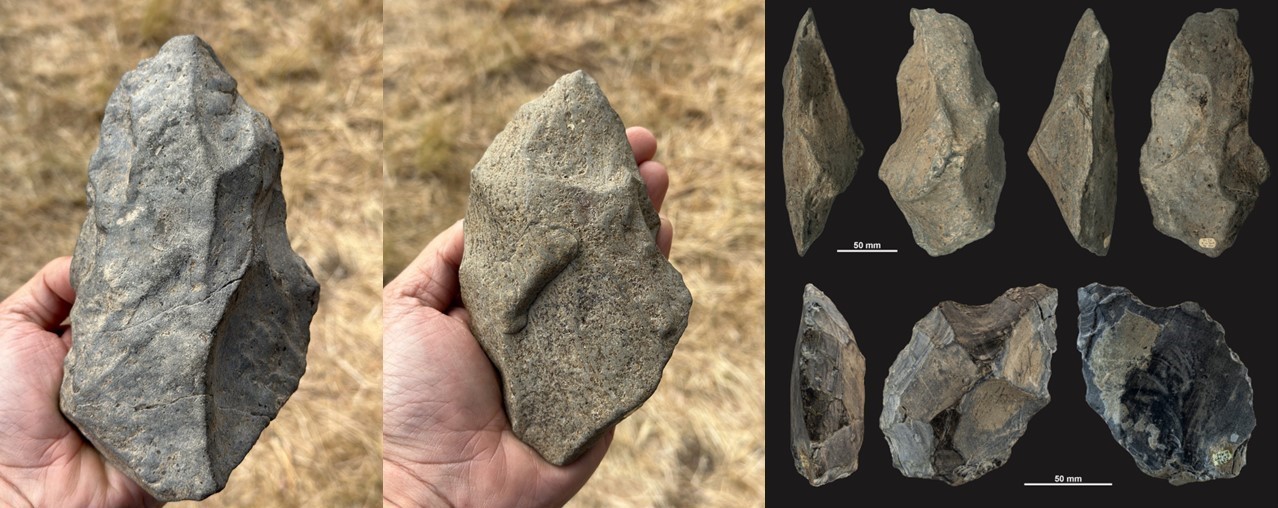
Adicionalmente, el trabajo ha permitido identificar artefactos de talla achelense en el nivel D, fechado en 1,95 Ma, adelantando en ~0,2 Ma la primera presencia conocida de esta tecnología (por ejemplo, la del FLK West, de 1,7 Ma). Por su parte, la tecnología presente en los niveles inferiores de Garba, de 2 Ma, es olduvayense.

Herramientas achelenses del Garba IV (1,95 Ma)

Herramientas achelenses del Garba IV (1,95 Ma). Mussi et al (2023). Cortesía de Eduardo Méndez Quintas.

Sigue leyendo →