Cerramos el tercer trimestre del año con la reseña de 34 nuevos trabajos que siguen completando, y en algunos casos cuestionando, nuestra visión de la evolución humana.
- A partir de moldes cerebrales virtuales de primates actuales y fósiles del Eoceno al Mioceno, Kay y colaboradores (2026) reconstruyen la evolución de la neocorteza y cuestionan que su expansión estuviera impulsada principalmente por un crecimiento desproporcionado del lóbulo frontal. El tamaño de la neocorteza aumentó en paralelo en distintos linajes de primates, con incrementos rápidos en tarsios y antropoides, pero el lóbulo frontal evolucionó gradualmente siguiendo un patrón común de escalamiento con el tamaño cerebral. En cambio, las regiones no frontales de la neocorteza aumentaron rápidamente en relación con el tamaño del cerebro en los haplorrinos. Esta expansión coincidió con un incremento del área del foramen óptico, indicador del flujo de información transportada por el nervio óptico, lo que vincula la intensificación del procesamiento visual con la evolución modular y la expansión de la neocorteza de los primates.
- Una revisión de Brand-Miller y colaboradores propone que los azúcares de frutas y otros alimentos dulces aportaron glucosa a los primeros homininos, antes de que el procesamiento y la cocción facilitaran el aprovechamiento del almidón. Su modelo destaca la demanda de glucosa de un cerebro cada vez mayor y de los tejidos reproductivos, especialmente durante el embarazo y la lactancia. La hipótesis amplía el papel atribuido a los carbohidratos junto al de los alimentos animales.
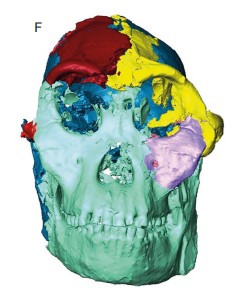
- La reconstrucción virtual del esqueleto facial de StW 573, apodado Little Foot (Beaudet et al., 2026) en comparación con Sts 5 y A.L. 444-2 (Australopithecus) y con grandes simios modernos, sitúa el tamaño de la cara entre el de un gorila y el de un orangután, mientras que la forma se parecía más a la de los orangutanes y los bonobos. El tamaño, forma y dimensiones de las cuencas de sus ojos son más similares a los Australopithecus de África oriental.
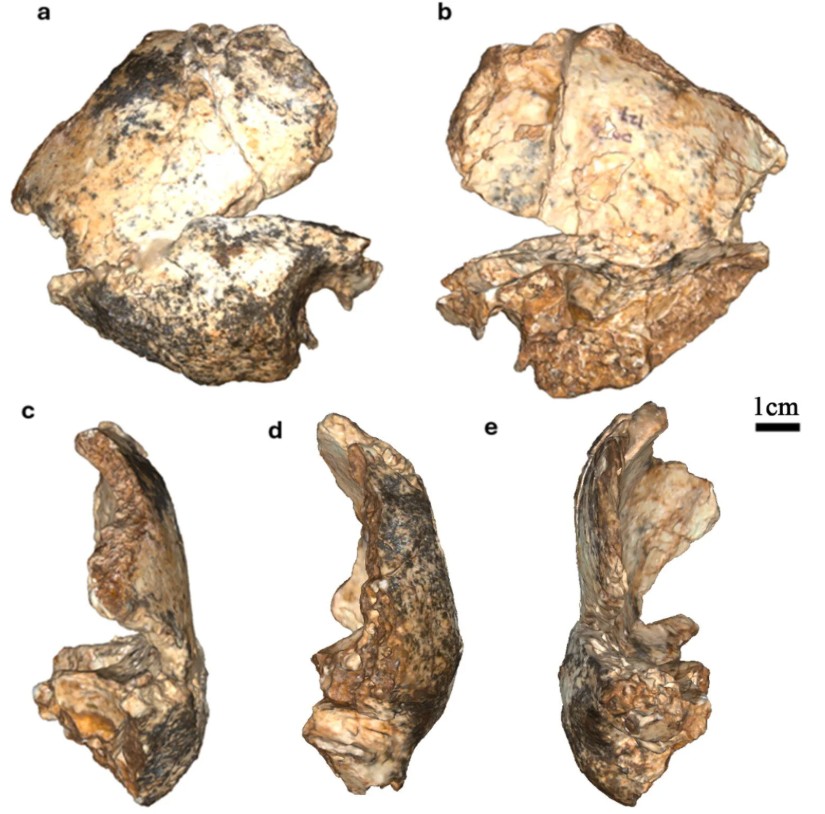
- Se han publicado 18 fósiles de homininos de Drimolen no descritos previamente (Martin et al., 2026), de los que uno se asigna a Homo erectus, 14 a Paranthropus robustus y tres sin asignación específica. El estudio refuerza la idea de que la población de P. robustus de Drimolen es morfológicamente distinta y proporciona evidencia adicional de la presencia de H. erectus en Sudáfrica hace 2,04-1,95 Ma.
- El examen del hueso alveolar en 71 mandíbulas de distintas especies de homininos entre 5,3 Ma y 2,6 Ma (Ripamonti et al., 2026) pone de manifiesto una frecuencia mucho mayor de destrucción ósea por periodontitis en el género Homo. Los autores relacionan esta diferencia con la progresiva reducción de la mandíbula y del aparato masticador, que habría liberado espacio en la región craneal. En paralelo, mutaciones genéticas habrían conducido a reducir el tamaño de las coronas dentales en los primeros Homo. La periodontitis sería así una consecuencia indirecta de un conjunto más amplio de transformaciones anatómicas, genéticas y funcionales en las primeras especies humanas.
- Comparando la resistencia ósea del fémur con la del húmero en distintos especímenes fósiles y restos de humanos actuales, Carlsson y colaboradores muestran una fase prolongada en Australopithecus en la que la bipedación terrestre convivió con una utilización todavía habitual de los árboles, seguida por una especialización mucho mayor hacia la vida terrestre en Homo.
- Hubbe y Harvati (2026) cuestionan que el aumento progresivo del cerebro y la reducción de la robustez facial en el género Homo fueran impulsados principalmente por una selección natural direccional y gradual. A partir del análisis morfométrico 3D de 63 cráneos fósiles y 24 de H. sapiens recientes, agrupados en ocho conjuntos desde los primeros Homo hasta neandertales y humanos modernos, compararon la evolución del neurocráneo y la cara con las predicciones de seis modelos evolutivos. Los resultados se ajustan mejor a procesos de evolución neutral y, especialmente, de estasis y selección estabilizadora, que a una selección continuada hacia cerebros mayores y caras más reducidas. Los autores proponen así que las restricciones evolutivas, las condiciones ambientales y posiblemente comportamientos culturales que amortiguaron determinadas presiones selectivas tuvieron un papel más importante de lo asumido en la evolución de la morfología craneal de Homo.
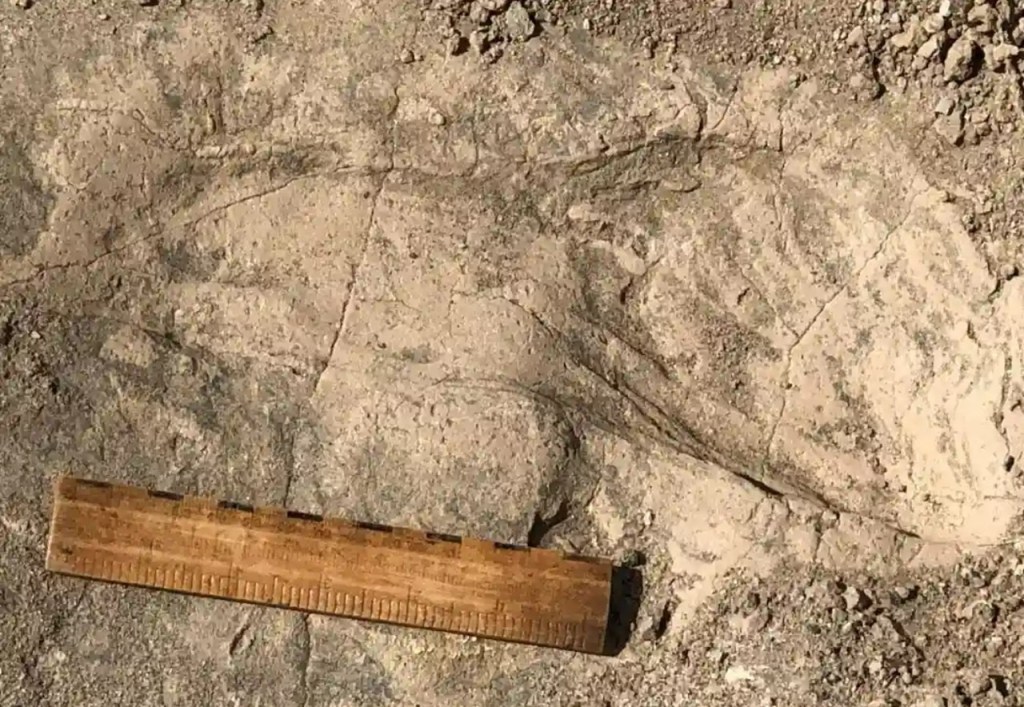
- En GaJi10, en la orilla oriental del lago Turkana (Kenia), se han documentado 21 huellas de homininos dejadas sobre una misma superficie fangosa hace aproximadamente 1,43 Ma y atribuidas a ocho individuos (Hatala et al., 2026). Su morfología coincide con la de otras huellas atribuidas a Paranthropus boisei y refleja un pie y una locomoción diferentes de los de Homo, más próximos en algunos aspectos a los de Australopithecus. Suponiendo proporciones corporales semejantes a las de este último género, los individuos medibles alcanzarían entre 130,6 y 180,9 cm de estatura y entre 39,8 y 74,6 kg de masa corporal. Cuatro superarían la mayor estatura estimada hasta ahora a partir del esqueleto de P. boisei y dos, la mayor masa conocida para esta especie. Will et al. (2017) estimaban para P. boisei un promedio de 131,1 cm y un máximo conocido hasta entonces de 161,3 cm. Las huellas parecen corresponder mayoritariamente a machos adultos que se desplazaban juntos, sin indicios de hembras ni individuos infantiles, una composición que los autores relacionan con posibles formas complejas de organización social. La misma superficie conserva además 146 huellas de otros animales: 67 de hipopótamo, 64 de bóvido, 13 de ave y 2 de équido..