
Cerramos el tercer trimestre del año con la reseña de 34 nuevos trabajos que siguen completando, y en algunos casos cuestionando, nuestra visión de la evolución humana.
- A partir de moldes cerebrales virtuales de primates actuales y fósiles del Eoceno al Mioceno, Kay y colaboradores (2026) reconstruyen la evolución de la neocorteza y cuestionan que su expansión estuviera impulsada principalmente por un crecimiento desproporcionado del lóbulo frontal. El tamaño de la neocorteza aumentó en paralelo en distintos linajes de primates, con incrementos rápidos en tarsios y antropoides, pero el lóbulo frontal evolucionó gradualmente siguiendo un patrón común de escalamiento con el tamaño cerebral. En cambio, las regiones no frontales de la neocorteza aumentaron rápidamente en relación con el tamaño del cerebro en los haplorrinos. Esta expansión coincidió con un incremento del área del foramen óptico, indicador del flujo de información transportada por el nervio óptico, lo que vincula la intensificación del procesamiento visual con la evolución modular y la expansión de la neocorteza de los primates.
- Una revisión de Brand-Miller y colaboradores propone que los azúcares de frutas y otros alimentos dulces aportaron glucosa a los primeros homininos, antes de que el procesamiento y la cocción facilitaran el aprovechamiento del almidón. Su modelo destaca la demanda de glucosa de un cerebro cada vez mayor y de los tejidos reproductivos, especialmente durante el embarazo y la lactancia. La hipótesis amplía el papel atribuido a los carbohidratos junto al de los alimentos animales.
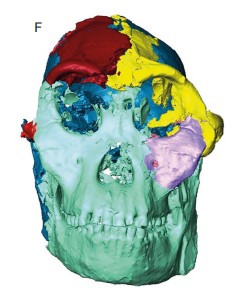
- La reconstrucción virtual del esqueleto facial de StW 573, apodado Little Foot (Beaudet et al., 2026) en comparación con Sts 5 y A.L. 444-2 (Australopithecus) y con grandes simios modernos, sitúa el tamaño de la cara entre el de un gorila y el de un orangután, mientras que la forma se parecía más a la de los orangutanes y los bonobos. El tamaño, forma y dimensiones de las cuencas de sus ojos son más similares a los Australopithecus de África oriental.
- Se han publicado 18 fósiles de homininos de Drimolen no descritos previamente (Martin et al., 2026), de los que uno se asigna a Homo erectus, 14 a Paranthropus robustus y tres sin asignación específica. El estudio refuerza la idea de que la población de P. robustus de Drimolen es morfológicamente distinta y proporciona evidencia adicional de la presencia de H. erectus en Sudáfrica hace 2,04-1,95 Ma.
- El examen del hueso alveolar en 71 mandíbulas de distintas especies de homininos entre 5,3 Ma y 2,6 Ma (Ripamonti et al., 2026) pone de manifiesto una frecuencia mucho mayor de destrucción ósea por periodontitis en el género Homo. Los autores relacionan esta diferencia con la progresiva reducción de la mandíbula y del aparato masticador, que habría liberado espacio en la región craneal. En paralelo, mutaciones genéticas habrían conducido a reducir el tamaño de las coronas dentales en los primeros Homo. La periodontitis sería así una consecuencia indirecta de un conjunto más amplio de transformaciones anatómicas, genéticas y funcionales en las primeras especies humanas.
- Comparando la resistencia ósea del fémur con la del húmero en distintos especímenes fósiles y restos de humanos actuales, Carlsson y colaboradores muestran una fase prolongada en Australopithecus en la que la bipedación terrestre convivió con una utilización todavía habitual de los árboles, seguida por una especialización mucho mayor hacia la vida terrestre en Homo.
- Hubbe y Harvati (2026) cuestionan que el aumento progresivo del cerebro y la reducción de la robustez facial en el género Homo fueran impulsados principalmente por una selección natural direccional y gradual. A partir del análisis morfométrico 3D de 63 cráneos fósiles y 24 de H. sapiens recientes, agrupados en ocho conjuntos desde los primeros Homo hasta neandertales y humanos modernos, compararon la evolución del neurocráneo y la cara con las predicciones de seis modelos evolutivos. Los resultados se ajustan mejor a procesos de evolución neutral y, especialmente, de estasis y selección estabilizadora, que a una selección continuada hacia cerebros mayores y caras más reducidas. Los autores proponen así que las restricciones evolutivas, las condiciones ambientales y posiblemente comportamientos culturales que amortiguaron determinadas presiones selectivas tuvieron un papel más importante de lo asumido en la evolución de la morfología craneal de Homo.
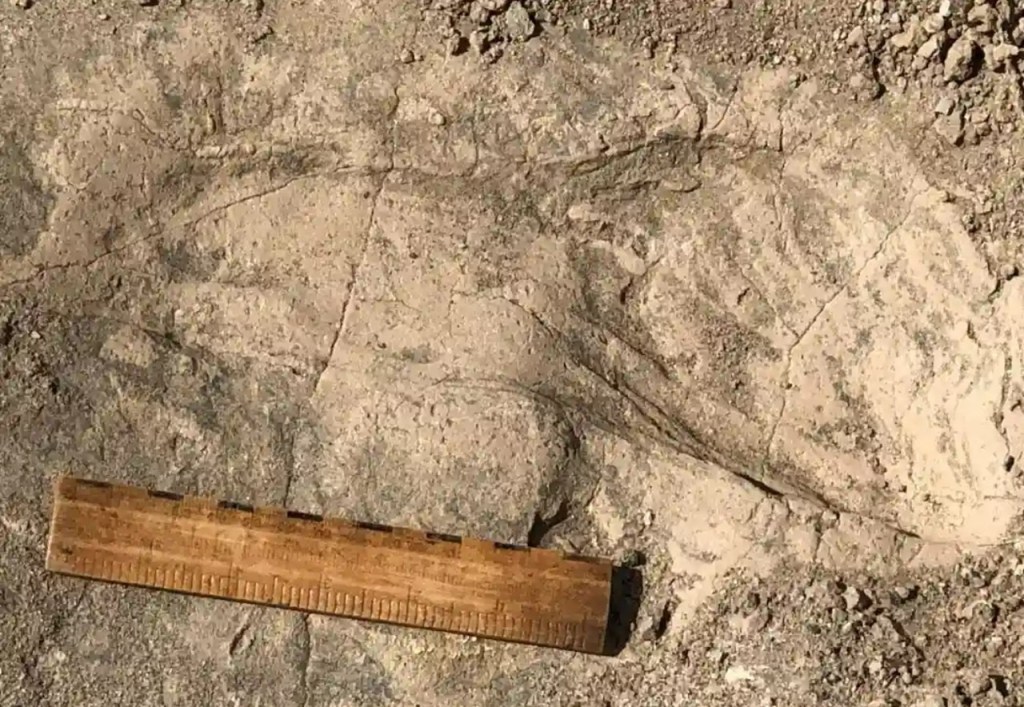
- En GaJi10, en la orilla oriental del lago Turkana (Kenia), se han documentado 21 huellas de homininos dejadas sobre una misma superficie fangosa hace aproximadamente 1,43 Ma y atribuidas a ocho individuos (Hatala et al., 2026). Su morfología coincide con la de otras huellas atribuidas a Paranthropus boisei y refleja un pie y una locomoción diferentes de los de Homo, más próximos en algunos aspectos a los de Australopithecus. Suponiendo proporciones corporales semejantes a las de este último género, los individuos medibles alcanzarían entre 130,6 y 180,9 cm de estatura y entre 39,8 y 74,6 kg de masa corporal. Cuatro superarían la mayor estatura estimada hasta ahora a partir del esqueleto de P. boisei y dos, la mayor masa conocida para esta especie. Will et al. (2017) estimaban para P. boisei un promedio de 131,1 cm y un máximo conocido hasta entonces de 161,3 cm. Las huellas parecen corresponder mayoritariamente a machos adultos que se desplazaban juntos, sin indicios de hembras ni individuos infantiles, una composición que los autores relacionan con posibles formas complejas de organización social. La misma superficie conserva además 146 huellas de otros animales: 67 de hipopótamo, 64 de bóvido, 13 de ave y 2 de équido..
- Se ha estimado en aproximadamente 11 individuos por 100 km² la densidad de población de homininos del paleoecosistema TE9c de la Sima del Elefante (Atapuerca, España), del Pleistoceno inferior. Esta densidad potencial habría estado limitada por la competencia con otros consumidores de carne, en particular con grandes carnívoros (Campo-Gómez et al., 2026).
- El análisis mediante microtomografía de tres fragmentos de parietal de individuos adultos de Homo antecessor de Gran Dolina (Atapuerca) proporciona los primeros datos cuantitativos sobre el grosor y la estructura interna de su bóveda craneal (Gallareto-Sande et al., 2026). Su grosor total se encuentra dentro del rango de neandertales y humanos modernos y es inferior al de Homo erectus y otros humanos del Pleistoceno inferior. La díploe, la capa esponjosa intermedia, representa entre el 41% y el 50% del grosor, una proporción semejante a la de neandertales y humanos modernos, aunque H. antecessor presenta una tabla o lámina externa de la calvaria relativamente más delgada y una interna más gruesa. Estos resultados refuerzan la caracterización de esta especie como un mosaico de rasgos ancestrales y derivados.
- Kaifu et al. (2026) proponen que la plagiocefalia deformacional severa, una deformación craneal adquirida tras el nacimiento por la combinación de huesos craneales inmaduros, musculatura cervical poco desarrollada y el apoyo prolongado de la cabeza sobre una superficie estable, puede utilizarse como un indicador directo de una infancia desvalida en algunos homininos semejante a la de los humanos modernos. Analizaron tomografías computarizadas de 123 bebés japoneses sanos de entre 27 y 545 días de edad, 385 cráneos humanos históricos de Japón, 996 cráneos de grandes simios (chimpancés, bonobos, gorilas y orangutanes) y seis cráneos fósiles (cinco de H. erectus y uno de Homo floresiensis). Los grandes simios mostraban una variabilidad craneal mucho menor que la observada en los humanos modernos. Tres de los fósiles (LB1, Ngawi 1 y Ngandong 12) presentaban deformaciones que excedían el rango observado en los simios y que no pueden explicarse por procesos tafonómicos. A partir de ello, los autores concluyen que, al menos en esos individuos, existía una infancia desvalida, necesidad de cuidados parentales prolongados y, probablemente, formas de cooperación social en la crianza.
- Un estudio (Veatch et al., 2026) de los restos de stegodon de Liang Bua sugiere que H. floresiensis aprovechó de forma oportunista partes de carcasas a las que antes habrían accedido los dragones de Komodo. Las marcas óseas no aportan pruebas claras de caza activa de stegodones, y los restos analizados tampoco respaldan un uso habitual del fuego. Sin embargo, la evidencia de Flores aún es escasa: el estudio no permite afirmar que fuera exclusivamente carroñero ni descartar otros comportamientos de subsistencia.
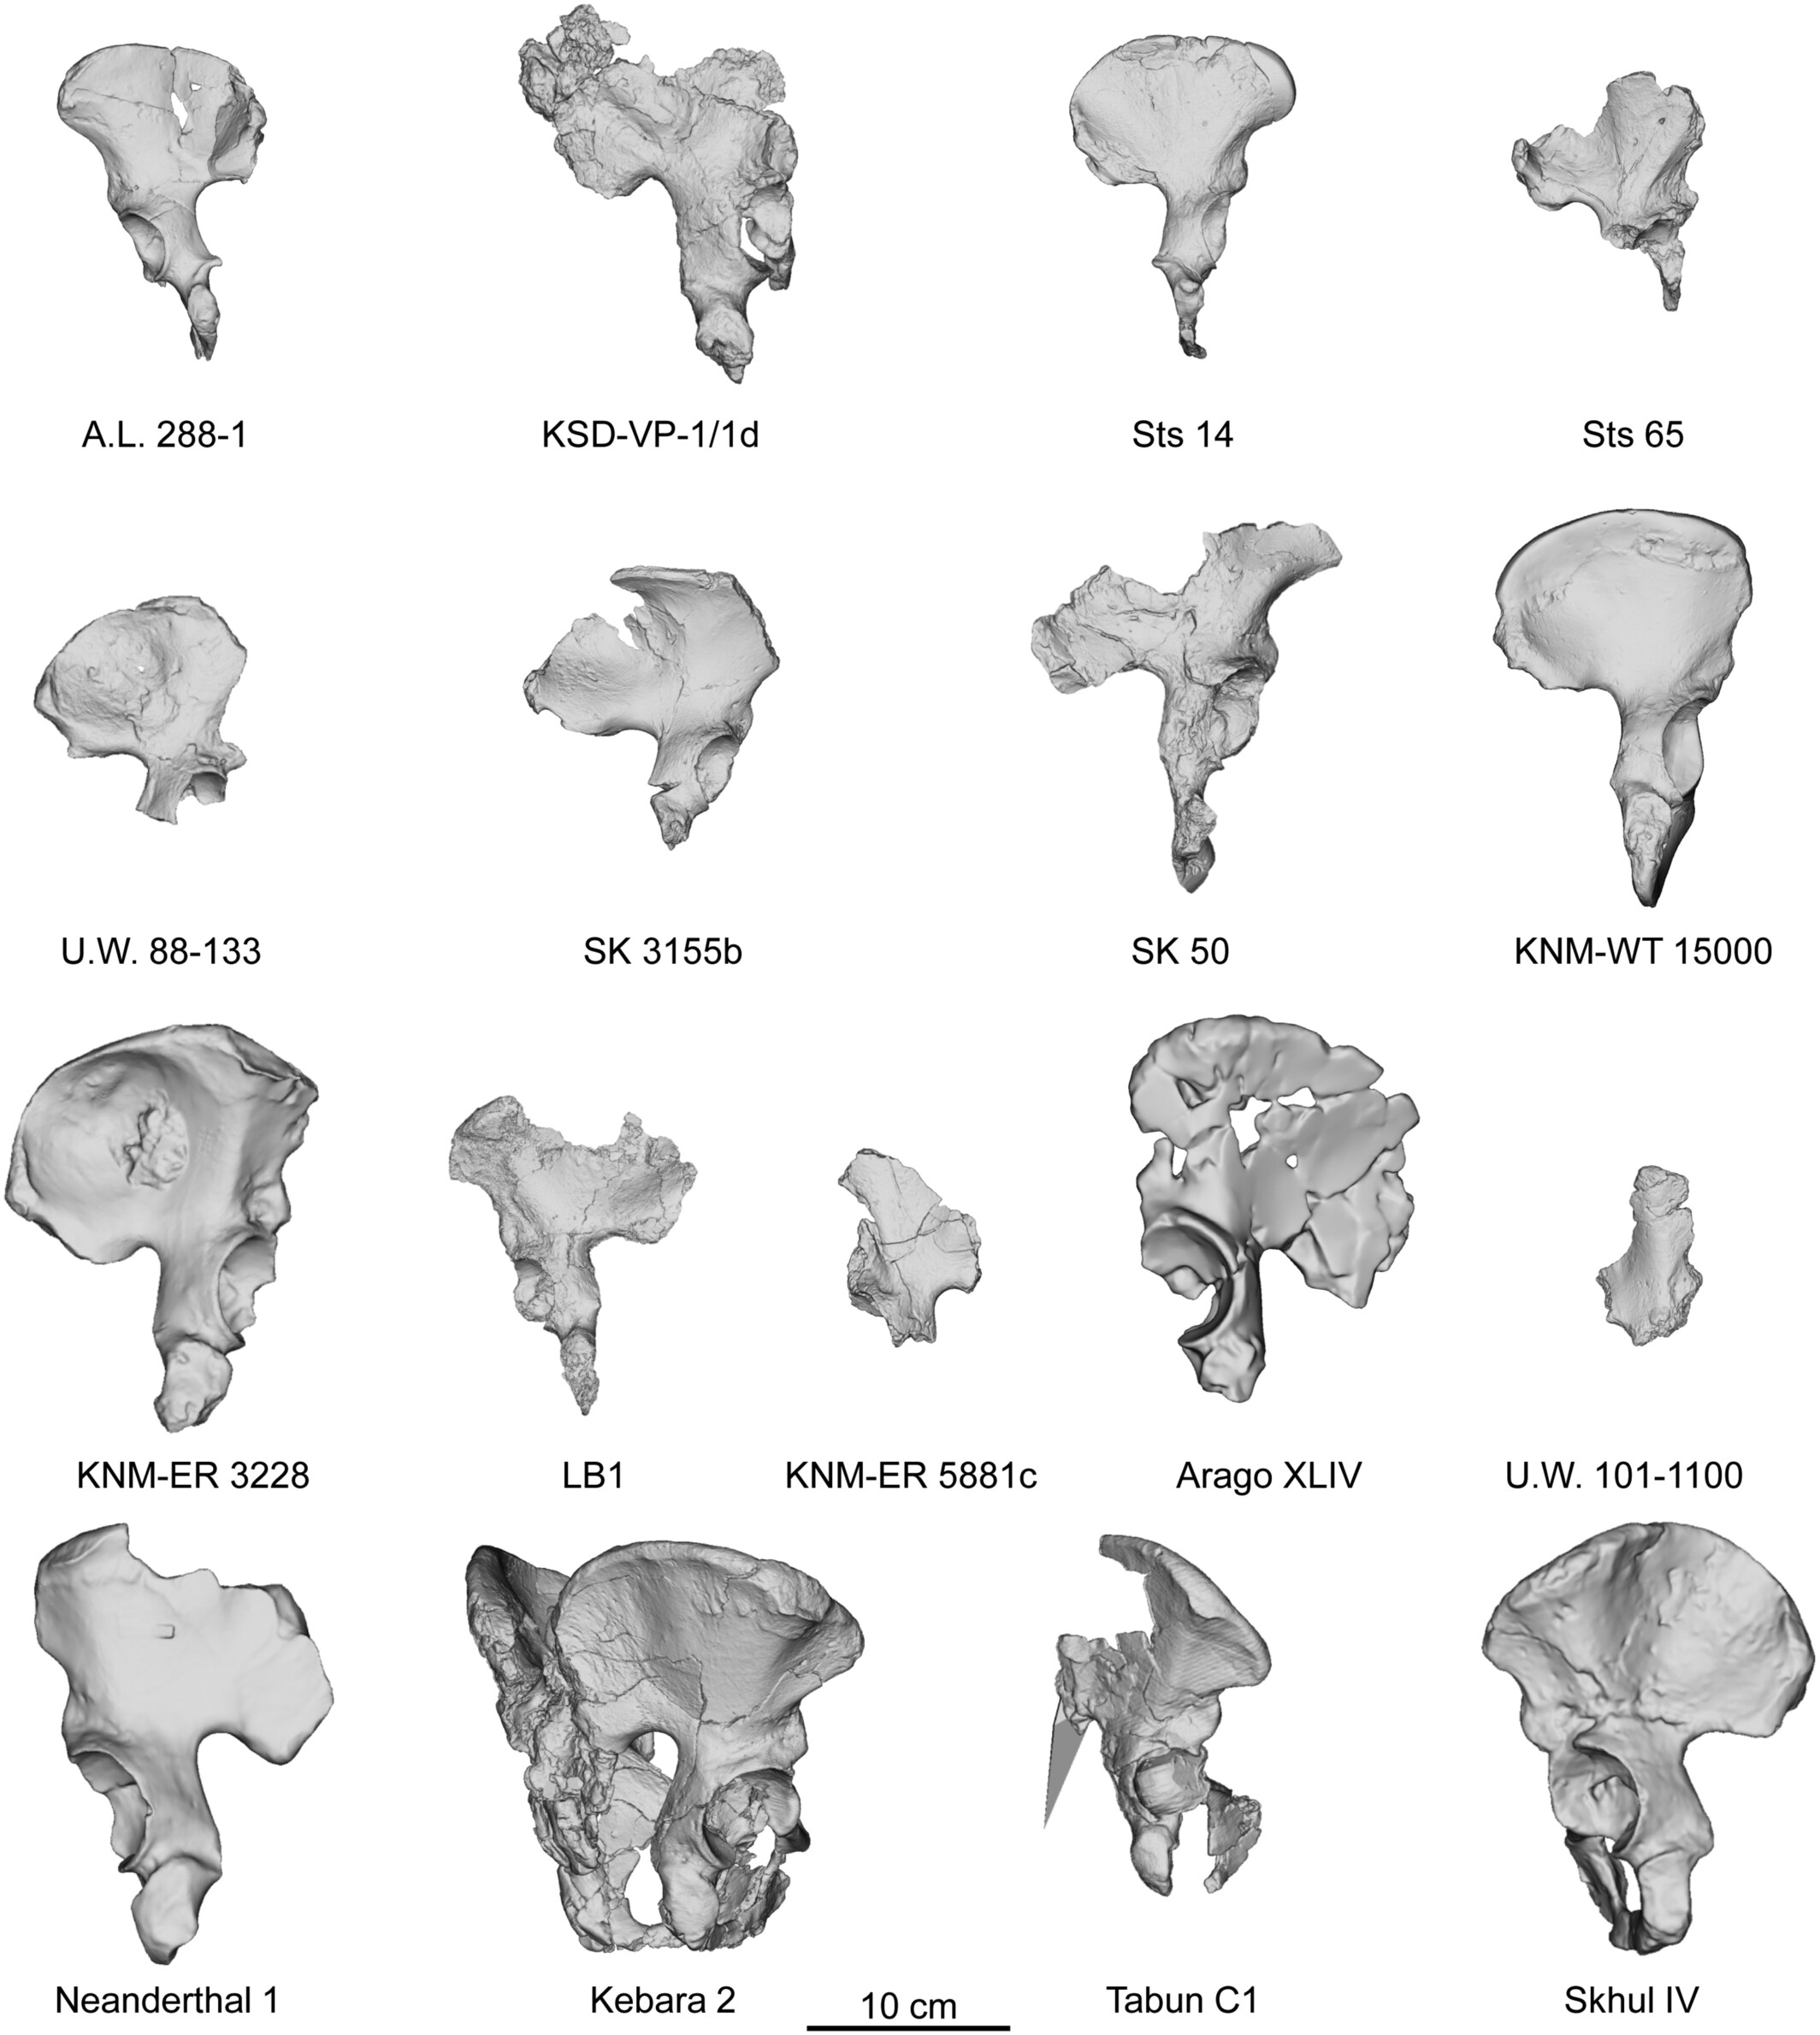
- Y terminando con H. floresiensis, un estudio de la pelvis de LB 1 revela que sus rasgos morfológicos se encuentran mayoritariamente dentro del rango de variación del género Homo y muestran más afinidad con H. erectus que con Australopithecus. Sin embargo, no era un bípedo particularmente rápido ni recorría largas distancias, y su pelvis era compatible con un cierto grado de actividad arbórea residual (Lewton et al., 2026).
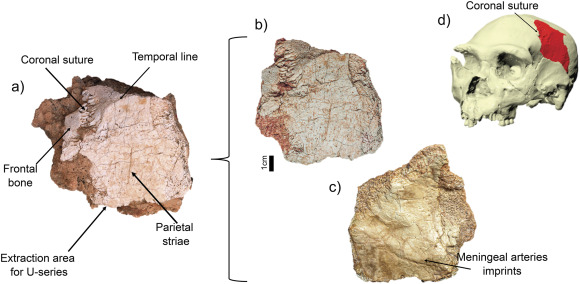
- El yacimiento de Ruidera, en el sur de la península ibérica, ha proporcionado un fragmento de parietal humano (RVH-1) atribuible a la segunda mitad del Pleistoceno medio (García-Martínez et al., 2026). La brecha que lo contenía se ha datado tentativamente entre unos 224 ka y 160 ka, aunque no puede descartarse una edad mayor. Su grosor y ángulo parietal difieren de los de la muestra de la Sima de los Huesos, pero entran en la variabilidad conocida de otros fósiles del Pleistoceno medio. Por tratarse de un hueso aislado, no permite una atribución taxonómica firme; sí amplía un registro humano europeo todavía fragmentario.
- El análisis espacial de los patrones de distribución y orientación en el yacimiento de Torralba (Soria, España) sobre los más de 4000 registros (huesos y artefactos líticos) del Pleistoceno medio recuperados en los años sesenta, indica que los procesos geológicos desempeñaron un papel clave en la formación del yacimiento y no la actividad humana, que parece meramente oportunista (Sánchez-Romero y Benito-Calvo, 2026). Tradicionalmente, este yacimiento se había interpretado como evidencia de caza y desmembramiento de elefantes.
- Sorprendentemente, la pelvis de los neandertales comparte más características con la de las mujeres modernas que con la de los varones. A partir de la comparación de 91 pelvis humanas actuales con dos pelvis fósiles masculinas relativamente completas (Kebara 2 y Pelvis 1 de la Sima de los Huesos) y otros restos neandertales (La Ferrassie, Shanidar, Amud, Krapina y La Chapelle-aux-Saints), Rak y colaboradores proponen que la configuración femenina conserva mejor el patrón ancestral y, en muchas de sus proporciones, también al observado en los neandertales masculinos, probablemente porque las exigencias del parto han limitado sus posibilidades de remodelación evolutiva. En los varones modernos, en cambio, las articulaciones de la cadera se desplazaron hacia una posición más anterior, lo que permite a la musculatura del muslo absorber y devolver parte de la energía generada durante la marcha. Esta innovación habría hecho más eficiente el desplazamiento a larga distancia y contribuiría a explicar algunas diferencias actuales entre la marcha masculina y femenina.
- Por su parte, nuevas reconstrucciones virtuales de dos pelvis neandertales casi completas (la de una adulta joven de la Sima de las Palomas del Cabezo Gordo, España, y la de un individuo infantil de Dederiyeh, Siria), muestran que las diferencias respecto a los humanos modernos en la forma general de la pelvis ya estaban presentes a edades tempranas, aunque ambos grupos compartían patrones de dimorfismo sexual similares (Zollikofer et al., 2026). Las regiones relacionadas con el canal del parto son funcionalmente comparables, lo que apunta a mecanismos de parto semejantes. En cambio, existen diferencias en la la orientación acetabular y en la acción mecánica de algunos músculos, indicativas de distintas adaptaciones posturales y locomotoras. Los resultados apoyan que el llamado «dilema obstétrico» pudo surgir principalmente del compromiso entre las exigencias del parto y la estabilidad del suelo pélvico, y no entre el parto y la eficiencia de la locomoción bípeda.
- Varios resultados publicados casi simultáneamente contribuyen a conocer un poco mejor el complejo encaje evolutivo de los denisovanos. Dos de ellos presentan nuevos hallazgos procedentes de la cueva de Bianfu (suroeste de China) y del Canal de Penghu (frente a Taiwán). Los restos de Bianfu proporcionan datos sobre la anatomía y la forma de vida de estos humanos, mientras que los fósiles recuperados en Penghu son un gran avance para conocer el esqueleto poscraneal denisovano, aunque este último trabajo todavía está en revisión por pares. Juntos, estos hallazgos no solo ensanchan el mapa de los denisovanos, sino que empiezan a revelar la diversidad de formas, ambientes y estrategias de subsistencia que pudo existir dentro de este enigmático grupo humano. El último estudio reseñado aporta una reconstrucción genómica de la historia de sus intercambios con otras poblaciones humanas: entre un 3% y un 5% de la ascendencia genética denisovana reconstruida podría proceder de un linaje humano muy antiguo, situándose hace 1,8 Ma la separación de este linaje respecto al que conduce a los humanos modernos.
- Este último trabajo (Zhang et al., 2026) revela en nuestro genoma rastro de dos «linajes fantasma» de poblaciones humanas extintas. Uno de estos linajes fantasma dejó su rastro en todos los seres humanos actuales (0,5-1%). El otro es un linaje «superarcaico» que se remonta a casi 2 Ma y conforma el mencionado rastro del 3-5% en la línea denisovana. El método usado es TRACE, que usa características de los gráficos de recombinación ancestral para identificar ascendencia arcaica.
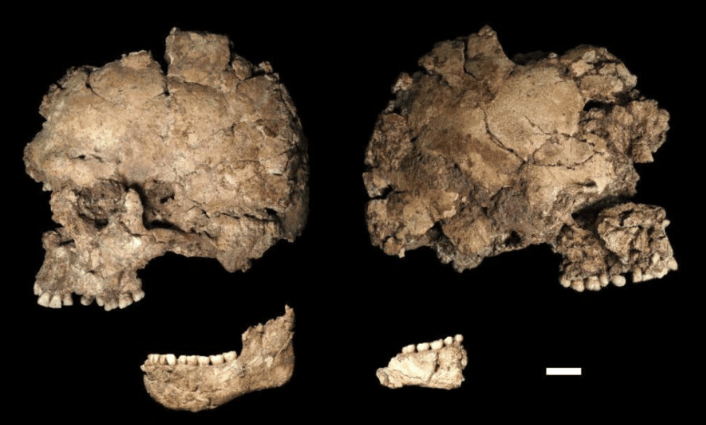
- La reevaluación de Qafzeh 25, de 92-145 ka, mediante análisis macroscópicos, microscópicos y tomografía computarizada de alta resolución (microCT), ha identificado una lesión lineal que afecta tanto a la mandíbula como a uno de los premolares inferiores, probablemente producida por un objeto cortante en una interacción violenta entre individuos (Pantoja-Pérez et al., 2026). La remodelación ósea indica además que el individuo sobrevivió tras sufrir la herida, lo que abre la posibilidad de que recibiera cuidados durante su recuperación. También tenía una caries oculta localizada en un premolar inferior y defectos del esmalte.
- Un conjunto de micropuntas procedentes de la cueva de Obi-Rakhmat, en las montañas de Tian Shan, al noreste de Uzbekistán, podría constituir evidencia de tecnología neandertal de proyectiles de hace unos 80 ka. El yacimiento conserva una industria del Paleolítico medio inicial del Levante, caracterizada por una producción sistemática y diversa de hojas: hojas gruesas y estrechas regulares a partir de núcleos unipolares y bipolares de cara estrecha, hojas delgadas y anchas a partir de núcleos planos tipo Levallois, junto con piezas más cortas a partir de núcleos Levallois convergentes o centrípetos, y hojitas a partir de núcleos de buril y otros núcleos pequeños. El análisis traceológico de una selección de 20 artefactos ha identificado huellas de uso como proyectiles en puntas retocadas, hojitas y, especialmente, micropuntas triangulares sin retocar que habían pasado desapercibidas por su estado fragmentario. Estas últimas son tan estrechas que habrían sido montadas sobre astiles de flecha. Su morfología recuerda además a micropuntas del valle del Ródano (Francia) aparecidas unos 25 ka después (Plisson et al., 2026).
- Un nuevo método para analizar genomas humanos arcaicos de baja calidad y su aplicación al neandertal Teshik-Tash 1 (Uzbekistán) muestra que este individuo es genéticamente más similar a los neandertales posteriores de Eurasia occidental que a los neandertales más antiguos de las montañas de Altai. Teshik-Tash 1 se separó del linaje euroasiático occidental hace entre 80 ka y 100 ka, y no presenta indicios de ascendencia denisovana (Sümer et al., 2026, preprint).
- En Abri 122/1200 (Rumanía), el análisis de más de 10.000 fragmentos óseos identificó 83 con modificaciones antrópicas, una evidencia hasta ahora no documentada de tecnología ósea asociada al Paleolítico medio en los Cárpatos (Mărgărit et al., 2026). Muchos fragmentos se utilizaron sin apenas modificación previa, probablemente para retocar útiles líticos y trabajar pieles o materiales vegetales. El hallazgo sugiere que las herramientas óseas más simples pueden pasar inadvertidas entre los restos faunísticos. Su atribución a neandertales se basa en el contexto arqueológico, pues no se han identificado restos humanos diagnósticos en el yacimiento.
- Alonso-García y colaboradores presentan el primer análisis detallado de los retocadores óseos de Valdegoba (Burgos, España) e incorporan piezas inéditas a un conjunto asociado a una ocupación neandertal confirmada. La selección de determinados huesos, sus modificaciones y las huellas de uso sugieren que se prepararon y emplearon teniendo en cuenta su función y facilidad de manejo. La recurrencia de estos patrones apunta a prácticas tecnológicas relativamente estables, aunque no demuestra por sí sola una planificación estricta de cada pieza.
- En la cueva de Üçağızlı II, neandertales y H. sapiens ocuparon sucesivamente el mismo lugar entre hace 77 ka y 47 ka, sin una ruptura cultural apreciable en el registro. Ambos grupos emplearon técnicas líticas similares y siguieron estrategias de subsistencia parecidas; la selección de conchas para posibles adornos también apunta a cierta continuidad. El estudio de Baykara y colaboradores muestra que el relevo biológico no implicó necesariamente un cambio cultural, aunque sigue abierta la cuestión de si esa continuidad se debió a la transmisión entre grupos, a la hibridación o a otros procesos.
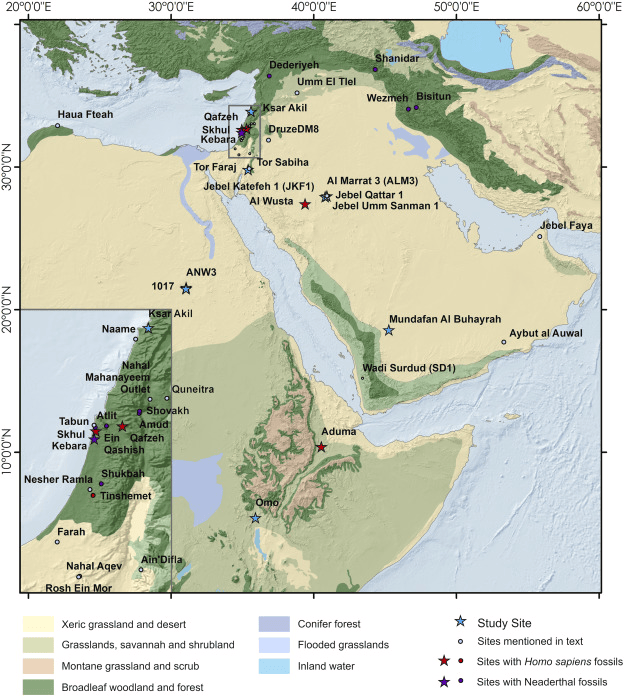
- El análisis cuantitativo de la talla Levallois en el suroeste de Asia y el noreste de África entre 100 y 50 ka pone de manifiesto una marcada diversidad regional y temporal, que Blinkhorn y colaboradores han contrastado con el registro fósil humano conocido. A partir de esta comparación, atribuyen a los neandertales varios conjuntos del norte de Arabia de entre 70 y 55 ka, entre ellos Kebara X, Ksar Akil 28 y Tor Faraj floor 1. La atribución coincide con la expansión neandertal por el suroeste de Asia entre aproximadamente 75 y 50 ka y con que, en torno a 55 ka, son los únicos homininos cuya presencia está datada con certeza en la región.
- Utilizando modelos de distribución de especies basados en ocurrencias fósiles y datos paleoclimáticos, Trejo y colaboradores han estimado la biomasa disponible como recurso para los grupos humanos y han evaluado la capacidad del ecosistema para sostener a la población neandertal del valle superior del río Lozoya, cuyo tamaño estiman entre 14 y 33 individuos.
- Kanis y colaboradores identifican una versión neandertal del receptor de la hormona del crecimiento que, en cultivos celulares, aumenta la proliferación en respuesta a la hormona hipofisaria, pero no a la placentaria. En poblaciones actuales, quienes heredaron esa versión tienden a presentar una masa muscular ligeramente mayor, junto con algunos rasgos craneofaciales asociados a los neandertales. La asociación apunta a un efecto biológico modesto; no demuestra que esta variante explique por sí sola la robustez neandertal ni las diferencias de musculatura entre personas.
- A partir de modelos de distribución de nicho ecológico y datos paleoambientales de alta resolución, Yousefi y colaboradores reconstruyen la evolución de los hábitats favorables para los neandertales desde el Último Interglacial (~130 ka) hasta el período anterior a su desaparición (~40 ka). Pese a las importantes oscilaciones climáticas de este periodo, las áreas potencialmente habitables se mantuvieron en general conectadas, sin una fragmentación persistente, y conservando núcleos especialmente favorables en Europa occidental y a lo largo de las principales regiones costeras. Los resultados sugieren así una notable estabilidad espacial del nicho neandertal a gran escala pese a los cambios ambientales. Recordemos que, de entre los mencionados núcleos, en 2024 Guran y colaboradores habían abordado la cuestión de dónde pudieron producirse los encuentros entre ambas especies. Mediante modelos de nicho ecológico y sistemas de información geográfica (SIG), reconstruyeron sus áreas potenciales de distribución durante el MIS 5 (120-80 ka), combinando datos climáticos y topográficos con la localización de los yacimientos conocidos. La superposición de ambos modelos identifica los montes Zagros como una posible zona de contacto e hibridación, situada además en un corredor biogeográfico entre los ámbitos paleártico y afrotropical. Esta región habría podido facilitar tanto la expansión hacia el norte de los humanos modernos como el desplazamiento hacia el sur de los neandertales.
- El análisis biomolecular de los dientes de dos cazadores-recolectores preagrícolas de Sulawesi (Indonesia), siendo el más antiguo de 25-16 ka, muestra una patología dental causada por la succión habitual y la permanencia prolongada de nueces de betel (nuez de areca) enteras en la boca, lo que libera arecolina, una sustancia psicoactiva y estimulante (Brumm et al., 2026). Recordemos que otra evidencia muy antigua conocida del consumo de sustancias estimulantes proviene de la Cueva Raqefet (Israel) y tiene 13 ka.
- Intxaurbe (2026) ha analizado más de 500 figuras de arte rupestre magdaleniense en nueve cuevas de la región cantábrica mediante análisis de redes de coocurrencia, estadística multivariante y modelos espaciales. En lugar de buscar directamente el significado simbólico de las imágenes, estudió cómo se asociaban entre sí los distintos motivos dentro de cada panel. Los resultados muestran que la distribución de los animales no es aleatoria en las cuevas vascas analizadas: bisontes, caballos y cabras monteses ocupan posiciones centrales en la organización de las composiciones y siguen patrones recurrentes de asociación, orientación y distribución espacial, lo que apunta a un sistema gráfico estructurado según criterios compartidos.
- Samson (2026) propone la «Teoría del Sueño Social» para desafiar un modelo conductual rígido de diurnalidad humana y sostiene que los humanos son catemerales: a través de la construcción de nichos sociotecnológicos (vigilancia grupal, fuego y refugio), desarrollaron un sueño corto, flexible y de alta calidad que permitió la redistribución de la actividad a lo largo del ciclo diurno.
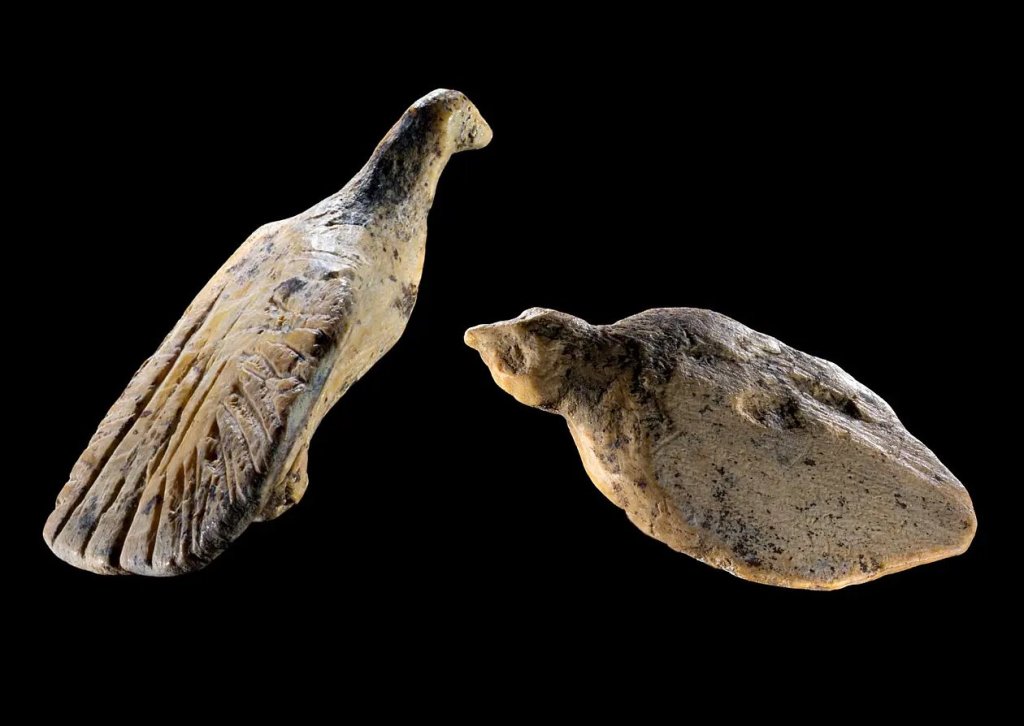
- Conard y colaboradores han presentado dos nuevas figuritas de aves talladas en marfil de mamut y encontradas en la cueva de Hohle Fels (Alemania), en niveles auriñacienses de unos 40 ka. Con apenas 2 cm de longitud, son las representaciones figurativas más pequeñas conocidas de este periodo, pero muestran detalles muy precisos. Una parece representar un ave echada, posiblemente incubando, mientras que la otra, incompleta, muestra las alas extendidas, quizá en vuelo o aterrizando. Hohle Fels ha proporcionado ya tres figuritas de aves, mientras que no se conoce ninguna en los demás yacimientos de la región, lo que podría indicar una asociación entre determinados motivos artísticos y lugares concretos.
- A partir de nuevas dataciones por radiocarbono y un análisis tafonómico y forense de más de un millar de restos humanos procedentes de las cuevas de Malalmuerzo, Carigüela y Majolicas, en Granada, Saladié y colaboradores revelan que el canibalismo durante el Neolítico del sur de la península ibérica no fue una práctica única ni uniforme, sino que se produjo en distintos momentos y contextos sociales. Identifican tres escenarios diferentes: un posible episodio de violencia colectiva en Malalmuerzo, varios episodios de canibalismo en distintos momentos en Carigüela y prácticas rituales en Majolicas. Además, observan cierta coincidencia cronológica entre distintos yacimientos con evidencias de canibalismo en la prehistoria europea, desde finales del sexto milenio a. C. hasta comienzos de la Edad del Bronce.

