La evolución del bipedalismo hominino en dos pasos fundamentales

La evolución del bipedalismo hominino en dos pasos fundamentales

El desarrollo de la bipedación obligada fue una innovación clave que distingue a los homininos del resto de los primates, y transformó radicalmente la locomoción, la dieta y el manejo de herramientas. Por ello, el estudio anatómico y ontogénico de la pelvis es crucial en paleoantropología, tal como se demostró con la pelvis de Lucy o de Ardi, donde observamos indicios de bipedación en Australopithecus afarensis y Ardipithecus ramidus, respectivamente. Estos homininos ya caminaban erguidos, aunque también mantenían capacidades de trepa.

Es especialmente revelador analizar el ilion (o hueso ilíaco), el componente más ancho y superior del hueso coxal (os coxae). En los primates no humanos, los huesos ilíacos son altos y están orientados paralelos a la columna vertebral, con forma de pala. En los humanos, la pelvis se acorta y ensancha: los huesos ilíacos se reorientaron en nuestra línea evolutiva, configurando una morfología que envuelve el tronco por encima de la cadera. Esta disposición aporta inserciones musculares que permiten el equilibrio lateral durante la marcha erguida, en particular el papel de los músculos glúteos sobre la cresta ilíaca.

Un nuevo trabajo multidisciplinar (Senevirathne, Fernandopulle, Richard et al., 2025) ha identificado dos pasos de desarrollo fundamentales en el ilion, basándose en estudios comparativos histológicos, genómicos y anatómicos sobre embriones y fetos humanos y de otros primates, complementados con modelos de ratones. El trabajo caracteriza cientos de elementos reguladores activos que guían la morfogénesis ilíaca.

Reorientación de la placa de crecimiento ilíaca

Aproximadamente en la séptima semana del desarrollo embrionario, en los primates aparece una zona de crecimiento cartilaginosa en el ilion. En primates no humanos, esta placa permanece orientada paralela a la columna vertebral, facilitando el crecimiento en altura del ilion y manteniendo una morfología adaptada a la locomoción cuadrúpeda y/o braquiación. En los humanos, esta placa rota perpendicularmente respecto a la columna, favoreciendo el ensanchamiento del ilion y la formación de una pelvis con forma de cuenco.

Este cambio evolutivo podría haber ocurrido cerca del origen de los primeros homininos, en especies próximas a Ardipithecus ramidus, cuyo registro fósil muestra una pelvis de rasgos intermedios, no completamente hominizada, pero indicativa de una tendencia hacia la bipedación.

Osificación ilíaca

Hacia la octava semana de desarrollo, el ilion humano muestra una dinámica de osificación endoconcrial atípica: a diferencia de la mayor parte del esqueleto humano y de los huesos de otros primates, la mineralización se restringe en la superficie, manteniendo el interior cartilaginoso incluso hasta pasado el segundo trimestre de gestación. Esta osificación tardía y superficial permite una mayor plasticidad posicional y de forma durante las fases críticas del desarrollo fetal, de manera que la pelvis se ajusta morfológicamente para una bipedación eficiente.

En la evolución humana, este proceso podría haber adquirido importancia con el establecimiento definitivo de la bipedación obligada en el género Homo.

Sigue leyendo →
Paleoantropología: novedades 2º trimestre 2023

Paleoantropología: novedades 2º trimestre 2023

En este segundo trimestre del año, el ritmo de publicación de novedades en paleoantropología ha sido realmente alto. Rescato 45 de ellas para elaborar este resumen:

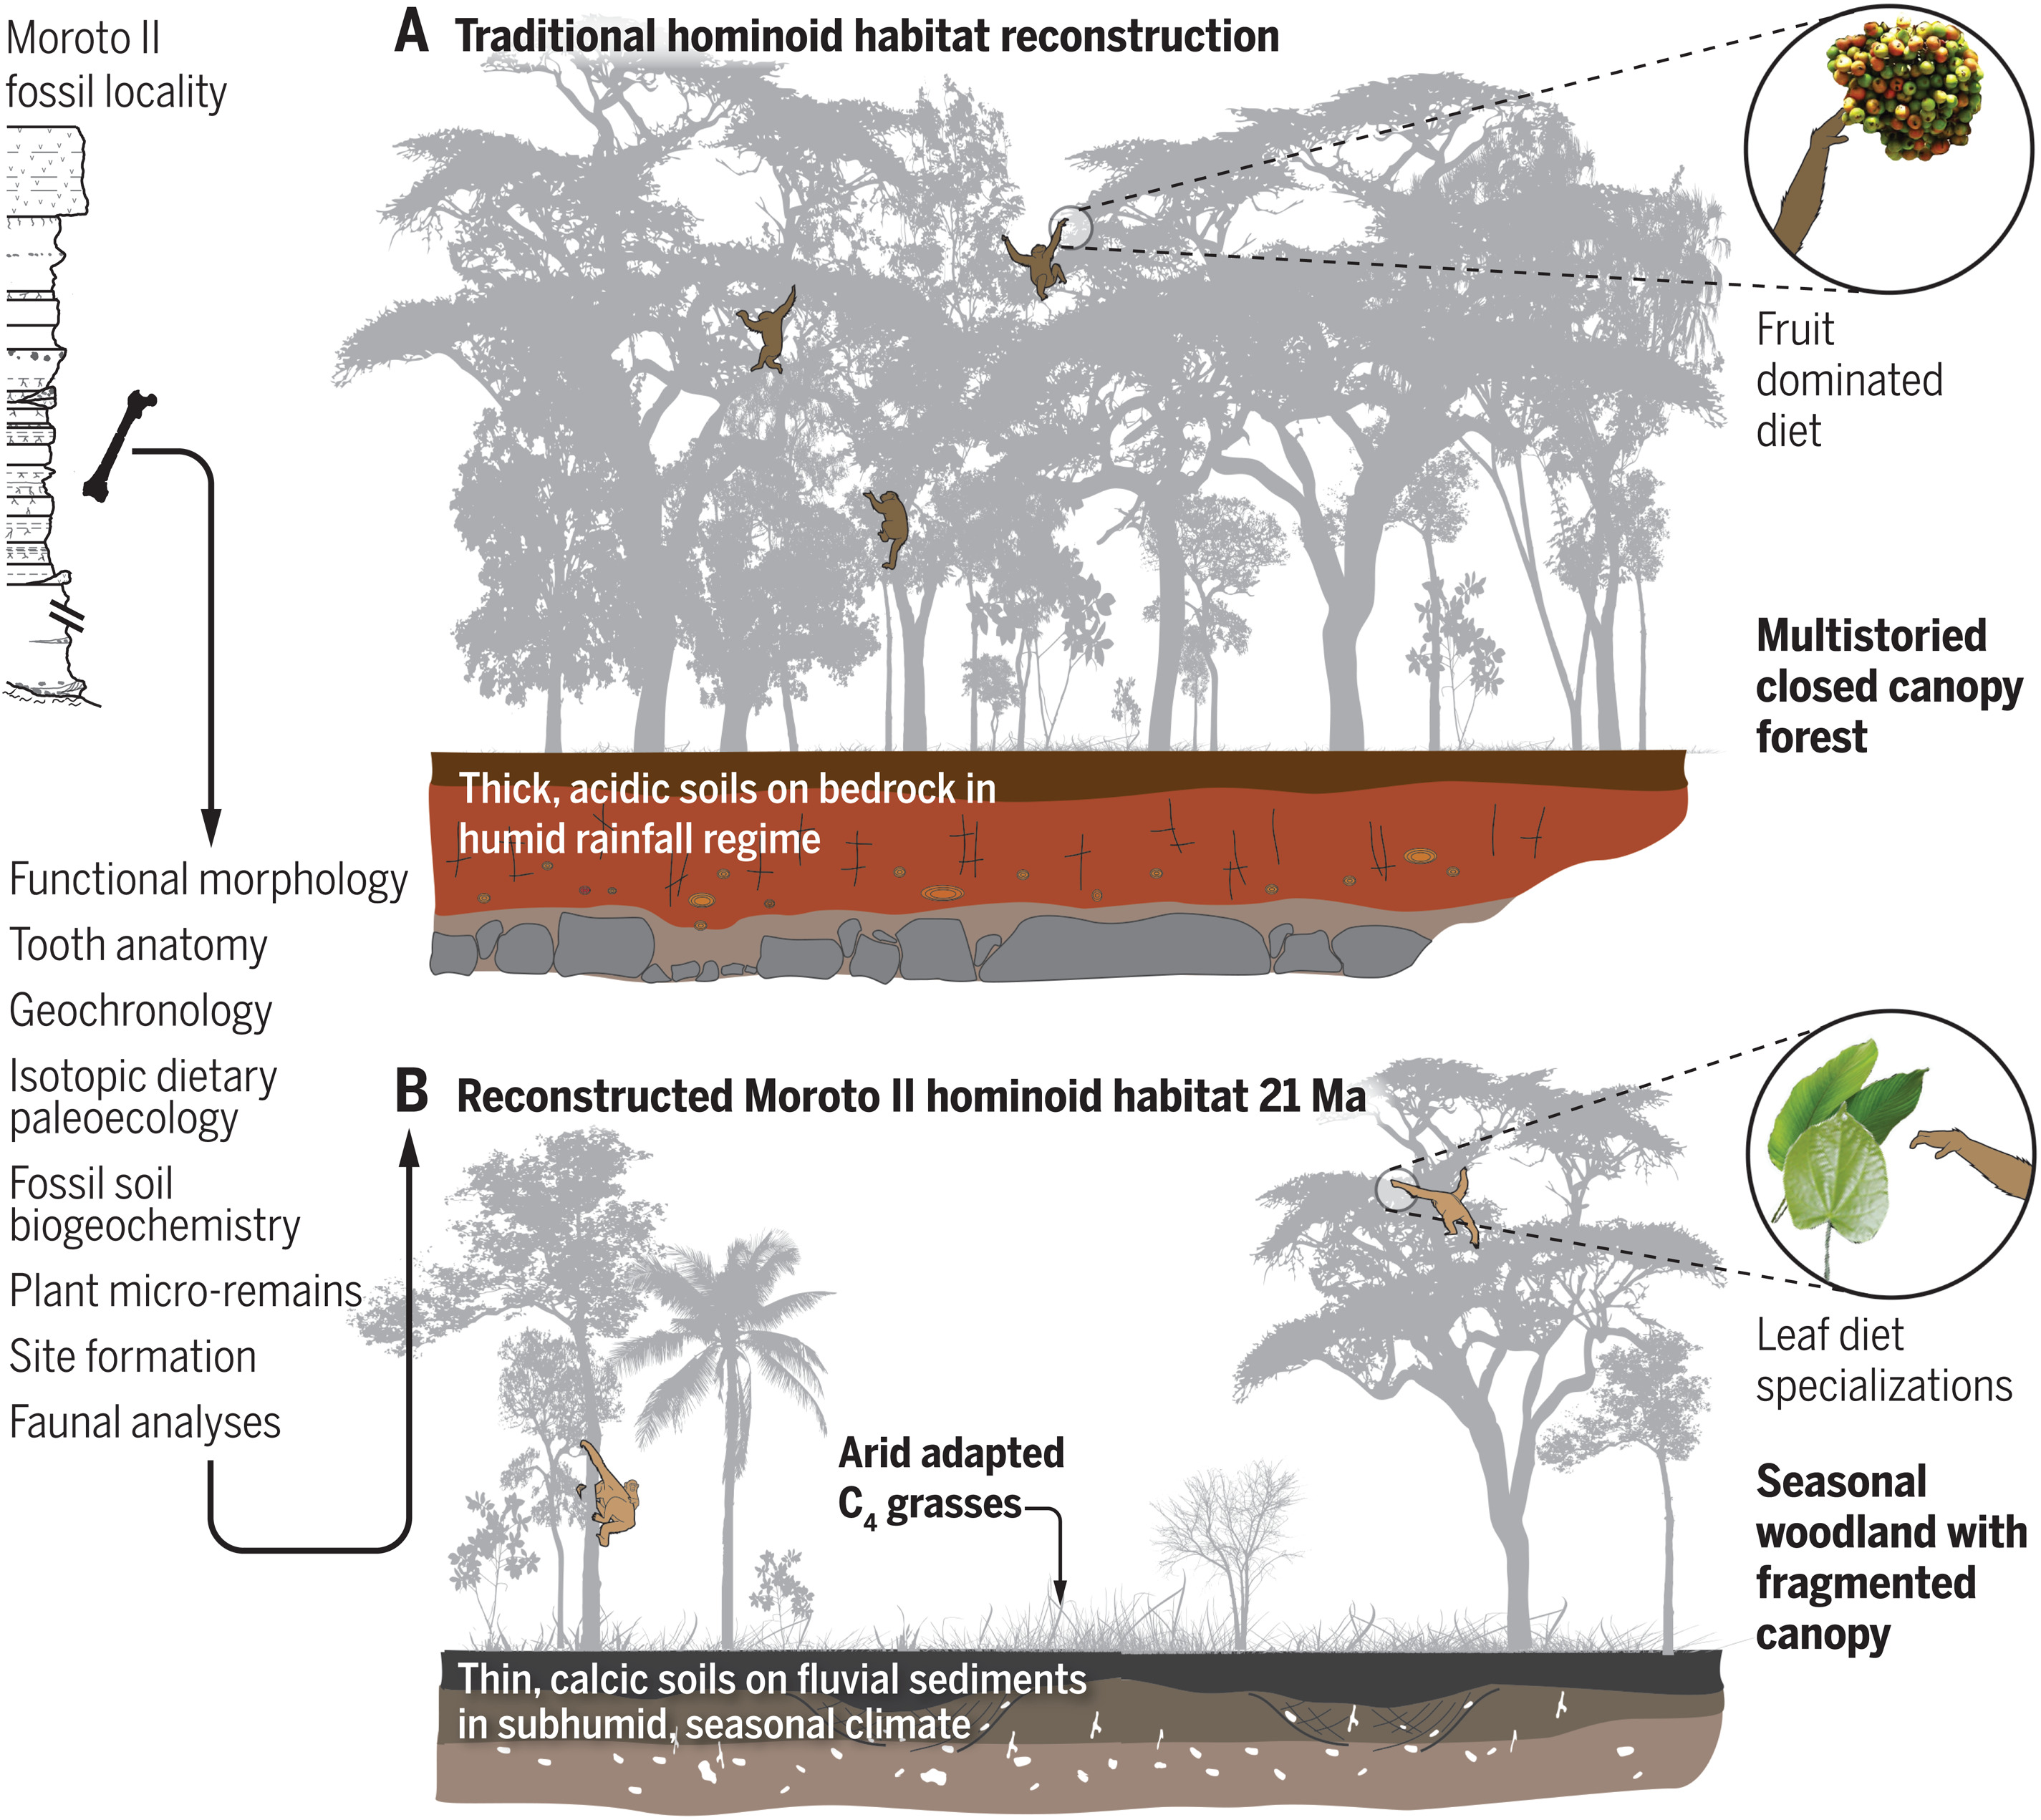
  • Dos nuevos trabajos paleontológicos y paleoecológicos en el este africano, analizan cómo era el hábitat donde evolucionaron los hominoideos ancestros de los primeros homininos. Aunque se suponía que su ecosistema era predominantente selvático hace más de 10 millones de años (Ma), se ha encontrado que más bien sería una sabana con zonas boscosas, un entorno más seco e irregular. Así, parece que tenemos que buscar el origen de la sabana africana mucho antes antes de lo esperado, con una abundancia de hierbas tipo C4 hace entre 21 y 16 Ma [+]. Esto reabre el debate sobre la evolución morfológica de los hominoideos y el aumento muscular de sus extremidades traseras, observada en el simio más antiguo de la región, Morotopithecus (nombre tomado del sitio Moroto II de Uganda), similar a la de los simios actuales, lo que sería una adaptación a bosques abiertos y estacionales en una transición hacia los orígenes de la locomoción bípeda [+]. 

Reconstrucción tradicional y nueva del hábitat de los hominoideos. Crédito: L. M. MacLatchy et al (2023).

  • Un estudio sobre el cúbito de 17 especímenes de homininos (Sahelanthropus, Ardipithecus, Australopithecus, Paranthropus y Homo primitivos), junto con cúbitos de Homo sapiens y de simios extinguidos, concluye que los fósiles TM 266 (asignado a Sahelanthropus tchadensis) y OH 36 (a Paranthropus boisei) se diferencian de otros homininos por encontrarse dentro del morfoespacio de la marcha con nudilleo (knucle-walking). Los autores del trabajo se cuestionan que S. tchadensis fuera un bípedo obligado; más bien podría ser un homínido del Mioceno tardío con adaptaciones para caminar con nudilleo [+].
  • Se ha logrado crear un modelo digital de la estructura muscular de la parte inferior del cuerpo del esqueleto de Lucy (Australopithecus afarensis), de 3,2 Ma, para comprobar su locomoción en vida. Para ello, se emplearon resonancias magnéticas y tomografías computarizadas de las estructuras musculares y óseas de humanos modernos para trazar las trayectorias musculares, usaron los modelos virtuales del esqueleto de Lucy para recomponer las articulaciones, reconstruyeron 36 músculos, y recrearon sus movimientos en vida. La mayoría de los músculos eran mucho más voluminosos en Lucy que en los humanos modernos. Por ejemplo, los músculos del muslo constituían el 74% de su masa, frente al 50% en los humanos modernos. Los músculos extensores de la rodilla de Lucy, y el efecto de palanca que permitirían, confirman que tenía la misma capacidad de enderezar las articulaciones de la rodilla que los humanos modernos. Una vez más, vemos que Lucy era bípeda [+].
  • Y, precisamente, los tres Australopithecus afarensis que dejaron las huellas del sitio G de Laetoli hace 3,66 Ma, eran relativamente grandes e iban un poco más rápido de lo que se había estimado anteriormente. Un gran australopiteco (160-170 cm) iba seguido a la misma velocidad por dos individuos de menor tamaño (un posible macho de 140 cm y una hembra o juvenil de 120 cm) [+].
  • Una revisión sobre la locomoción en los homininos y su evolución desde el Mioceno superior hasta el Plioceno superior, muestra la retención de ciertos rasgos en hombros y extremidades en Au. afarensis y Au. africanus (ya después de ser bípedos habituales) relacionados con actividades arbóreas que resultaban clave para alimentarse, criar y evitar depredadores. Muchos de estos rasgos persistieron hasta la aparición de Homo erectus [+].

Sigue leyendo →

Paleoantropología: novedades 4º trimestre 2022

Paleoantropología: novedades 4º trimestre 2022

Hemos terminado 2022 con un último trimestre cargadito de novedades. Aquí va una selección de 31, completando un total de 101 noticias (bonito número) en el viejo año que he ido recopilando en mis resúmenes trimestrales:

  • Dos mandíbulas (MSD-VP-5/16 y MSD-VP-5/50) con dentición recuperadas en una capa de al menos 3,76 Ma (millones de años) en el sitio Woranso-Mille, muestran afinidades taxonómicas tanto con Australopithecus anamensis como con Au. afarensis. La retención de algunos rasgos similares a los Au. anamensis de Kanapoi, así como la presencia de esta especie en depósitos de 3,8 Ma en Woranso-Mille, sugieren la clasificación de estas dos mandíbulas en Au. anamensis. Las similitudes con la dentición de Au. afarensis complican esta clasificación, y reforzarían la hipótesis de la cronoespecies Au. anamensis-Au. afarensis, si no fuera por el posible solape cronológico entre ambas [+].

Mandíbulas MRD-VP-5/50 y MRD-VP-5/16 de Woranso-Mille, en comparación con otras mandíbulas australopitecinas

Mandíbulas MRD-VP-5/50 y MRD-VP-5/16 de Woranso-Mille, en comparación con otras mandíbulas australopitecinas. Crédito: Haile-Selassie et al (2022).

  • Un nuevo trabajo apoya la hipótesis que sitúa el origen de la bipedación humana en los árboles y no en el suelo. A partir de 2850 observaciones de eventos locomotores de 13 chimpancés adultos de los bosques abiertos del valle del Issa (Tanzania) durante 15 meses, el estudio concluye que pasaban tanto tiempo en los árboles como otros chimpancés que vivían en bosques densos, a pesar de su hábitat más abierto; no eran más terrestres como se habría esperado; sorprendentemente, más del 85% de los casos de bipedismo ocurrieron en los árboles; no caminaban más erguidos en la vegetación de sabana abierta, donde no pueden viajar fácilmente a través de la copa de los árboles [+].
  • A pesar de que se han definido hasta 21 especies en África entre el Mioceno final y el Pleistoceno medio, tan solo 17 esqueletos poscraneales se han podido asociar a alguna de dichas especies. Un nuevo trabajo repasa los restos poscraneales que conforman el limitado registro fósil africano en este período, como base para la asignación taxonómica de nuevos restos futuros [+].

Restos poscraneales asociados a cráneos en el Pleistoceno inferior

Restos poscraneales asociados a cráneos en el Pleistoceno inferior. Crédito: F. Grine et al (2022)

Sigue leyendo →

Sahelanthropus, un bípedo hace 7 millones de años: ¿cuáles son las dudas?

Sahelanthropus, un bípedo hace 7 millones de años: ¿cuáles son las dudas?

Actualizado enero 2026

[English version below]

Hace casi dos años, nos quedamos con la noticia de que Sahelanthropus tchadensis podría en realidad no ser bípedo y por tanto no ser un hominino (Macchiarelli et al, 2020). Tradicionalmente, en los textos sobre evolución humana se ha incluido a esta especie como el representante más antiguo conocido de los homininos (perteneciente a la filogenia humana, que se separó del linaje de los chimpancés hace unos 6-7 Ma, millones de años), principalmente por el foramen magnum (orificio donde se inserta la columna vertebral) en una posición más centrada en el cráneo que los primates cuadrúpedos (Brunet, 2002), lo que corresponde a un ser bípedo.

La bipedación es un factor clave para que una especie se considere como hominina, junto con la reducción del canino y la pérdida del complejo canino-premolar. Precisamente, la datación estimada para los fósiles de Sahelanthropus tchadensis coincide aproximadamente con esa cronología; de ahí la importancia de esta especie para entender nuestra evolución, y para estar estudiando una rama de nuestro árbol muy cercana al Último Ancestro Común de humanos y chimpancés. Tan solo otra especie se aproxima a dicha cronología, Orrorin tugenensis, cuyos restos de fémur sugieren que era un ser bípedo, pero hasta 2020 no se había publicado el fémur de Sahelanthropus, elemento esquelético fundamental para entender su tipo de locomoción. Por la obvia limitación del registro fósil del Mioceno, la dificultad de clasificar unos fósiles dentro o fuera del linaje hominino es enorme, y las dudas sobre su bipedación la empeoran.

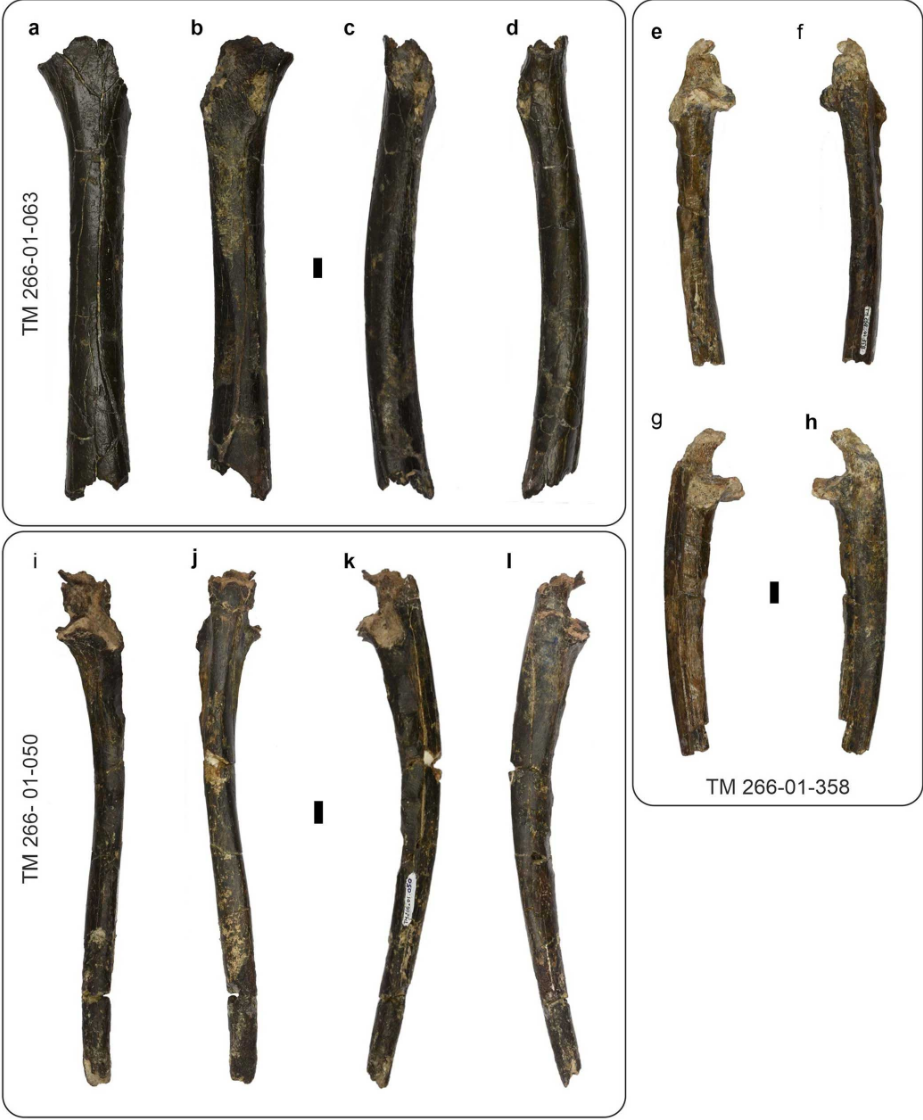
Un fémur parcial y dos cúbitos se hallaron en 2001 en Toros-Menalla, Chad, cerca del lugar donde se recuperó el holotipo de Sahelanthropus tchadensis en el mismo año, el icónico cráneo apodado Toumaï («esperanza de vida» en dazaga, lengua local de Chad). También se encontraron algunos dientes y fragmentos mandibulares. Aunque no se puede asegurar que los restos poscraneales y el cráneo sean del mismo individuo, sí que hay un consenso alrededor de que pertenecen a la misma especie S. tchadensis. Además, las diferencias respecto al fémur de Orrorin tugenensis (BAR 1002’00) garantizan que efectivamente ambos huesos son de especies diferentes. Sin embargo, Macchiarelli y otros planteaban serias dudas respecto a que los huesos poscraneales fuera de un individuo bípedo habitual, sino más bien de un grupo derivado de Pan (chimpancés), o de una radiación adaptativa de homínidos africanos acaecida entre el Mioceno final (que termina hace 5,3 Ma) y el Plioceno inicial, con grupos extinguidos que tendrían una morfología novedosa y una mezcla de rasgos primitivos y derivados que recuerdan en parte a homininos y a paninos.

Restos poscraneales de Sahelanthropus tchadensis: fémur TM 266-01-063, y cúbitos TM 266-01-358 y TM 266-01-050. Crédito: Guillaume Daver et al, 2022.

Poco después de aquello, Franck Guy, Guillaume Daver, y otros publicaron un preprint donde analizaban los materiales originales del mismo fémur izquierdo y de dos cúbitos, en comparación con otros primates (chimpancé, gorila, orangután, simios del Mioceno, Orrorin, Ardipithecus, Australopitecus, especies extintas de humanos y Homo sapiens). Este trabajo es el ahora publicado en Nature (Daver, Guy, Mackaye et al, 2022), y que ha despertado tanta atención entre la comunidad científica y el público general. Basándose en una veintena de características morfológicas y biomecánicas estudiadas, Daver y otros sostienen que S. tchadensis era efectivamente un bípedo habitual cuando caminaba sobre el suelo y también sobre las ramas de los árboles, mientras que los huesos del antebrazo indican que era cuadrúpedo para trepar a los árboles, pero de manera distinta al chimpancé y al gorila. 

Un trabajo posterior (Williams et al., 2026) analiza los fragmentos de cúbitos y fémur de Toumaï mediante morfometría geométrica 3D y rasgos cualitativos. Aunque la curvatura de los ejes y robustez de estos huesos se asemejan más al chimpancé entre primates vivos y fósiles, la propoción ulna-fémur es intermedia entre bonobos y Australopithecus (StW 573). Además, tres rasgos femorales se alinean con adaptaciones bipedales propias de los homininos: 1) un tubérculo femoral prominente para la inserción del ligamento iliofemoral, que estabiliza la cadera extendida cuando el tronco está erguido sobre piernas extendidas; 2) una fuerte antetorsión diafisaria, correlacionada con un ángulo bicondilar valgo para alinear rodilla y tobillo bajo el centro de masa; 3) un complejo glúteo derivado, con tuberosidad glútea y cresta sin línea espiral lateral, similar a Orrorin tugenensis y Ardipithecus ramidus, que ordena la musculatura de cadera para la postura erguida.

Sigue leyendo →

Sobre hábitos de locomoción y tal vez un antiguo primate bípedo

La bipedación es una forma única de desplazamiento empleada por una sola de todas las especies de primates actuales, y se considera uno de los rasgos esenciales que define al linaje humano. Por ello, intentar conocer cuándo, dónde y por qué surgió esta modalidad de locomoción suele generar un rico debate.

El Mioceno, periodo entre hace 23 y 5 millones de años (Ma) en ocasiones suele llamarse «planeta de los simios», por las numerosas especies de primates que poblaban entonces Europa, África y Asia: las conocidas se cuentan por decenas, y cuántas otras existirían que nunca conoceremos… Esas especies nos van aportando datos del camino evolutivo que siguieron los primates, pero el registro fósil no es abundante y hay muchos huecos, por ejemplo, a partir de hace 7 Ma hasta la aparición de los australopitecos (4 Ma). Por ello, todavía es muy difícil comprender la transición hacia el bipedismo desde otros hábitos (saltación, suspensión, cuadrupedismo arbóreo, cuadrupedismo terrestre), o averiguar cuál sería el comportamiento locomotor del último ancestro común de humanos y chimpancés.

En los primeros homininos vemos ciertos indicios de haber desarrollado una postura erguida, pero no un desarrollo especializado de la bipedación como sí se observa posteriormente:

  • La posición del foramen magnum de Sahelanthropus tchadensis manifiesta una cierta posición erguida (en espera de conocer un misterioso fémur de esta especie, que parece existir pero no se publica).
  • Orrorin tugenensis presenta menos dudas de poder mantener una posición erguida, aunque contamos con muy pocos huesos.
  • Ya hay rasgos más claros en la morfología de distintas partes del esqueleto de los ardipitecos, de que eran seres bípedos en ambientes boscosos hace más de 4 Ma, pero también hábiles trepadores.
  • Finalmente, los australopitecos serán los primeros seres que muestran claramente una locomoción bípeda habitual hace entre 4-2,5 Ma, manteniendo aún ciertas capacidades de trepa. De entre estos seres posiblemente surgió el linaje humano.

Pero todo esto no significa que la bipedación sea exclusiva de los humanos sino que, dentro de otras especies de primates anteriores a los homininos, pudieron ir apareciendo «pruebas» de bipedación y de otros hábitos locomotores distintos a los que empleaban, como adaptaciones de su morfología más adecuadas a su modo de vida.

Así, este artículo resume dos recientes estudios que aportan nuevos datos muy interesantes sobre este tema.


Oligoceno (23-34 Ma): Aegyptopithecus

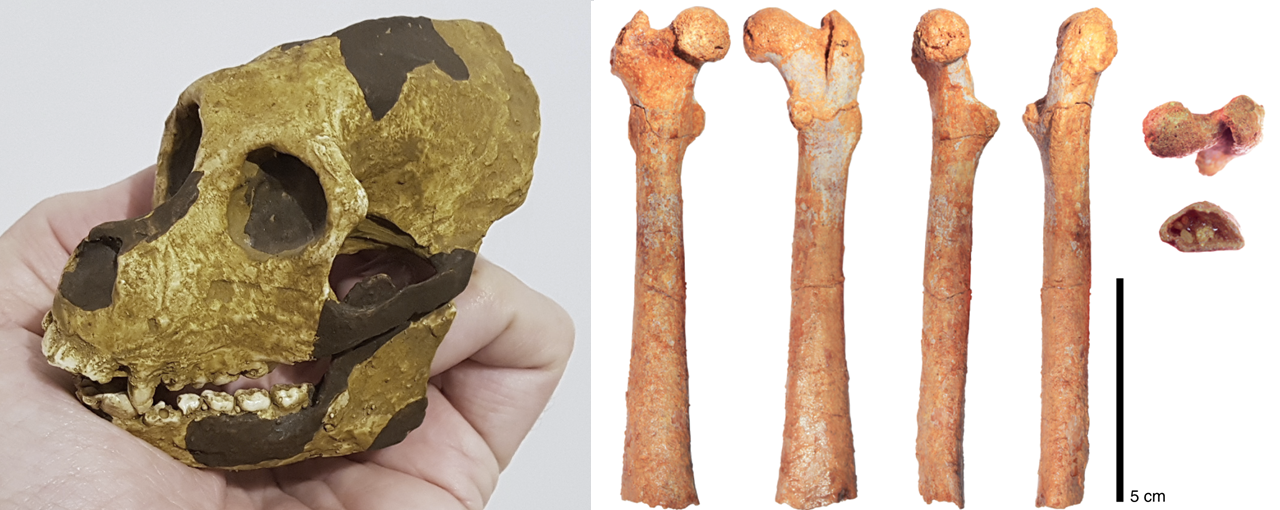
Este es el cráneo de Aegyptopithecus zeuxis, que vivió en un momento previo a la separación de las dos superfamilias de catarrinos: los hominoideos (gibones, orangutanes, gorilas, chimpancés, humanos) y los cercopitécidos (monos del Viejo Mundo: babuinos, cercopitecos, macacos, colobos).

1) Reproducción de cráneo de A. zeuxis basada en dos fósiles (AMNH 13389 y YPM 21032) encontrados en El Fayum (Egipto) – crédito: Roberto Sáez. 2) Anterior, posterior, medial, lateral, proximal and distal views, respectively, of DPC 24466 – credit: Almécija S. et al. (2019)

Sigue leyendo →