Paleoantropología: novedades 2º trimestre 2024

Paleoantropología: novedades 2º trimestre 2024

Acompañando al cierre del segundo trimestre, aquí va el resumen de 32 novedades publicadas. Os deseo buena lectura y un feliz verano (o invierno, en el hemisferio sur).

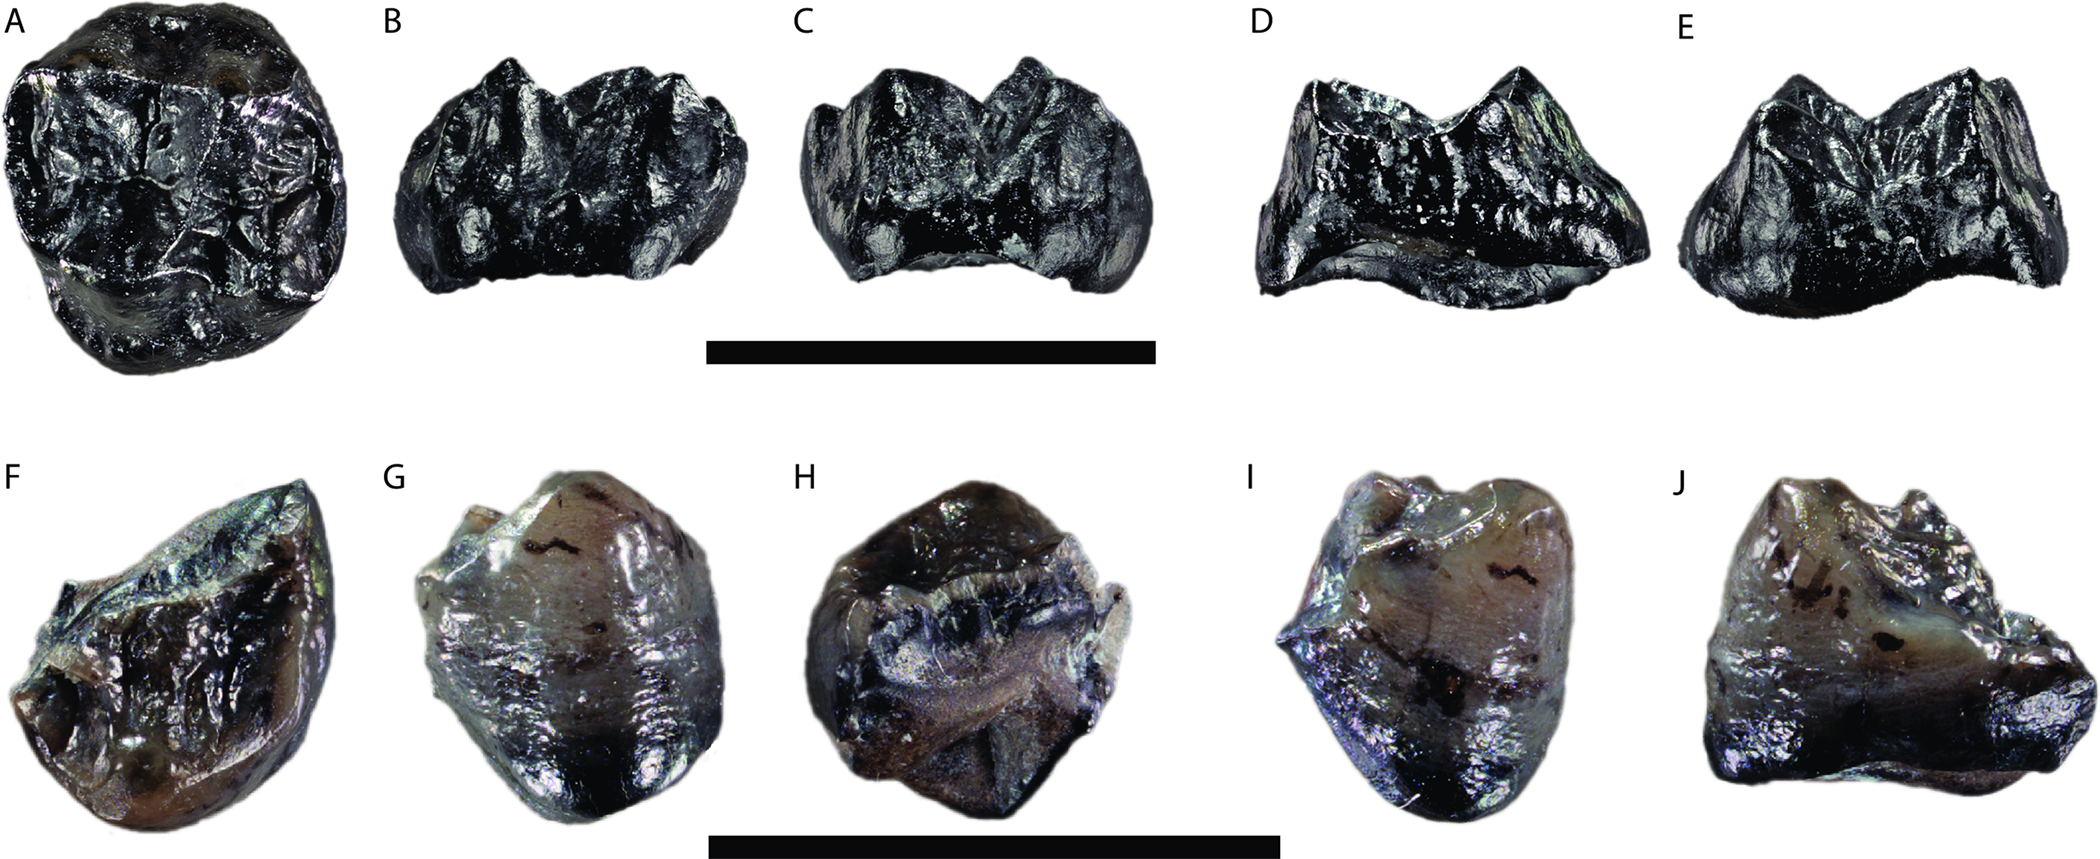
  • Damos la bienvenida a un nuevo homínido, denominado Buronius manfredschmidi, el más pequeño conocido (10 kg de masa corporal). Datado en 11,62 Ma (millones de años), procede de Hammerschmiede (Bavaria, Alemania). Su holotipo es un molar M2 y paratipos un premolar P4 y un fragmento de paladar. Contrastando con la frecuente simpatría de hominoides (más de una especie conviviendo en el mismo área) en el Mioceno inicial y medio de África, hasta ahora no se conocía ningún caso de simpatría en el Mioceno europeo. En el mismo nivel 5 de Hammerschmiede, se halló el Danuvius guggenmosi presentado en 2019.
  • La morfología mediofacial varía mucho entre los grandes simios y los humanos, en los que la cara es pequeña y retraída. Aún se desconocen en gran medida los procesos de desarrollo subyacentes a estas diferencias morfológicas. El estudio de la cara media de distintos primates concluye que, en general, los humanos comparten el patrón de modelado óseo mediofacial de los grandes simios, pero la reabsorción ósea es elevada en la zona canina desde el nacimiento, lo que puede ser una clave de la reducción canina en la evolución facial; también, que los humanos presentan altos niveles de reabsorción ósea durante la infancia, una característica que no comparten con otros simios [+].
  • Una revisión del trabajo de Daver et al. (2022) (que proponía a Sahelanthropus tchadensis como un bípedo habitual) cuestiona tal caracterización, basándose en que determinados rasgos morfológicos, principalmente del fémur, no son exclusivos de seres bípedos [+].
  • La competencia fue fundamental para la especiación en nuestro camino evolutivo a lo largo de cinco millones de años. Mediante modelos bayesianos y análisis filogenéticos, un trabajo observa que, cuantas más especies de Homo había, mayor era la tasa de especiación. Esto apenas tiene parangón en la ciencia evolutiva dado que, en otros vertebrados, las tasas de especiación aumentan y luego se estancan a medida que los nichos ecológicos se llenan, momento en que las tasas de extinción comienzan a aumentar. Este argumento reforzaría que la competencia entre especies fue un factor evolutivo importante. En cambio, en los homininos, cuando esos nichos se fueron llenando, surgían aún más especies. También lo han observado en algunas especies de escarabajos isleños, cuyos ecosistemas han podido producir tendencias evolutivas inusuales. Los autores de este trabajo observan que, mientras que especies de homininos como Paranthropus probablemente evolucionaron fisiológicamente para ampliar su nicho, por ejemplo, adaptando los dientes para explotar nuevos tipos de alimentos, el motor del patrón tan diferente en nuestro género Homo podría haber sido la tecnología. Las herramientas de piedra, el fuego, o las técnicas de caza intensiva son comportamientos extremadamente flexibles que permiten generalizar y superar rápidamente los nichos ecológicos, que obligan a otras especies a competir por el hábitat y sus recursos,  sin necesidad de sobrevivir mucho tiempo para desarrollar nuevos planes corporales [+].
  • Siempre es bienvenido un nuevo yacimiento olduvayense. Se trata de Sare-Abururu, situado en la península de Homa, en el suroeste de Kenia, donde ya se conocen otros conjuntos olduvayenses procedentes de Nyayanga (Plioceno final, ~3-2,6 Ma) y Kanjera Sur (Pleistoceno inicial, ~2 Ma). Mientras que en estos últimos sitios los homininos obtenían diversas materias primas de alta calidad a más de 10 km de distancia, más tarde, en Sare-Abururu los homininos hace ~1,7 Ma dejaron 1754 artefactos fabricados a partir de guijarros de cuarzo, en una reducción simple aunque produciendo hábilmente bordes cortantes con pocos errores. Esto muestra que las estrategias oportunas no necesariamente indican una falta de habilidad o de materias primas adecuadas. Sare-Abururu se halla a unos 12 km al sureste de Kanjera South y 18 km al este de Nyayanga. Los patrones de adquisición y reducción de líticos en la península de Homa parecen reflejar variaciones en los contextos de recursos locales en lugar de cambios evolutivos a gran escala en la movilidad, el coste energético o la cognición de los fabricantes de herramientas [+].
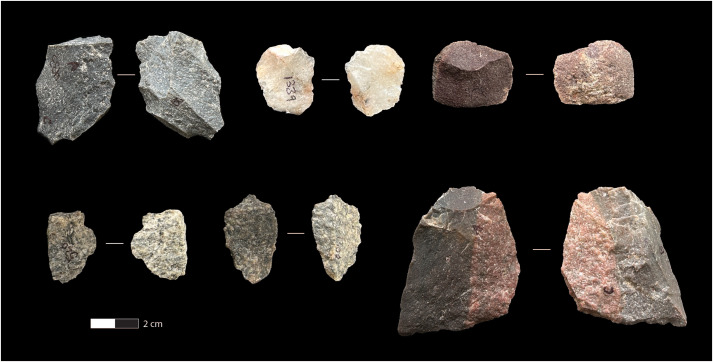
Herramientas olduvayenses de Sare-Abururu (c. 1.7 Ma). Crédito: Finestone et al. (2024).

  • Un nuevo trabajo de modelización indica que el Olduvayense pudo haberse originado hace 3-3,2 Ma en algún momento cercano a la ocurrencia de los artefactos de Lomekwi 3 [+].
  • Dos nuevas mandíbulas de Paranthropus boisei aportan información muy interesante sobre esta especie [+]. Por un lado, KNM ER-42709 es una hemimandíbula sin dientes datada en 1,4 Ma, el parántropo más reciente conocido en Kenia hasta ahora, y uno de los más recientes del registro fósil junto con KGA 10-525 de Konso (1,42 Ma) y OH 80 (1,338 Ma). Por otro lado, KNM ER-42801 es un fragmento mandibular con un molar M3 datado en 1,55 Ma. Su entorno se caracterizaba por la abundancia de vegetales tipo C4, en un momento previo al incremento de la cobertura forestal (plantas C3) que tuvo lugar en la transición del Pleistoceno inferior al medio (1,3-0,7 Ma en el este de África). Estos dos especímenes enriquecen la variabilidad intraespecífica en las dimensiones dentales y del cuerpo mandibular.
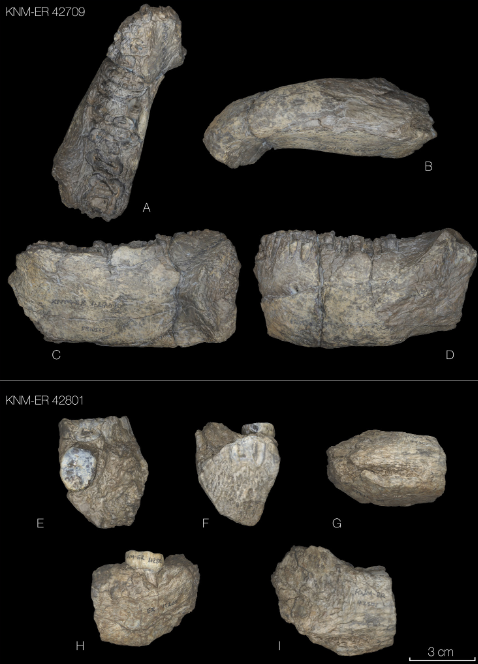
Dos nuevos fósiles de Paranthropus boisei. Crédito: Lucía Nadal et al (2024)

  • Se han hallado marcas de corte sobre los restos esqueléticos del elefante FN3-5-MPS (Mammuthus meridionalis), que murió de forma natural, halllado en Fuente Nueva 3, Orce (Granada) entre 2001 y 2003. Fueron realizadas por homininos y por felinos, posiblemente tigres dientes de sable, hace 1,2 Ma (millones de años), según se ha observado en la tafonomía y la microestratigrafía. Se trata de la evidencia más antigua conocida de marcas de cortes en huesos de proboscidios en el oeste de Eurasia [+].
  • De los tres fósiles originales a partir de los que Dubois definió la especie Homo erectus, un nuevo estudio considera que sólo la calota Trinil 2 corresponde al holotipo [+].
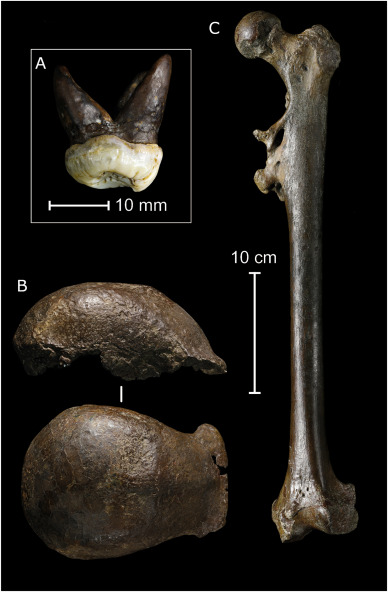
Holotipo de Homo erectus publicado por Dubois (1893): A) molar Trinil 1, B) calota Trinil 2, C) fémur Trinil 3.

Sigue leyendo →

Paleoantropología: novedades 3er trimestre 2023

Paleoantropología: novedades 3er trimestre 2023

De este tercer trimestre que cerramos hoy, he recopilado 34 publicaciones sobre paleoantropología que resumo a continuación ordenadas, como siempre, por orden cronológico del objeto publicado:

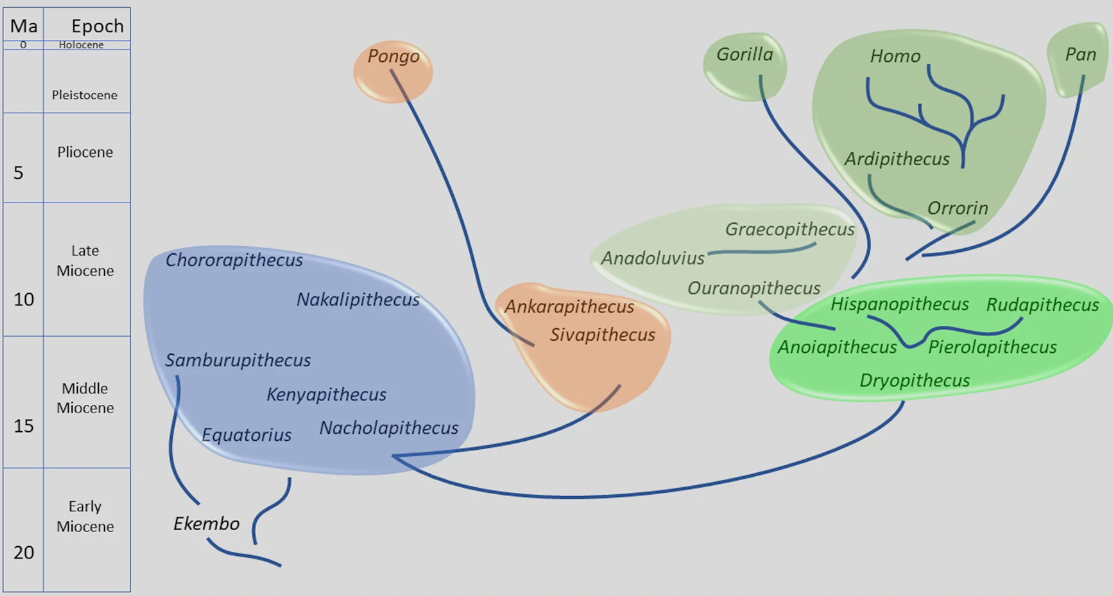
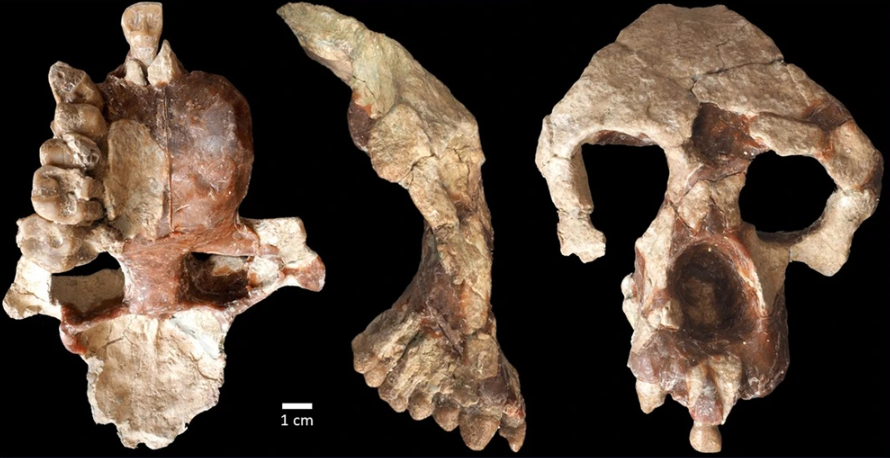
  • A partir de los restos hallados en el sitio de Çorakyerler, en Anatolia central, datados en 8,7 Ma (millones de años), se ha presentado un nuevo género de homínido, Anadoluvius, que refuerza la diversidad de los simios fósiles mediterráneos.

Cráneo CO-2100/2800 del individuo femenino de Anadoluvius turkae. Crédito: Sevim-Erol, A. et al. (2023)

A partir de él, los autores sugieren que formó parte de la primera radiación conocida de homínidos, actualmente sólo identificados en Europa y Anatolia. Los homínidos pueden haberse originado en Eurasia a finales del Mioceno, o pueden haberse dispersado en Eurasia a partir de un ancestro africano desconocido. La diversidad de homínidos en Eurasia sugiere un origen in situ pero no excluye una hipótesis de dispersión [+].

Encaje filogenético de Anadoluvius. Crédito: Sevim-Erol, A. et al. (2023)

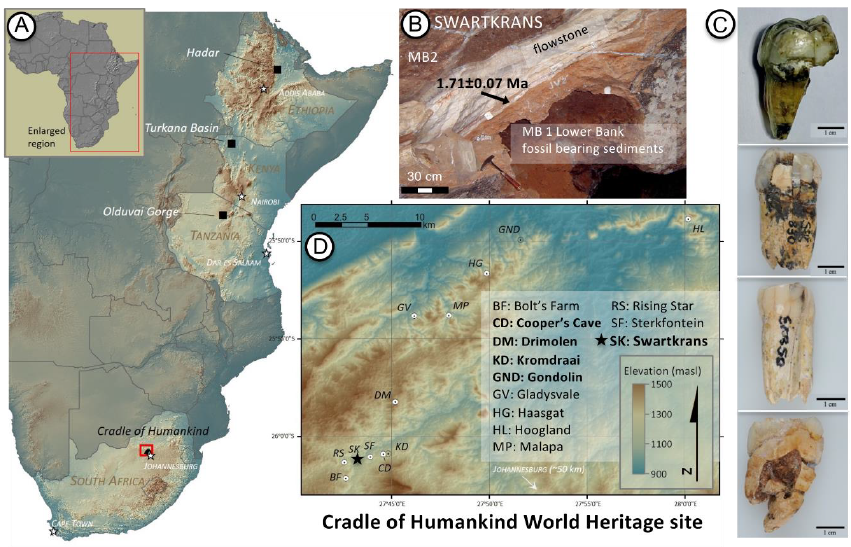
  • Se ha conseguido analizar el proteoma de cuatro especímenes de Paranthropus robustus de Swartkrans (Sudáfrica) de 2 Ma, para determinar su sexo y variabilidad genética, a partir del esmalte dental de los molares SK 835 y SK 14132 y los premolares SK 830 y SK 850 [+].

Localización de Swartkrans y especímenes de Paranthropus robustus SK 835, SK 830, SK 850, SK 14132

Localización de Swartkrans y especímenes de Paranthropus robustus SK 835, SK 830, SK 850, SK 14132. Crédito: P. Madupe et al (2023)

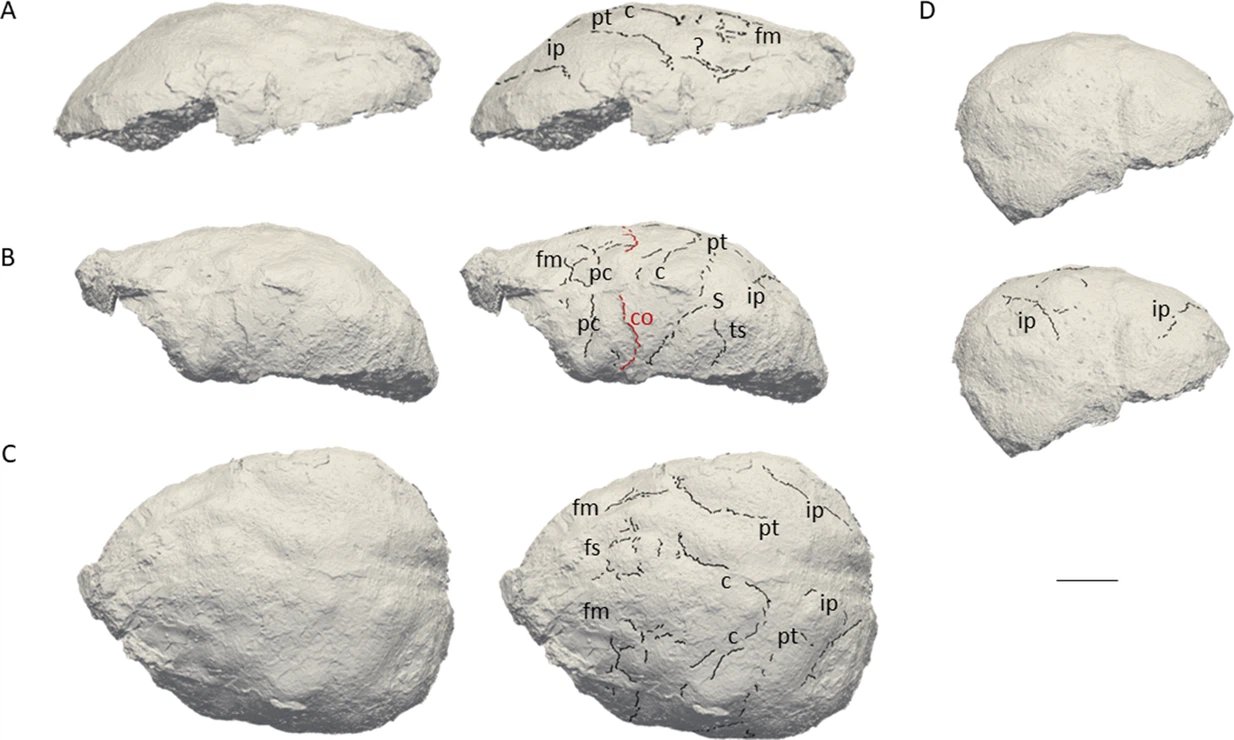
  • El endocráneo de ER 3732, un espécimen de Homo temprano datado en unos 1,9 Ma, indica una organización primitiva del área de Broca, asociada a la función del habla, con rasgos más próximos a chimpancés que a humanos modernos [+].
Réplica digital del endocráneo ER 3732

Réplica digital del endocráneo ER 3732. Crédito: Beaudet y de Jager (2023)

Sigue leyendo →

Paleoantropología: novedades 2º trimestre 2023

Paleoantropología: novedades 2º trimestre 2023

En este segundo trimestre del año, el ritmo de publicación de novedades en paleoantropología ha sido realmente alto. Rescato 45 de ellas para elaborar este resumen:

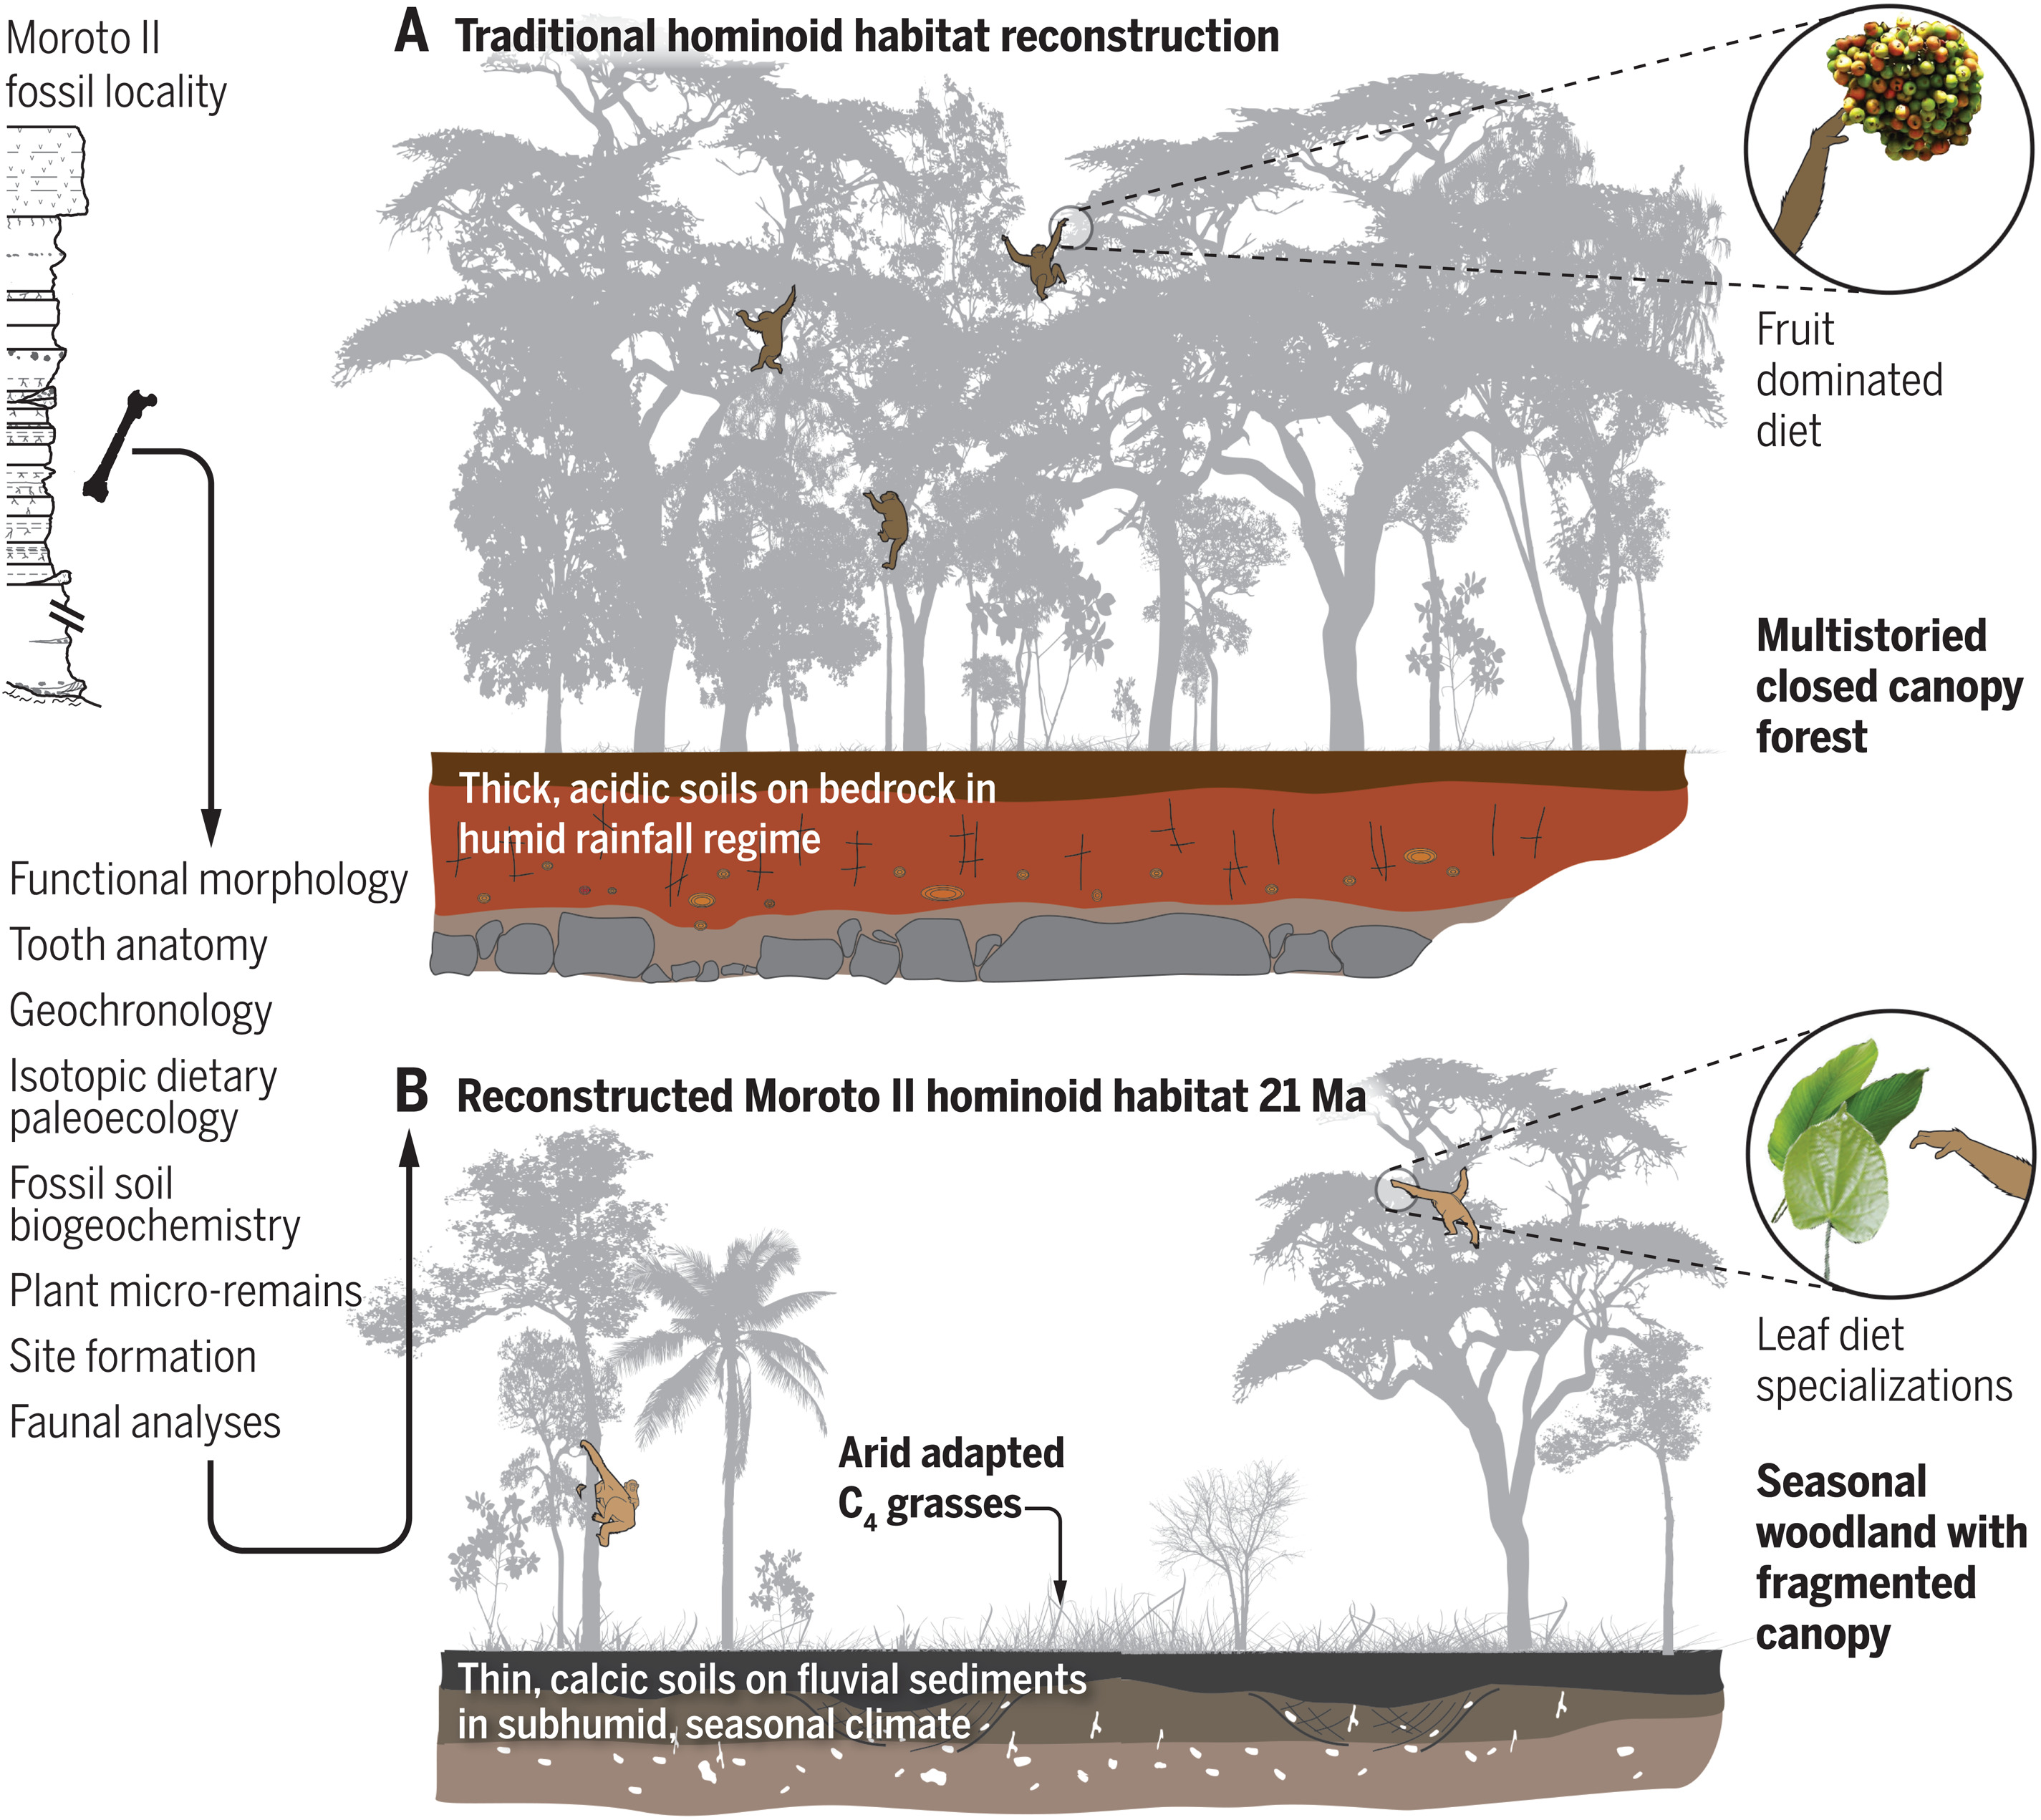
  • Dos nuevos trabajos paleontológicos y paleoecológicos en el este africano, analizan cómo era el hábitat donde evolucionaron los hominoideos ancestros de los primeros homininos. Aunque se suponía que su ecosistema era predominantente selvático hace más de 10 millones de años (Ma), se ha encontrado que más bien sería una sabana con zonas boscosas, un entorno más seco e irregular. Así, parece que tenemos que buscar el origen de la sabana africana mucho antes antes de lo esperado, con una abundancia de hierbas tipo C4 hace entre 21 y 16 Ma [+]. Esto reabre el debate sobre la evolución morfológica de los hominoideos y el aumento muscular de sus extremidades traseras, observada en el simio más antiguo de la región, Morotopithecus (nombre tomado del sitio Moroto II de Uganda), similar a la de los simios actuales, lo que sería una adaptación a bosques abiertos y estacionales en una transición hacia los orígenes de la locomoción bípeda [+]. 

Reconstrucción tradicional y nueva del hábitat de los hominoideos. Crédito: L. M. MacLatchy et al (2023).

  • Un estudio sobre el cúbito de 17 especímenes de homininos (Sahelanthropus, Ardipithecus, Australopithecus, Paranthropus y Homo primitivos), junto con cúbitos de Homo sapiens y de simios extinguidos, concluye que los fósiles TM 266 (asignado a Sahelanthropus tchadensis) y OH 36 (a Paranthropus boisei) se diferencian de otros homininos por encontrarse dentro del morfoespacio de la marcha con nudilleo (knucle-walking). Los autores del trabajo se cuestionan que S. tchadensis fuera un bípedo obligado; más bien podría ser un homínido del Mioceno tardío con adaptaciones para caminar con nudilleo [+].
  • Se ha logrado crear un modelo digital de la estructura muscular de la parte inferior del cuerpo del esqueleto de Lucy (Australopithecus afarensis), de 3,2 Ma, para comprobar su locomoción en vida. Para ello, se emplearon resonancias magnéticas y tomografías computarizadas de las estructuras musculares y óseas de humanos modernos para trazar las trayectorias musculares, usaron los modelos virtuales del esqueleto de Lucy para recomponer las articulaciones, reconstruyeron 36 músculos, y recrearon sus movimientos en vida. La mayoría de los músculos eran mucho más voluminosos en Lucy que en los humanos modernos. Por ejemplo, los músculos del muslo constituían el 74% de su masa, frente al 50% en los humanos modernos. Los músculos extensores de la rodilla de Lucy, y el efecto de palanca que permitirían, confirman que tenía la misma capacidad de enderezar las articulaciones de la rodilla que los humanos modernos. Una vez más, vemos que Lucy era bípeda [+].
  • Y, precisamente, los tres Australopithecus afarensis que dejaron las huellas del sitio G de Laetoli hace 3,66 Ma, eran relativamente grandes e iban un poco más rápido de lo que se había estimado anteriormente. Un gran australopiteco (160-170 cm) iba seguido a la misma velocidad por dos individuos de menor tamaño (un posible macho de 140 cm y una hembra o juvenil de 120 cm) [+].
  • Una revisión sobre la locomoción en los homininos y su evolución desde el Mioceno superior hasta el Plioceno superior, muestra la retención de ciertos rasgos en hombros y extremidades en Au. afarensis y Au. africanus (ya después de ser bípedos habituales) relacionados con actividades arbóreas que resultaban clave para alimentarse, criar y evitar depredadores. Muchos de estos rasgos persistieron hasta la aparición de Homo erectus [+].

Sigue leyendo →

¿Enterramientos y grabados rupestres realizados por Homo naledi?

¿Enterramientos y grabados rupestres realizados por Homo naledi?

[English version below]

Actualizado septiembre 2025

Parece que ha pasado más tiempo, pero han sido pocos años desde que conocimos a la especie Homo naledi en septiembre de 2015. Naledi es un nombre africano que viene de la tribu sudafricana de Sesotho y significa «estrella», por la denominación Rising Star del sistema de cuevas donde se descubrió. Desde entonces, el registro fósil de esta especie se ha ido enriqueciendo, y se compone de más de 2000 huesos y dientes, que representan a un mínimo de 15 individuos.

Su datación es de 241-335 ka (miles de años), una antigüedad parecida a la de los primeros especímenes de Homo sapiens en África. Estos otros humanos, Homo naledi, eran pequeños (150 cm y 45 kg) y también tenían un cerebro llamativamente pequeño (466-560 cc) en comparación con otras especies humanas: Homo erectus (entre 727-1220 cc), Homo sapiens (1350 cc como promedio), Homo neanderthalensis (1450 cc como promedio). Se trata de un tamaño en un rango similar al cerebro de Homo floresiensis (426 cc).

Homo naledi es una asombrosa especie, que tendría muy cerca a otros grupos humanos en el mismo paisaje, pero que se distinguiría de ellos notablemente en su tamaño corporal y en su cabeza. Pero ¿y en su inteligencia? ¿Cómo podemos «medir» la inteligencia de aquellos humanos con un cerebro pequeño?

Para tomar pistas, tenemos que volver a las cuevas de Rising Star. Allí tenemos al menos una veintena de cuerpos en el fondo de un conjunto de galerías complejas, algunas realmente estrechas, sin ninguna evidencia arqueológica que indique que aquellos homininos vivían en esas cámaras. Los estudios geológicos no han hallado otras posibles aperturas antiguas hacia aquellos lugares; parece que el acceso a ellos nunca fue fácil. Es más, pocos restos de otros animales se han hallado allí dentro, por ejemplo, de búho.

Así, la hipótesis que se maneja es la del depósito deliberado de los cuerpos en aquellos lugares complicados, lo que ha llevado a trabajar en dos cuestiones durante los últimos años:

1) ¿Pudo tener aquel depósito un carácter simbólico?

2) ¿Emplearon fuego, para poder realizar semejante actividad en la profundidad de la cueva?

Veamos lo que conocemos a día de hoy sobre estas cuestiones.

¿Homo naledi enterraba?

Se han descubierto varias zonas distintas con datos geológicos y anatómicos que sugieren la remoción de tierra para cavar hoyos y depositar a los cuerpos de Homo naledi flexionados.

En la cámara Dinaledi, una concentración de huesos (Dinaledi Feature 1) contiene 83 partes identificables del cuerpo de un adulto y, sobre él, varias de otro individuo (al menos tres fragmentos en contacto con el cuerpo anterior). Además, una segunda concentración (Dinaledi Feature 2) está separada 20 cm de la primera y parece ser de un individuo juvenil, pero está pendiente de excavar.

En la antecámara Hill, contigua a Dinaledi, existe otra concentración de 90 fragmentos óseos y 51 dientes, que pertenecen a 4 individuos infantiles, de los que la conservación de uno de ellos parece indicar que estaba en posición flexionada y que tendría unos 13 años de edad al morir. En su mano o cerca de ella, hay una interesante roca con estrías o líneas de posible modificación o desgaste, que está en estudio. Además, está el esqueleto parcial de otro infantil, y los cráneos parciales de otros dos.

Sigue leyendo →

Paleoantropología: novedades 4º trimestre 2022

Paleoantropología: novedades 4º trimestre 2022

Hemos terminado 2022 con un último trimestre cargadito de novedades. Aquí va una selección de 31, completando un total de 101 noticias (bonito número) en el viejo año que he ido recopilando en mis resúmenes trimestrales:

  • Dos mandíbulas (MSD-VP-5/16 y MSD-VP-5/50) con dentición recuperadas en una capa de al menos 3,76 Ma (millones de años) en el sitio Woranso-Mille, muestran afinidades taxonómicas tanto con Australopithecus anamensis como con Au. afarensis. La retención de algunos rasgos similares a los Au. anamensis de Kanapoi, así como la presencia de esta especie en depósitos de 3,8 Ma en Woranso-Mille, sugieren la clasificación de estas dos mandíbulas en Au. anamensis. Las similitudes con la dentición de Au. afarensis complican esta clasificación, y reforzarían la hipótesis de la cronoespecies Au. anamensis-Au. afarensis, si no fuera por el posible solape cronológico entre ambas [+].
Mandíbulas MRD-VP-5/50 y MRD-VP-5/16 de Woranso-Mille, en comparación con otras mandíbulas australopitecinas

Mandíbulas MRD-VP-5/50 y MRD-VP-5/16 de Woranso-Mille, en comparación con otras mandíbulas australopitecinas. Crédito: Haile-Selassie et al (2022).

  • Un nuevo trabajo apoya la hipótesis que sitúa el origen de la bipedación humana en los árboles y no en el suelo. A partir de 2850 observaciones de eventos locomotores de 13 chimpancés adultos de los bosques abiertos del valle del Issa (Tanzania) durante 15 meses, el estudio concluye que pasaban tanto tiempo en los árboles como otros chimpancés que vivían en bosques densos, a pesar de su hábitat más abierto; no eran más terrestres como se habría esperado; sorprendentemente, más del 85% de los casos de bipedismo ocurrieron en los árboles; no caminaban más erguidos en la vegetación de sabana abierta, donde no pueden viajar fácilmente a través de la copa de los árboles [+].
  • A pesar de que se han definido hasta 21 especies en África entre el Mioceno final y el Pleistoceno medio, tan solo 17 esqueletos poscraneales se han podido asociar a alguna de dichas especies. Un nuevo trabajo repasa los restos poscraneales que conforman el limitado registro fósil africano en este período, como base para la asignación taxonómica de nuevos restos futuros [+].
Restos poscraneales asociados a cráneos en el Pleistoceno inferior

Restos poscraneales asociados a cráneos en el Pleistoceno inferior. Crédito: F. Grine et al (2022)

Sigue leyendo →